


Sonderdruck aus DIE NATURWISSENSCHAFTEN 1961 Heft 7, S. 207-214 Springer-Verlag Berlin · Göttingen · Heidelberg 48. Jahrgang
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (16 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Wie sehen Insekten Bewegungen? *)
Bernhard Hassenstein
Wie der Gegenstand des Lichtsinnes das Licht ist, so sollte das Objekt der Bewegungswahrnehmung Bewegung sein. Bewegung ist für den Physiker: Ortsveränderung in der Zeit. Man könnte daraus herleiten: Wahrnehmung von Bewegung bzw. Geschwindigkeit sei gleich der Wahrnehmung räumlicher Positionswechsel, in Beziehung gesetzt zur gleichzeitigen Wahrnehmung der Zeitdauer, die dabei verstreicht. Soweit dies zutrifft, wäre das Bewegungssehen keine einheitliche Funktion, sondern eine kombinierte Leistung von Raumwahrnehmung und Zeitwahrnehmung. Für den Menschen und die Wirbeltiere könnte dies der Fall sein. Im Insektenauge aber liegt ein nervöser Analysator vor, der aus den Helligkeitsmeldungen benachbarter Sehelemente unmittelbar und nicht auf dem Weg über Ort- und Zeitwahrnehmung die Meßwerte der Bewegung gewinnt. Im folgenden möchte ich beschreiben, wie wir auf indirektem, aber zwingendem Wege dieses Geschehen der Informationsverarbeitung im Insektenauge in die Hand bekommen haben. Versuchstier war der Rüsselkäfer Chlorophanus viridis.
Reaktionsmessung
Bei vielen Tieren gibt es Reaktionen auf Bewegungswahrnehmungen, die optomotorischen (optokinetischen) Reaktionen. Daher läßt sich zum Studium der Bewegungswahrnehmung die verhaltensphysiologische Methode anwenden, d. h. die Untersuchung durch kontrollierte Reizgebung und messende Beobachtung der Reaktionen des intakten Tieres. Fig. 1 zeigt halbschematisch, wie man optokinetische Reaktionen im Experiment hervorrufen kann. Das Tier befindet sich inmitten eines Hohlzylinders aus senkrechten schwarzen und weißen Streifen, der drehbar ist.
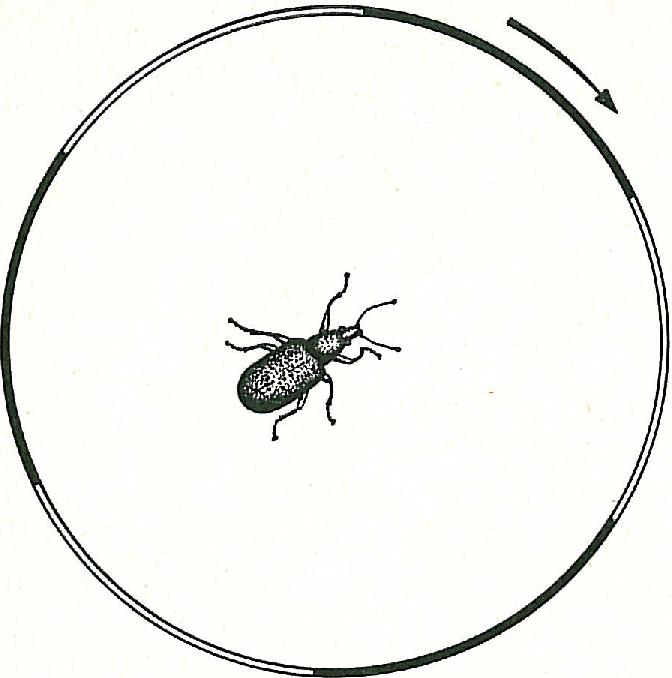 Fig. 1.
Halbschematische Darstellung der optomotorischen Reaktion eines Käfers in einem rechtsherum rotierenden Schwarz-Weiß-Streifenzylinder. Zeichnung HERIBERT SCHMID [2b]
Auf den optischen Bewegungseindruck hin wendet sich der Käfer in der Richtung der Bewegung; er versucht, der Bewegung zu folgen (siehe die Bein- und Fühlerhaltung des Käfers in Fig. 1).
So zuverlässig sich die optomotorischen Reaktionen in dieser Anordnung aber auch auslösen lassen, so sind sie doch wegen der freien Beweglichkeit des Tieres schwer quantitativ auswertbar. Daher ist es von Vorteil, sie am fixierten Versuchstier zu studieren. Eine Methode dazu ist die folgende (Fig. 2).
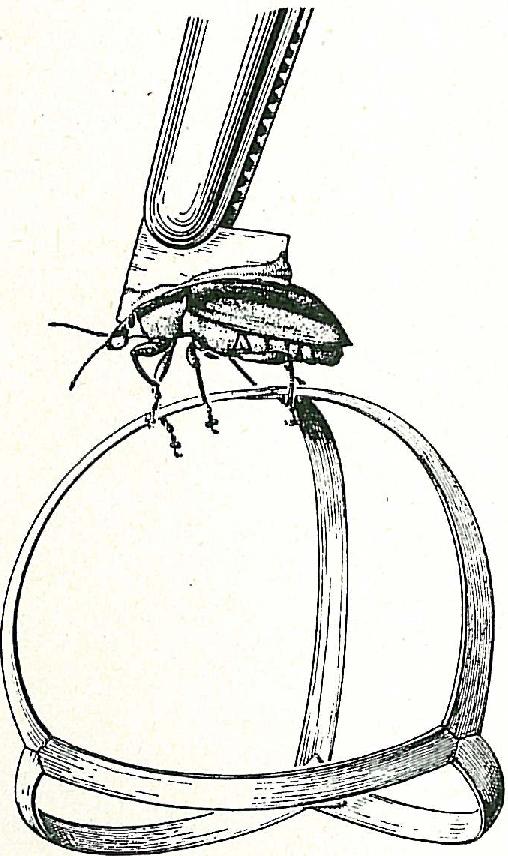 Fig. 2.
Der Rüsselkäfer Chlorophanus mit dem "Spangenglobus" [1]. Zeichnung nach einer Photographie: ERICH FREIBERG
Das Versuchstier (der Rüsselkäfer Chlorophanus viridis) ist mit seinem Rückenpanzer an ein Stückchen Pappe geklebt, das von einer Pinzette gehalten wird. Der Käfer hängt also zunächst frei in der Luft. In dieser Situation wird ihm ein Gebilde aus Stroh, der "Spangenglobus" gereicht, den er freiwillig festhält; der Spangenglobus ist gerade so schwer wie der Käfer selbst, so daß dieser nichts Außergewöhnliches tut: Er trägt "sein eigenes Gewicht" wie beim Laufen mit dem Rücken nach unten. Der Spangenglobus ist so beschaffen, daß sich seine 6 Spangen an 4 Punkten zu je dreien im Winkel von 120° zueinander treffen. Macht der Käfer nun Laufbewegungen, so dreht sich der Spangenglobus unter ihm. Nach je einigen Schritten kommt der Käfer dabei an einen Y-förmigen Scheideweg — oder genauer: Ein solcher Scheideweg kommt auf ihn zu. Er muß sich nun für rechts oder links entscheiden. Durch seine Wahl ändert der Käfer natürlich nichts an seiner Position, er ist ja am Rücken fixiert; aber er zeigt dem Beobachter seine Wendetendenz. Nach jeder Wahl ist der Käfer in der gleichen Situation wie zuvor und, nachdem er einige Schritte vorwärts gelaufen ist, bereit zur nächsten Wahl. Das Entscheidende ist nun, daß die Wahlen am Spangenglobus in der gleichen Weise durch optische Bewegungsreize beeinflußt werden wie die Laufrichtung des Tieres auf ebener Fläche. Normalerweise wählt der Käfer beim Lauf am Spangenglobus gleich häufig "rechts" und "links". Einer experimentell ausgelösten Wendung nach rechts entspricht dann z. B. ein Verhältnis von 75 Rechts- zu 25 Linkswahlen, einer sehr starken Wendung eines von 100 Rechts- zu 0 Linkswahlen.
Die Spangenglobus-Methode befreit also die optokinetische Reaktion nicht nur von der Unsicherheit durch die Ortsbewegung des Käfers, sondern macht sie auch "abzählbar", also quantitativ erfaßbar. — Im Experiment wird nun jeder Bewegungsreiz so lange in dauernder Wiederholung gegeben, bis der Käfer häufig genug gewählt hat, um ein statistisch genügend sicheres Wahlverhältnis als Maß für seine jeweilige Wendetendenz darzubieten. — Die Reaktion auf Bewegungswahrnehmung wird hier also nicht als Winkelgeschwindigkeit in Grad/sec gemessen, sondern in Form eines statistischen Maßes aus alternativen Entscheidungen "nach rechts" und "nach links".
Reizgebung
Der Mensch sieht "Bewegung" nicht nur beim Darbieten von fließenden Bewegungen, sondern auch — z. B. im Film — bei schnellen Folgen stehender Bilder. Das gilt auch für Insekten: Der Reihe nach in kurzen Zeitabständen aufblitzende Lichtquellen lösen bei ihnen die gleichen optokinetischen Reaktionen aus wie fließende Bewegungen. Dies ist ein Vorteil für die Untersuchung des Bewegungssehens: Die Reizgebung kann in übersichtlicher Weise aus elementaren Einzelreizen aufgebaut werden, also aus dem Hell- oder Dunkelwerden einzelner Helligkeitsquellen.
Fig. 3 zeigt eine zum Hervorbringen solcher Reizfolgen geeignete einfache Versuchsanordnung.
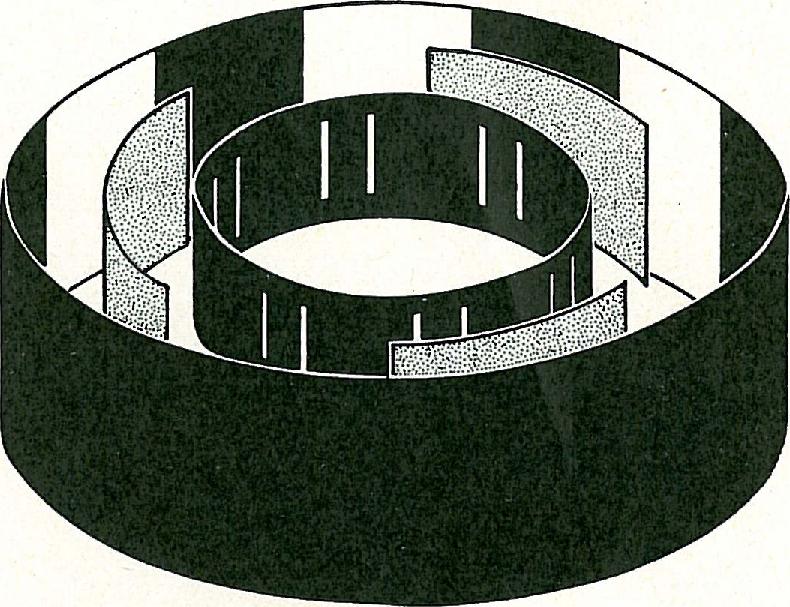 Fig. 3.
Beispiel für eine Zylinderanordnung zur Erzeugung von Helligkeits-Reiz-Folgen [4a]
Das hier nicht mitgezeichnete Versuchstier befindet sich im Zentrum einer Anordnung aus drei konzentrischen Zylindern. Der innere Zylinder steht fest. Er ist der "Rasterzylinder" mit senkrechten Schlitzen, die in diesem Fall paarweise angeordnet sind. Allein durch diese Schlitze treffen Lichtsignale auf das Insektenauge. Die Schlitze sind so schmal, daß der Käfer innerhalb ihrer keine Bewegung erkennen kann, sondern nur Helligkeitswechsel [4a]. Bewegungsreize können nur durch die Aufeinanderfolge von Helligkeitsänderungen in benachbarten Schlitzen entstehen. — Auch der äußere Zylinder dreht sich nicht; er ist der "Hintergrundzylinder". In unserem Falle sind auf dem äußeren Zylinder schwarze und weiße Streifen so angeordnet, daß von den benachbarten Schlitzen des inneren Zylinders je einer — vom Zentrum aus gesehen — einen schwarzen, und der andere einen weißen Hintergrund hat. — Zwischen dem Raster- und dem Hintergrundzylinder befindet sich der "rotierende Zylinder" aus getrennten grauen Flächen. Dieser Zylinder ist das einzige bewegte Element in der Reizanordnung. Er wird durch einen Elektromotor angetrieben.
Bewegt sich nun in der Anordnung der Fig. 3 eine graue Fläche in das Gesichtsfeld eines Schlitzes, durch den das Käferauge auf einen dunklen Hintergrundstreifen blickt, so erfolgt dort ein Helligkeitsanstieg. Kurz danach bedeckt dann dieselbe Graufläche hinter dem Nachbarschlitz eine weiße Hintergrundsfläche und bedingt dort einen Wechsel von weiß nach grau, also einen Helligkeitsabstieg. Die gezeigte Anordnung bringt also eine sehr spezielle Lichtreizfolge hervor, bei der Helligkeits-An- und Abstiege aufeinanderfolgen. —
Durch andersartige Ausführung der drei Zylinder lassen sich beinahe beliebige Helligkeits-Reiz-Folgen hervorbringen: Durch die Wahl der Schlitzabstände im innersten Zylinder werden die räumlichen Abstände zwischen den Reizen bestimmt, durch die Drehgeschwindigkeiten des mittleren Zylinders die zeitlichen Beziehungen zwischen den Einzelreizen, durch die Wahl der Tönungen von Hintergrund und bewegten Teilen die Größen der Helligkeitssprünge und damit die Reizstärken, und durch die speziellen Musteranordnungen das genaue Reizprogramm. —
Durch die quantitative Meßmethode für die Reaktionen und durch die variierbare kontrollierte Reizgebung waren die experimentellen Voraussetzungen für eine funktionelle Systemanalyse gegeben.
Experimentelle Ergebnisse
Zunächst wurden folgende 6 Eigenschaften der Reizsituation auf ihren Einfluß auf die Reaktion geprüft: 1. die Anzahl der Reize, 2. der räumliche Abstand der Reize, 3. der zeitliche Zwischenraum Δt zwischen den Reizen, 4. die Reihenfolge der Reize, 5. die Intensitäten der Reize, 6. die Vorzeichen der Reize.
Ich gebe die Ergebnisse an, ohne stets die spezielle Methodik zu erwähnen, die sich immer durch sinnvolle Abänderung der gezeigten Anordnung ergab. Es wurde jeweils der zu untersuchende Parameter variiert, die übrigen konstant gehalten.
-
Zur Anzahl der Reize. Beim Bewegungssehen des untersuchten Käfers stehen stets je zwei Sehelemente miteinander in Wechselbeziehung. Werden 3 Elemente A B C nacheinander gereizt, so wirkt Amit B, B mit C und A mit C zusammen, und die Ergebnisse dieser drei Einzelprozesse summieren sich in ihrem Einfluß auf die Reaktionsstärke.
-
Zum räumlichen Abstand der Reize. Die Augen der Insekten sind bekanntlich zusammengesetzte Augen ("Mosaikaugen"). Sie bestehen aus hunderten von einzelnen Fazetten (Ommatidien), die ihre eigene optische Ausrüstung und ihre eigenen Sinneszellen besitzen. Das Versuchsergebnis war folgendes: Zwei Reize, die nacheinander in ein und dasselbe Ommatidium fallen, sind im Sinne der Bewegungswahrnehmung wirkungslos. Das gleiche gilt (mit einer nicht ins Gewicht fallenden Ausnahme) für solche Reize, die nacheinander in zwei Ommatidien fallen, die durch zwei oder mehr ungereizt bleibende Ommatidien getrennt sind. — Zusammenarbeiten können also nur benachbarte oder "übernächste" Sehelemente. "Sehelement" im Sinne des Bewegungssehens ist dabei das Ommatidium, die Einzel-Fazette, also der "Mosaikstein" des Fazettenauges.
Die Winkelabstände zwischen den Reizquellen (Schlitze im inneren Zylinder auf Fig. 3 und 8) lassen natürlich nur dann Schlüsse auf die Winkelabstände zwischen den durch sie gereizten Sehelementen zu, wenn man auch die Winkelgröße des Gesichtsfelds des einzelnen Ommatidiums bzw. die Sehschärfe des Auges kennt und berücksichtigt. Anatomische Untersuchungen können hier nicht helfen, da sich die Sehschärfe durch physiologische Funktionen, z. B. laterale Inhibition (Hemmung zwischen benachbarten Elementen) ändern kann. Daher maß ich die Sehschärfe physiologisch in der gleichen Situation, in der auch alle anderen Versuche abliefen, und zwar durch Darbieten verschieden fein gerasteter bewegter Muster und Registrierung der Reaktionen. Es ergab sich ein Winkelabstand zwischen den Sehelementen von 6,8° entsprechend dem anatomischen Winkel zwischen den Ommatidienachsen und eine vollständige Trennung der Gesichtsfelder. Die Herleitung der Sehschärfe aus Versuchsergebnissen mit bewegten Mustern erfordert einfache geometrische Überlegungen und ist in [1] durchgeführt. Mehrere Versuche aus [4a] bestätigen die Aussagen. Zur genaueren mathematischen Begründung s. [[6].
-
Welchen Einfluß hat der Zeitabstand (Δt) zwischen zwei Einzelreizen auf die Reaktionsstärke?
Die Reaktion ist am stärksten bei einem Δt von etwa ¼ sec; sie ist sowohl bei kürzerem wie bei längerem Δt geringer. Aber noch bei einem Zeitabstand von 10 sec gibt es meßbare optokinetische Wendetendenzen. Jeder zeitlich erste Reiz, der mit einem späteren im Nachbarelement zusammenwirkt, muß also mindestens eine Δt lang andauernde physiologische Nachwirkung haben; die eigentliche Wechselwirkung muß zwischen diesem allmählich abklingenden "positiven Nachbild" und der unmittelbaren Wirkung des zweiten Reizes vonstatten gehen.
-
Hat die zeitliche Reihenfolge der Reize die zu erwartende Auswirkung auf die Reaktionsrichtung?
Wird die zeitliche Reihenfolge zwischen Einzelreizen umgekehrt, so ändert auch die Reaktion ihre Richtung, z. B. von einer Wendung nach rechts zu einer Wendung nach links.
Die bisherigen vier Ergebnisse brachten nichts allzu Unerwartetes. Bei der nun folgenden Prüfung des Einflusses von Reizintensitäten und Vorzeichen der Reize ergaben sich dagegen Überraschende Resultate:
-
Der Einfluß der Reizintensität wurde geprüft, indem Streifenzylinder mit verschiedenen Kontrasten, also schwarz-weiß; dunkelgrau-weiß; mittelgrau-weiß usw. um den Käfer rotierten, so daß die Helligkeitssprünge von Mal zu Mal verschieden waren. In Fig. 4 sind Kontraste (Helligkeitssprünge), d. h. die Reizintensitäten als Abszissen und die Reaktionsstärken als Ordinaten abgetragen. Wie man erkennt, hat eine Verdoppelung der Kontraste im bewegten Muster, also eine Verdoppelung der Helligkeitssprünge bei der Bewegung der Muster etwa eine Vervierfachung der Reaktionsstärke zur Folge. Im ganzen herrscht ein für die Sinnesphysiologie ungewohnter, etwa quadratischer Zusammenhang zwischen Reizstärken und Reaktionsstärken. — Wir wollen dieses Ergebnis einen Augenblick lang auf sich beruhen lassen und zunächst den Einfluß der Vorzeichen der Reize betrachten:
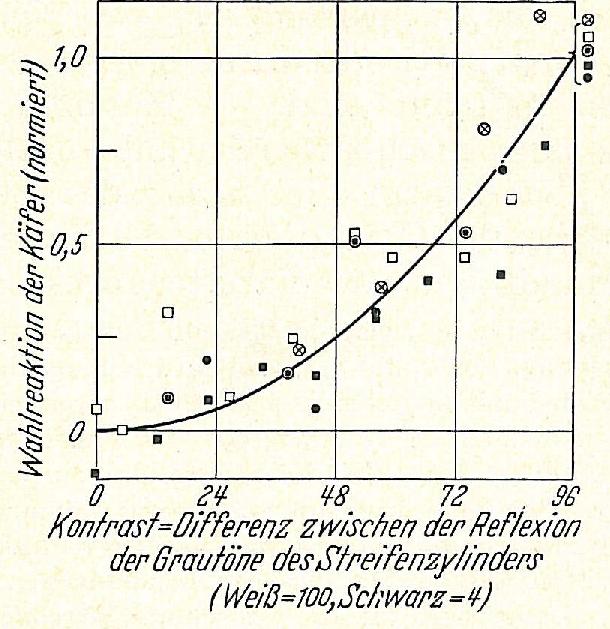 Fig. 4.
Abhängigkeit der Reaktionsstärke von den Reizintensitäten [4c]. Die Reflexion der verwendeten Graupapiere wurde mit einer Photozelle gemessen. Die durchgezogene Kurve ist eine Parabel der Form y = a x². — Bei Bienen ergibt sich die gleiche quadratische Abhängigkeit von den Kontrasten im bewegten Muster, jedoch nur bei geringer Helligkeit. Bei höheren Beleuchtungsstärken des Musters wird der Zusammenhang annähernd linear (KUNZE [7])
-
Es gibt zwei Arten von Lichtänderungen für das Käferauge in den einzelnen Schlitzen des vorhin gezeigten Schlitzzylinders: Hellerwerden und Dunklerwerden. Beide Vorgänge sind einander entgegengesetzt und löschen einander aus, wenn sie gleichzeitig aufeinander fallen; also dürfen wir sie als positive und negative Helligkeitsänderungen einander gegenüberstellen. — Bei einer Folge von positiven Reizen, die nacheinander in benachbarte Ommatidien fallen, entspricht die Richtung der Reaktion der Richtung des Ablaufs der Reizfolge: Das Tier versucht wie auf Fig. 1, der gesehenen Bewegung zu folgen. Auf eine Folge von negativen Reizen geschieht das gleiche. Dies war zu erwarten: Es besteht kein Grund dafür, daß die Bewegung eines hellen Gegenstandes oder eines dunklen Objektes verschiedenartige Reaktionen zur Folge haben sollten. Nach diesem Ergebnis schien es zunächst, als hätten die Vorzeichen der Reize keinen Einfluß auf die Reaktionen.
Kombiniert man aber positive und negative Reize miteinander, folgt also z. B. auf einen positiven Reiz (Anstieg der Helligkeit) in einer Fazette ein negativer Reiz (Abnahme der Helligkeit) in ihrem Nachbarn, so folgt darauf eine Reaktion des Käfers in der entgegengesetzten Richtung. Der Käfer versucht nicht mehr, dem raum-zeitlichen Ablauf der Reizfolge zu folgen, sondern er wendet sich in die Gegenrichtung. Zwei aufeinanderfolgende positive Reize ++ und 2 negative Reize – – haben also das gleiche Ergebnis; die Kombinationen +– und –+ haben ein dazu entgegengesetztes Ergebnis.
Auf Fig. 5, oben rechts, ist eine Versuchsanordnung schematisch angedeutet, die den eben beschriebenen merkwürdigen Effekt auslöst: (Sie ist im Prinzip gleich derjenigen, die in Fig. 3 gezeigt wurde.) Wenn sich hier die graue Fläche vor dem schwarz-weißen Hintergrund bewegt, so erfolgt nacheinander ein Erhellen eines schwarzen Streifens, ein Verdunkeln eines weißen Streifens usw. Auf diese Bewegungserscheinung hin dreht sich für den Käfer die Bewegungsrichtung um 180° um. —
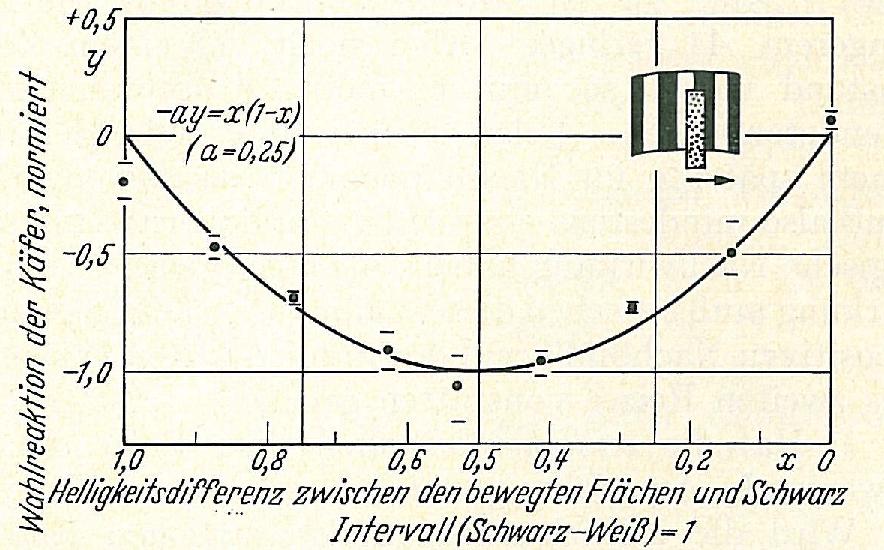 Fig. 5.
Reaktionen der Käfer auf die Bewegung von Flächen verschiedener Helligkeit (Abszisse) vor schwarz-weiß-gestreiftem Hintergrund [4c]. Der Käfer sah die angedeutete Musteranordnung durch einen Rasterzylinder (vgl. Fig. 3), dessen schmale Schlitze den gleichen Winkelabstand voneinander hatten wie die Streifen des Hintergrundzylinders. Extreme Meßwerte durch waagerechte Striche angegeben. Die durchgezogene Kurve entspricht dem Ergebnis der Multiplikation zwischen den Größen der Helligkeitssprünge in benachbarten Schlitzen des Rasterzylinders. — Die Reaktionskurve ist symmetrisch, wenn, wie hier, die Helligkeitswerte der Muster linear (in arithmetischer Folge) als Abszissen aufgetragen werden und wenn die Geschwindigkeit der Grauflächen groß bis mittelgroß ist (vgl. Fig. 9). Bei geringen Geschwindigkeiten wird die Kurve asymmetrisch als Ausdruck der im stationären Fall logarithmischen Übersetzung zwischen Helligkeitsreizen und physiologischen Reaktionsfolgen (s. KIRSCHFELD [8])
-
Die Versuchsanordnung der bewegten grauen Flächen vor schwarz-weißem Hintergrund läßt einen zweiten Versuch über die Rolle der Größe der Helligkeitssprünge für die Reaktionsintensität zu. Der Versuch besteht darin, von Mal zu Mal verschieden helle Grauflächen vor dem schwarz-weißen Hintergrund wandern zu lassen. Die Geschwindigkeit ist dabei stets die gleiche. Wenn man ein dunkleres Grau wählt, so bedeutet das, daß die Helligkeitssprünge zwischen Schwarz und diesem Grau kleiner sind als beim mittleren Grau, die Helligkeitssprünge zwischen Weiß und dem dunkleren Grau dafür aber um ebenso viel größer! Das heißt, wenn sich durch die Änderung der Grauflächen auch alle Helligkeitssprünge ändern, so bleibt doch jeweils die Summe der Reize für benachbarte Sehelemente gleich. Fig. 5 gibt die Reaktionen der Käfer wieder. In der Senkrechten ist die Stärke der Reaktion der Käfer abgetragen, in der Waagerechten diesmal der Grauton der sich bewegenden Flächen, von links = weiß bis rechts = schwarz.
Zunächst zeigt sich, daß die Reaktion bei allen Grautönen außer Schwarz und Weiß gegen die Bewegungsrichtung der Grauflächen gerichtet war. Die entsprechenden Meßpunkte liegen daher unter der Null-Linie. Zum zweiten zeigt sich, daß die Reaktionsstärken, die sich im Abstand der Punkte von der Null-Linie ausprägen, bei verschiedenen Grauwerten der bewegten Flächen verschieden sind — beim mittleren Grau am stärksten, bei hellerem und dunklerem Grau schwächer. Daraus folgt eine wichtige Konsequenz: Die Summe der Reize, die jeweils in benachbarte Sehelemente fielen, war, wie schon gesagt, bei allen Grauwerten gleich: Wenn die Stärke der optomotorischen Reaktion die Summe der jeweils zusammenwirkenden Reize widerspiegelte, so hätte also auch sie überall gleich groß sein müssen. Das war nicht der Fall. Welches Verrechnungsergebnis zwischen zusammenwirkenden Reizen wird aber dann durch die Reaktionsstärken widergespiegelt?
Die gezeichnete durchgezogene Linie gibt theoretisch das Ergebnis der Multiplikation zwischen den durch die Flächenbewegung entstehenden Helligkeitsänderungen bzw. Reizgrößen in benachbarten Sehelementen an, und die Meßpunkte liegen mit einer für Verhaltensversuche außerordentlichen Genauigkeit an dieser Kurve. Somit geht aus dem Ausfall dieses Experimentes hervor: Die Reaktionsstärken der Käfer spiegeln nicht die Summe, sondern das Produkt aus den Intensitäten der zusammenwirkenden Reize wider. Schauen wir mit diesem Ergebnis vor Augen auf das 6. Experiment, das den Einfluß der Vorzeichen der Reize auf die Reaktionsrichtung anzeigte, so machen wir folgende Entdeckung: Folgen aus 2 "+"-Reizen hatten das gleiche Ergebnis wie Folgen aus 2 "– "-Reizen; aber Folgen aus je einem "+"- und einem "–"-Reiz hatten ein dazu negatives Ergebnis. Auch dieses Resultat entspricht formal der Multiplikationsregel: Denn + mal + oder – mal – ergibt übereinstimmend "+", aber + mal – oder — mal + ergibt "–".
Wir können also zusammenfassen: Stärke und Richtung der optokinetischen Reaktion spiegeln nach Betrag und Vorzeichen das Produkt aus je zwei zusammenwirkenden Einzelreizen wider. Das ist zunächst ein formaler Zusammenhang zwischen Reizen und Reaktionen. Doch ist er experimentell nachgewiesen, muß also auch eine physiologische Grundlage haben.
Hierzu paßt nun auch Befund 5 (Fig. 4), daß die Reaktionen auf bewegte Muster aus verschiedenen Grauwerten etwa mit dem Quadrat der Kontrastgrößen der Streifenzylinder ansteigen. Dort wirkte jeder Reiz mit einem gleich großen Reiz im Nachbarelement zusammen. Jeder Reiz wurde also mit einem ebenso großen multipliziert, und daraus mußte eine quadratische Abhängigkeit der Gesamtreaktion von der Reizintensität folgen.
Für den Sicherheitsgrad von Aussagen wie derjenigen, daß eine Reaktion einer bestimmten mathematischen Funktion folgt bzw. sie "widerspiegelt", gilt die gleiche Einschränkung wie für jede andere Feststellung von Gesetzmäßigkeiten in induktiven Wissenschaften: Ihre Gültigkeit ist niemals streng und exakt gesichert, sondern ergibt sich aus der Genauigkeit der Meßmethodik und der statistischen Sicherung durch die Meßergebnisse und die Anzahl der Meßdaten (diese Anzahl ist niemals unendlich groß). Gesetzmäßigkeiten innerhalb von Erfahrungswissenschaften sind daher stets bis zu einem bestimmten Grade Idealisierungen. Wieweit dies für die Multiplikation bei der Wechselwirkung zwischen benachbarten Ommatidien der Fall ist, ist an Fig. 5 zu erkennen, auf der Meßwerte und theoretische Kurve miteinander zu vergleichen sind.
Theoretische Bearbeitung und ein weiteres Experiment
Die optokinetische Wendetendenz, ausgelöst durch Abfolgen von zwei Helligkeitsreizen, hängt nach den bisherigen Versuchen ab vom: Zeitabstand, räumlichen Abstand, der Reihenfolge, dem Betrag und den Vorzeichen der zusammenwirkenden Einzelreize, und von jedem dieser fünf Parameter auf besondere Weise. Will man sich bei einem so verwickelten Funktionsgefüge ein Bild von dem zugrunde liegenden Funktionsprinzip machen oder auch nur sinnvolle Experimente entwerfen, um fehlende Informationen zu erlangen, so gibt es nur einen Weg: das Konstruieren eines "Blockschaltbildes" für die bisherigen Befunde und dessen mathematische Untersuchung. Nur dieser Weg zwingt zum Ernstnehmen aller Konsequenzen aus hypothetischen Vermutungen; die sprachliche Formulierung allein versagt hier.
Fig. 6 zeigt das Blockschaltbild für die bisher beschriebenen (und einige zusätzliche) Ergebnisse. Die Tatsache, daß stets zwei Ommatidien miteinander in Wechselwirkung stehen, drückt sich in der Zweizahl der Eingangselemente aus. Die Multiplikation zwischen den Meldungen der benachbarten Sehelemente ist durch die mit M bezeichneten Instanzen dargestellt. Die Übertragungsglieder "F" unmittelbar über den Multiplikations-Instanzen symbolisieren die Trägheit der physiologischen Reaktion, welche die Wirkung der Einzelreize bis zu 10 sec oder mehr nachklingen läßt (s. oben, experimentelles Ergebnis 3).
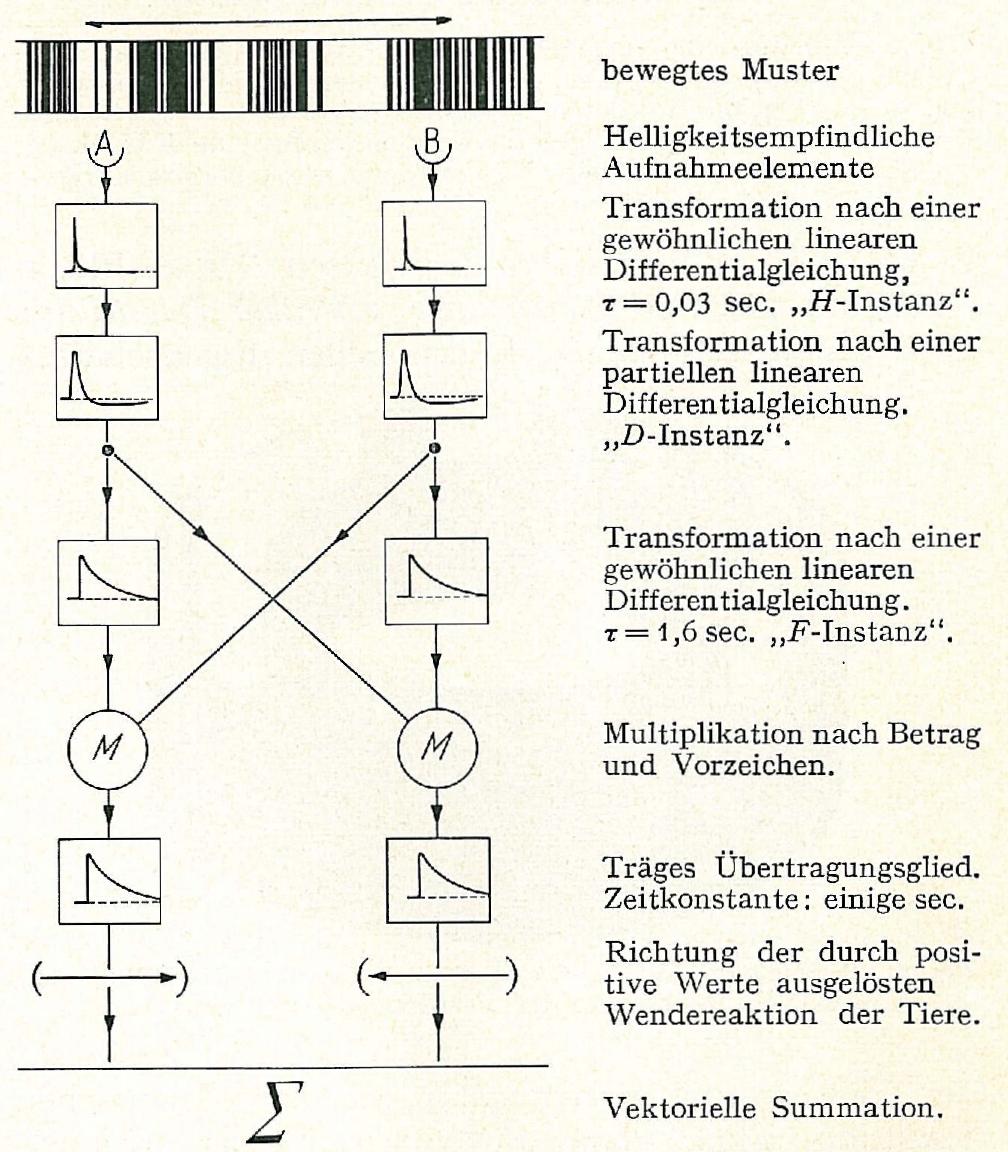 Fig. 6.
Blockschaltbild für den Reiz-Reaktions-Zusammenhang bei den optomotorischen Reaktionen des Käfers Chlorophanus nach dem Stand der Untersuchungen von 1960. Beim ersten Aufstellen des Blockschaltbilds (1956) kannten wir die Kinetik der Übertragungsglieder H, D und F noch nicht. Sie ergab sich erst aus den Experimenten und deren Auswertung 1958 und 1959. — Die hier gezeichnete Reihenfolge der Instanzen H und D ließ sich mit großer Wahrscheinlichkeit aus dem elektrophysiologisch gewonnenen Ergebnis von K. KIRSCHFELD [8] schließen, daß das Elektroretinogramm des Rüsselkäferauges die kinetischen Eigenschaften der H-Instanzen zeigt, nicht aber die der D-Instanzen. Letztere müssen daher, falls das ERG tatsächlich die H-Instanzen repräsentiert (was nach den funktionellen Eigenschaften möglich wäre), den H-Instanzen nachgeschaltet sein. — Die Kurven in den Vierecken sollen schematisch den Reaktionsverlauf innerhalb der Übertragungsglieder zeigen, wenn diese von einem kurzen Impuls angestoßen werden ("Impuls-Antwort"). Die Impuls-Antwort der D-Instanzen hat eine negative Phase. — τ ist das Zeichen für eine Zeitkonstante in einem Transformationsvorgang, der einer gewöhnlichen linearen Differentialgleichung gehorcht
Die Elemente unter den M-Instanzen stehen für das (noch nicht erwähnte) träge Abklingen der Wendereaktion der Käfer nach einem plötzlich aufhörenden Bewegungsreiz. Die spiegelsymmetrische Anordnung zweier in sich — den Zeitkonstanten nach — unsymmetrischer Teilsysteme spiegelt zweierlei wider: Daß Bewegung nach rechts und nach links voneinander unterschieden werden, daß aber die Zeitkonstanten für die Reaktionen in beiden Richtungen die gleichen sind. Die H-Instanzen schließlich sind Ausdruck für die Trägheit, die man für jeden biologischen Übertragungsvorgang von Sinnes- auf Nervenelemente zu erwarten hat. Sie repräsentieren diese Trägheit für die Übertragung von A bzw. B zur M-Instanz der Gegenseite. Warum sie innerhalb dieses Weges nicht in die Querleitungen, sondern unmittelbar unter die Eingangselemente eingefügt wurden, wird in der Legende zu Fig. 6 besprochen. Über die D-Instanzen s. Legende zu Fig. 9.
Es läßt sich mathematisch nachweisen: Dieses Blockschaltbild ist eine gemeinsame abstrakte Darstellung aller bisher gefundenen funktionellen Eigenschaften der Bewegungsauswertung in der optokinetischen Reaktion, ohne etwas fortzulassen oder hinzuzufügen.
Die Entwicklung eines Blockschaltbildes aus einer Reaktionentabelle spielt sich ganz im formal-mathematischen Bereich ab, ist bei richtiger Durchführung zwingend und unterliegt darin allein der mathematischen Kritik. Die methodologischen Voraussetzungen für den Schluß von Reiz-Reaktions-Funktionen auf Systemstrukturen sind in [2a] ausführlich niedergelegt; die Entwicklung des speziellen Blockschaltbildes und seine Aussonderung aus allen denkbaren Systemen mit Hilfe kritischer Experimente ist in [2b] Schritt für Schritt durchgeführt worden.
Nun entsteht die Frage: Hat dieses Schema, und hat vor allem die Multiplikation in ihm, etwas mit der Bewegungsauswertung selbst zu tun, oder handelt es sich um Nebeneigenschaften der Auswertung ohne eigene funktionelle Bedeutung? W. REICHARDT [3] war an dem Schema aufgefallen, daß es zwei Anteile enthält, die für eine sog. Korrelationsauswertung typisch sind, nämlich eine fortgesetzte Multiplikation der eingehenden Funktionswerte und eine nachfolgende Mittelung der zeitlich i aufeinanderfolgenden Multiplikationsergebnisse durch träge Übertragungsinstanzen. Ich werde weiter unten den Begriff der Korrelationsauswertung näher besprechen und will hier nur erwähnen, daß es sich um eine Methode zur mathematischen Analyse von statistischen Schwankungen handelt. REICHARDT setzte daraufhin mit dem gezeigten Schema folgende Rechnung an: Vor den Eingängen A und B bewege sich ein durch statistische Mischung von Schwarz-, Grau- und Weißwerten entstandenes Muster mit variierender Geschwindigkeit. Dabei wird seine Helligkeit durch A und B abgetastet und in Funktionswerte übersetzt. Für die als viereckige Kästchen gezeichneten Übertragungsinstanzen setzte REICHARDT die einfachste lineare Kinetik sowie unterschiedliche Zeitkonstanten ein und berechnete dann die Stärke des Ausstroms aus dem theoretischen System für verschiedene Geschwindigkeiten des bewegten Musters. Fig. 7 zeigt graphisch das Ergebnis der Rechnungen. Der Ausstrom aus dem System erwies sich tatsächlich bei verschiedenen Geschwindigkeiten als verschieden groß. Er zeigte eine charakteristische Abhängigkeit von der Geschwindigkeit: Einen (bei logarithmischer Auftragung der Geschwindigkeit) linearen Anstieg bis zu einem mehr oder weniger ausgedehnten Maximum, und bei noch höherer Geschwindigkeit einen Abstieg von etwa der Steilheit des Anstiegs. Die verschiedenen Kurven entsprechen verschiedenen eingesetzten relativen Zeitkonstanten der Übertragungselemente F und H.
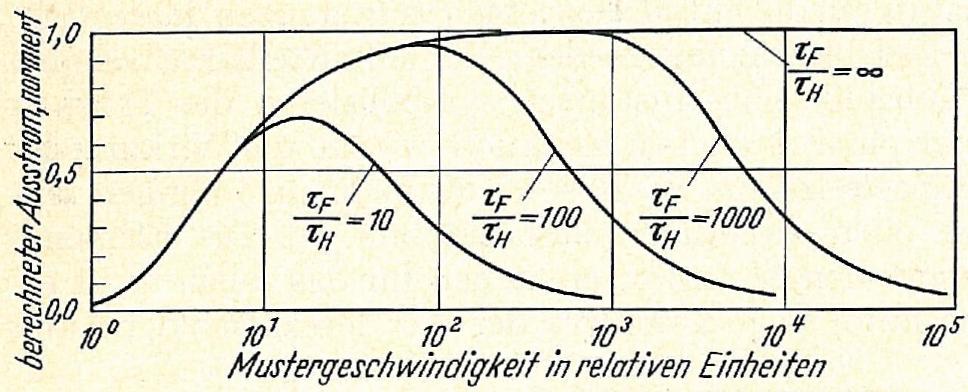 Fig. 7.
Ergebnis der mathematischen Untersuchung von REICHARDT [3]. τF und τH sind die Zeitkonstanten der Instanzen F und H (s. Fig. 6), für deren Verhältnis zueinander verschiedene Werte in die Rechnung eingesetzt worden waren. Die Kinetik der D-Instanzen war in diesen Kurven noch nicht berücksichtigt
Die auf Fig. 7 gezeigten Kurven stellten eine experimentell prüfbare Konsequenz aus dem auf Grund der ersten Experimente entworfenen Schaltbild dar, und ich führte ein entsprechendes Experiment durch. Fig. 8 zeigt die Versuchsanordnung: Der Streifenzylinder ist nicht wie gewöhnlich aus hellen und dunklen Streifen in regelmäßiger Abfolge zusammengesetzt, sondern die verschiedenen Helligkeitswerte folgen, entsprechend REICHARDs Voraussetzung, in unregelmäßiger Reihenfolge aufeinander.
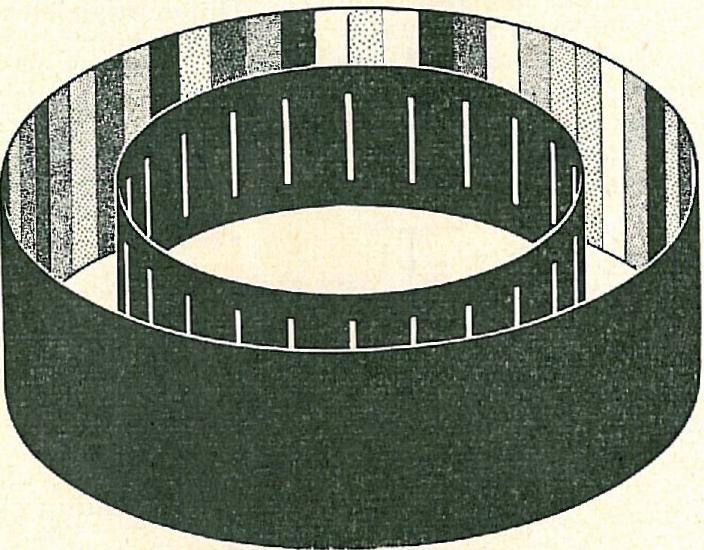 Fig. 8.
Reizanordnung zur Nachprüfung der rechnerischen Ergebnisse von REICHARDT im Verhaltens-Experiment [4b]
Die Messungen bestätigten die Voraussage (Fig. 9). Jetzt ist in der Senkrechten nicht mehr der theoretische Ausstrom aus dem System, sondern die im Experiment gemessene Reaktion der Käfer auf verschiedene Geschwindigkeiten des bewegten Musters aufgetragen. Die durchgezogene Linie zeigt eine der theoretischen Kurven, die offenen Kreise die Reaktion der Käfer. Sie liegen der ausgewählten theoretischen Kurve mit einer für Verhaltensexperimente außerordentlichen Genauigkeit an.
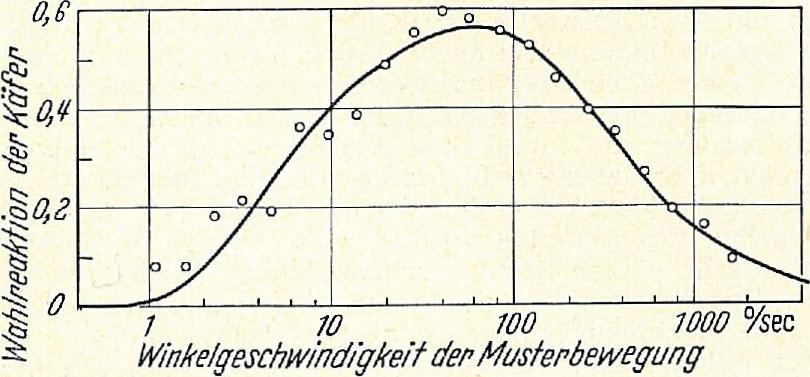 Fig. 9.
Reaktionen der Käfer auf verschiedene Geschwindigkeiten des Musters in der Reizanordnung Fig. 8. Die durchgezogene Kurve ist auf dem gleichen Wege errechnet wie die Kurven von Fig. 7, jedoch mit dem Wert 76 für τF/τH [4b]. — Wenn die Streifen, die das Muster zusammensetzen, viel schmaler sind als in Fig. 8, wenn also der Charakter der statistischen Mischung der Helligkeitswerte im Muster stärker ausgeprägt ist, ergibt sich eine Reaktionskurve mit einem negativen Abschnitt bei niedrigen Geschwindigkeiten [4c]. Darin offenbart sich die Kinetik der D-Instanzen, die in dem hier gezeigten Ergebnis von 1958 wegen der größeren Breite der Streifen (und dem damit verbundenen Mangel an kurzwelligen Fourier-Komponenten des Musters) noch nicht zum Ausdruck kam [5]
Eigenschaften der Übertragungsinstanzen
Durch das statistisch unregelmäßige Muster wurden wohl die Eigenschaften der Korrelation spezifisch auf die Probe gestellt; zur Bestimmung der Kinetik der anderen Übertragungselemente war aber eine große Anzahl weiterer Experimente nötig. Diese sowie die theoretischen Untersuchungen zur Auswertung der experimentellen Ergebnisse sind an anderer Stelle (HASSENSTEIN [4c], REICHARDT und VARJU [5], VARJU [6]) ausführlich veröffentlicht worden und sollen hier nur andeutungsweise erwähnt werden: Für den Grundversuch wurde ein Streifenmuster mit fließenden Übergängen zwischen weiß und schwarz verwendet, bei dem die Helligkeit sinusförmig zu- und abnahm. Fig. 10 zeigt die dabei gewonnene Reaktionskurve.
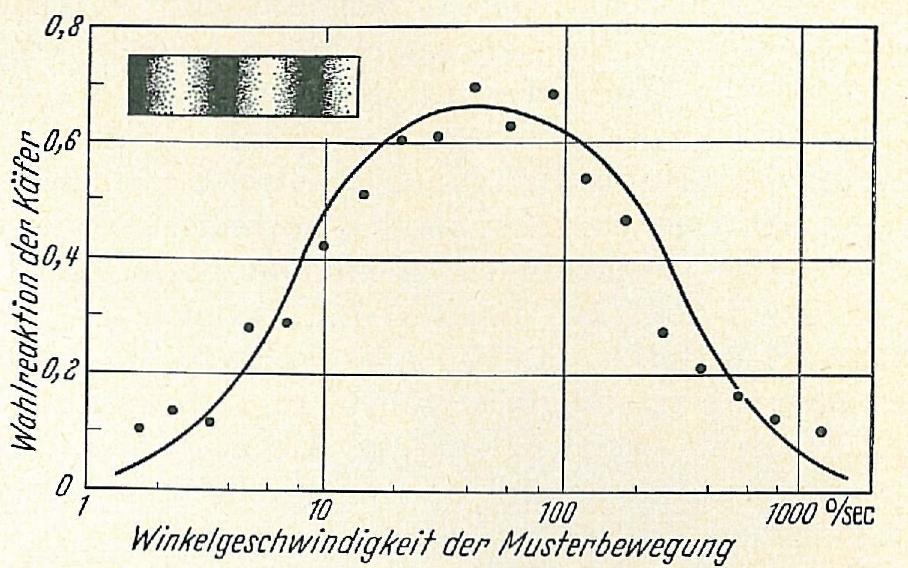 Fig. 10.
Reaktionsstärken bei variierender Geschwindigkeit eines Musters mit fließender sinusförmiger Variation der Helligkeit [4c]. Mit größer werdender Periodizitätskonstante des Musters verschiebt sich die gesamte Kurve ohne Änderung ihrer Form längs der Abszisse zu höheren Geschwindigkeiten. In diesem Versuch war die Wellenlänge einer Sinusschwankung, vom Zentrum des Zylinders aus gesehen, 66°. — Aus Form und Lage dieser Kurve ergab sich mathematisch zwingend die Kinetik der D-Instanzen, die sich dann nachträglich auch durch die negativen Reaktionen auf langsame Bewegung sehr feiner statistisch unregelmäßiger Streifenmuster bestätigte (s. Legende zu Fig. 9)
Schlußbetrachtung
Auf Grund einer Fülle von Experimenten, die trotz ihrer Verschiedenheit völlig kohärente Ergebnisse lieferten, können wir heute mit an Sicherheit grenzender Wahrscheinlichkeit aussprechen: Das in Fig. 6 gezeigte Blockschaltbild gibt funktionelle Zusammenhänge wieder, die sich im informationsverarbeitenden System des Käfers wirklich vorfinden. Die Bewegungsauswertung des optischen Systems des Käfers zur Steuerung seiner optomotorischen Reaktionen verwendet als Form des Zusammenwirkens benachbarter Sehelemente das mathematische Prinzip der Multiplikation nach Betrag und Vorzeichen. Eine solche Aussage klingt nun fremdartig und ungewohnt. Die beiden Begriffe "Bewegung" und "Multiplikation" scheinen gar nichts miteinander zu tun zu haben, sie scheinen vielmehr aus ganz verschiedenen Bereichen zu stammen. Ich will zu erklären versuchen, auf welcher Ebene der Zusammenhang zwischen ihnen zu suchen ist: Ich setze an bei einem dritten Begriff, dem des Korrelationskoeffizienten.
Der Korrelationskoeffizient ist ein Maß für den linearen statistischen Zusammenhang zwischen zwei Reihen von Daten beliebiger Art, z. B. Größe und Färbung von Samen, oder Unfallhäufigkeit im Straßenverkehr und Luftdruck. Wenn beide Wertreihen nichts miteinander zu tun haben und völlig unabhängig voneinander variieren, ergibt sich ein Korrelationskoeffizient von ±0. Sind die Werte streng linear voneinander abhängig, so ist der Korrelationskoeffizient =1. Die wichtigsten Operationen zur Gewinnung eines Korrelationskoeffizienten sind nun stets die Multiplikation zwischen denjenigen Werten der beiden Reihen, die zusammengehören (also dem gleichen Objekt angehören oder in die gleiche Zeit fielen), und die Mittelwertbildung aus den einzelnen Multiplikationsergebnissen. Die weiteren mathematischen Operationen, die noch zur Errechnung des Korrelationskoeffizienten gehören, erfüllen Nebenfunktionen, z. B. die der Normierung der Ergebnisse, so daß diese zuletzt zwischen 0 und 1 liegen.
Die Multiplikation hat somit für den Mathematiker eine Fähigkeit, die die Summation nicht besitzt: In der durchschnittlichen Höhe von Multiplikationsergebnissen vermag sich das Vorhandensein oder Fehlen von statistischen Beziehungen auszudrücken. Die Techniker haben "Korrelatoren" gebaut, die automatisch Korrelationskoeffizienten ermitteln und ebenfalls mit dem Mittel der Multiplikation und Mittelung arbeiten. Diesen Gedanken wende ich nun auf unser biologisches Beispiel an:
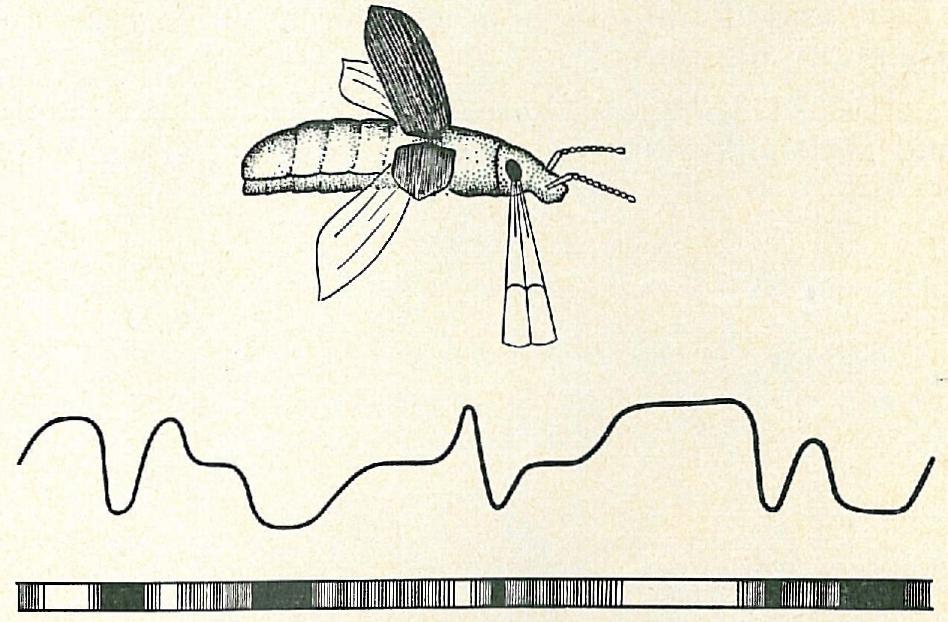 Fig. 11.
Schematische Darstellung der Situation der visuellen Bewegungswahrnehmung in freier Natur. Erklärung im Text
Ein Käfer fliege über einen unregelmäßig gefärbten Untergrund (Fig. 11). Dabei nehmen seine Fazetten, von denen zwei zur Verdeutlichung stark vergrößert gezeichnet wurden, Helligkeitsschwankungen auf, die schematisch oberhalb des Untergrundes angedeutet sind. Jedes der beiden Ommatidien nimmt, wenn sie in Längsrichtung hintereinander stehen, genau die gleiche Helligkeitsvariation wahr, das zweite allerdings jeweils etwas später als das erste. Nehmen wir nun an, die Relativbewegung zwischen Auge und Umwelt wäre überaus langsam. Wenn das zweite Ommatidium einen Seheindruck empfängt, so ist es schon lange Zeit her, daß das erste Ommatidium den entsprechenden Seheindruck hatte. Dieser Seheindruck sei darum inzwischen — wollen wir annehmen — schon völlig abgeklungen. Was daher an Meldungen von den beiden Ommatidien her in dem multiplizierenden Funktionsglied zusammentrifft, rührt von verschiedenen Stellen der Außenwelt her und hat normalerweise keine statistischen Beziehungen zueinander. Der Korrelationskoeffizient ist daher null, desgleichen — im zeitlichen Mittel — das Multiplikationsergebnis. Also: Geringe Geschwindigkeit führt zum Korrelationskoeffizienten 0 zwischen den Meldungen benachbarter Ommatidien, und dies entspricht dem durchschnittlichen Multiplikationsergebnis ±0.
Nun nehmen wir eine hohe Geschwindigkeit zwischen Auge und Umwelt an: Wenn jetzt das zweite Ommatidium eine Meldung empfängt, ist die identische Meldung erst vor kurzer Zeit im ersten Ommatidium gegenwärtig gewesen. Sie ist also noch frisch und wenig abgeklungen. Wenn sich jetzt die Meldungen beider Ommatidien in der multiplizierenden Instanz treffen, so treffen die Meldungen des zweiten Ommatidiums auf die noch nachklingenden entsprechenden Meldungen aus dem ersten Ommatidium. Es treffen also ähnlichere Meldungsströme aufeinander. Der Korrelationskoeffizient zwischen beiden ist größer, folglich auch die Multiplikationsergebnisse. Höhere Geschwindigkeit bewirkt also bessere Korrelation zwischen den gleichzeitigen Meldungsströmen benachbarter Ommatidien und damit ein höheres Durchschnittsergebnis der Multiplikation.
Hier liegt der Zusammenhang zwischen Bewegung und Multiplikation: Schnellere Bewegung erzeugt bei träge übertragenden Eingängen eine höhere Korrelation, und Multiplikation und Mittelung sind fähig, diese auszuwerten und in Funktionswerten auszudrücken.
Somit offenbart sich uns das Bewegungssehen des Käfers als ein typischer Prozeß der Informationsverarbeitung: In der Richtung und der Stärke der optomotorischen Reaktion der Versuchstiere spiegelt sich die in der Außenwelt gesehene Richtung und Geschwindigkeit von Bewegung wider. Die Information hierüber gelangt aber nicht als fertiger Wert ins Innere des Tieres, sondern in der Form von zeitlichen Beziehungen zwischen den Meldungen benachbarter Sinneselemente. Die Information über die Bewegung ist in diesen Beziehungen enthalten — aber um sie in fertiger Form als Funktionswert zu gewinnen, sind mathematische Operationen notwendig. Sie werden vom Sinnes- und Nervensystem des Organismus durchgeführt. Im Fall des Bewegungssehens des Käfers handelt es sich um einen modifizierten Prozeß der Korrelation.
Auch das Bewegungssehen der Biene beruht auf dem Korrelationsprinzip (KUNZE [7]).
Literatur
[1] HASSENSTEIN, B.: Z. vergl. Physiol. 33, 301-326 (1951). [2a] HASSENSTEIN, B., u. W. REICHARDT: Z. Naturforsch. 8b, 518-524 (1953). [2b] HASSENSTEIN, B., u. W. REICHARDT: Z. Naturforsch. 11b, 513-524 (1956). [3] REICHARDT, W.: Z. Naturforsch. 12b, 448-457 (1957). [4a] HASSENSTEIN, B.: Z. vergl. Physiol. 40, 556-592 (1958); [4b] Z. Naturforsch. 13b, 1-6 (1958); [4c] Z. Naturforsch. 14b, 659-674 (1959). [5] REICHARDT, W., u. D. VARJU: Z. Naturforsch. 14b, 674-689 (1959). [6] VARJU, D.: Z. Naturforsch. 14b, 724-735 (1959). [7] KUNZE, P.: Z. vergl. Physiol. (1961; im Druck). [8] KIRSCHFELD, K.: Z. vergl. Physiol. (1961; im Druck).Forschungsgruppe Kybernetik des Max-Planck-Instituts für Biologie, Tübingen.
*) Vortrag, gehalten auf der 101. Versammlung der Gesellschaft Deutscher Naturforscher und Ärzte am 26. September 1960 in Hannover. Bericht über Untersuchungen, die in der Forschungsgruppe Kybernetik des Max-Planck-Instituts für Biologie, Tübingen, von Biologen und Physikern (BERNHARD HASSENSTEIN, WERNER REICHARDT, DEZSÖ VARJU, PETER KUNZE, KUNO KIRSCHFELD) gemeinsam durchgeführt wurden.