


Sonderdruck aus "Kybernetik", 4. Band, 6. Heft, Juni 1968, S. 209-223, Springer-Verlag, Berlin · Heidelberg · New York
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (28 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Modellrechnung zur Datenverarbeitung beim Farbensehen des Menschen
Bernhard Hassenstein
Übersicht. Die Fragestellung ist in Abb. 4 veranschaulicht: Welcher Formalismus beschreibt die Datenverarbeitung, die zwischen den Meldungen der Farbreceptoren (Zapfen) und den — durch psychophysische Messungen zugänglichen — Farbenwahrnehmungen vermittelt ? Als Eingangsdaten werden die Absorptionskurven Abb. 2 verwendet, deren Form und Lage den von MACNICHOL et al. [2] gemessenen Extinktionskurven der Zapfensehstoffe sowie anderen Messungen [1, 3, 4] entspricht. Der bisher [8, 9] meist vermutete Antagonismus 1. zwischen den Meldungen der Grün- und der "Rot"-Zapfen und 2. zwischen den Meldungen der Blau-Zapfen und der Summe aus den Grün- und den "Rot"-Meldungen (s. Abb. 11) erweist sich als unvereinhar mit einem psychophysischen Befund: daß ROT-Wahrnehmungen sowohl von langwelligem (etwa 580 bis 700 nm) als auch von kurzwelligem Licht (etwa 465—400 nm) induziert werden (Abb. 14). Darum wird ein anderes, ebenso einfaches Verrechnungsschema untersucht Blau-Meldungen (Sehstoff P 445) als Antagonisten zu Gelb-Meldungen (Sehstoff P 570); Grün-Meldungen (Sehstoff P 535) als Antagonisten zur Summe von Blau- und von Gelb-Meldungen (Abb. 12, 16). Dieser Formalismus erlaubt es, folgende Tatsachenbereiche qualitativ und annähernd auch quantitativ richtig vorauszusagen bzw. theoretisch zu deuten: Die Farbtonverteilung im sichtbaren Spektrum (Abb. 13, 14, 7); die wechselseitige Zuordnung der kompensativen Farben (Gegenfarben. Abb. 5); die allgemeine Form der Farbtonunterscheidungskurve (Abb. 8); sowie die Anzahl und die qualitativen Kennzeichen der klinisch bekannten Farbensinnstörungen (Abb. 10 und 18 bis 24). Ferner ergibt sich eine physiologisch plausible Interpretation für die Phänomene der Farbenperimetrie (Abb. 9).
Einleitung
Durch die Untersuchungen von RUSHTON [1], MACNICHOL u. Mitarb. [2], WALD u. Mitarb. [3] sowie BLACKWELL u. Mitarb. [4] sind die Zapfensehstoffe des Menschen, charakterisiert durch ihre Licht-Absorptionskurven, recht genau bekannt geworden. Hierdurch hat sich eine längst aufgestellte Vermutung endgültig bestätigt: Die subjektiven Farbenempfindungen des Menschen bieten kein umnittelbares Abbild der photochemischen Vorgänge in den Sehfarbsfoffen bzw. der Erregungen der Farbsinneszellen: was wir an Farben "sehen", entsteht erst durch Wechselbeziehungen zwischen den Meldungen der verschiedenen Zapfenarten, also durch eine Datenverarbeitung. Die folgende Untersuchung behandelt auf der Basis der eben zitierten Ergebnisse die Frage: Welcher Art ist die Datenverarbeitung, die die Meldungen der Receptoren in diejenigen physiologischen Informationswerte transformiert, welche sich in unseren bewußten Farbenwahrnehmungen widerspiegeln ?
Als einen Schritt zur Lösung dieser Frage legt die folgende Arbeit eine Modellrechnung vor: Aus dem unübersehbaren und teilweise widersprüchlichen Material von Beobachtungs- und Meßdaten über das Farbensehen des Menschen wird ein definiertes Ensemble von Einzeldaten ausgewählt, das für das zu lösende Problem möglichst repräsentativ ist. An Hand dieser unübersehbaren Menge von Voraussetzungen wird eine Lösung des Problems vorgelegt.
Ich bespreche in dieser Arbeit keine Hypothesen anderer Autoren zur Lösung des gestellten Problems, weil deren hinreichende Würdigung wegen der außerordentlichen Anzahl der bisherigen theoretischen Ansätze den Rahmen dieser Arbeit sprengen würde; es soll in einer späteren Arbeit geschehen. Ich verweise in dieser Sache auf [14] Abschnitt 22, vor allem dort auf Tabelle 8, S. 831. Für die langjährigen einschlägigen Arbeiten von HURVICH und JAMESON verweise ich auf [16] und die dort zitierte Literatur.
A. Rahmen der Modellüberlegung
Abb. 1 skizziert — als Rahmen für die folgenden Überlegungen — den Zusammenhang zwischen Eingangs- und Ausgangsdaten beim Farbensehen des Menschen: Die Lichtquanten werden von den Sehstoffen der Lichtsinneszellen absorbiert; die dadurch verursachten photochemischen Prozesse veranlassen Erregungen, also Änderungen des physiologischen Zustands der Sinneszellen; die Erregungen bestimmen, welche nervösen Signale ausgesandt werden; diese Signale sind die Eingangswerte für die physiologische Datenverarbeitung; deren Ausgangswerte, über deren Natur und deren Lokalisation innerhalb des Gehirns wir allerdings noch nichts wissen, bilden sich als Empfindungen (Farbenempfindungen) im Bewußtsein des Menschen ab. Über die Empfindungen berichtet dann die Versuchsperson.
Für die Abbildung der Ausgangswerte der Datenverarbeitung in den Farbenempfindungen (ein Prozeß, der die psychophysische Schranke durchbricht), wird — wie in der Sinnesphysiologie — eine "1:1-Übersetzung" vorausgesetzt. Wenn sich eine Versuchsperson über ihre Farbwahrnehmungen in Worten oder auf andere Weise äußert, überschreitet sie damit abermals die psychophysische Schranke, diesmal gleichsam in der Gegenrichtung; hierfür wird wiederum im Prinzip eine "1:1-Übersetzung" vorausgesetzt, (deren Problematik hier nicht aufgerollt werden soll).
Abb. 1 soll deutlich machen, auf Grund welcher Voraussetzungen die Absorptionseigenschaften der Sehstoffe als repräsentativ für die Eingangsgrößen, und die Aussagen von Versuchspersonen über ihre Farbenwahrnehmungen als repräsentativ für die Ausgangsgrößen der Datenverarbeitung beim Farbensehen gelten können: Absorptionskurven und Wahrnehmungen sind zwar nicht identisch mit den Ein- bzw. Ausgangsgrößen der Datenverarbeitung; für alle dazwischengeschalteten Übertragungsinstanzen kann man aber — bis zum Beweis des Gegenteils — eine "1:1-Übertragung" voraussetzen.
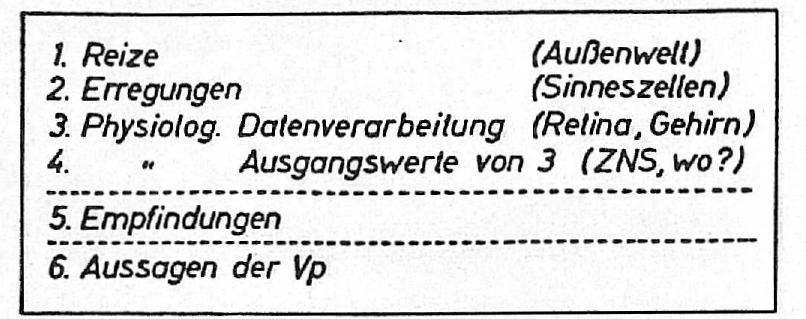 Abb. 1.
Zusammenhang zwischen den Eingangs- und den Ausgangsdaten beim Farbensehen des Menschen. Die waagerechten gestrichelten Linien deuten die "psychophysische Schranke" an. Näheres s. Text
B. Auslese von empirischen Daten für die Modellrechnung
B 1. Eingangsdaten
Über die Sinneselemente, die die Eingangsdaten für das Farbensehen des Menschen liefern, wird entsprechend den Ergebnissen der eingangs genannten Autoren folgendes vorausgesetzt: Es gibt drei Arten von Zapfen. Jeder Zapfen enthält nur eine Art von Sehstoffen. Die drei Sehstoffe besitzen eingipfelige Absorptionskurven. Die Absorptionskurven haben, sofern man sie über der Frequenzskala der elektromagnetischen Wellen des sichtbaren Lichtes aufträgt, eine beinahe gleiche oder sogar genau übereinstimmende Form; sie sind jedoch in der Abszissenrichtung gegeneinander verschoben. Die Absorptionsmaxima liegen etwa bei: 445, 535 und 570 nm.
Diese Aussagen beruhen auf folgenden Meßdaten: Den von RUSHTON [1] physikalisch und psychophysisch gemessenen Extinktions- bzw. Absorptionskurven der Sehfarbstoffe Chlorolab und Erythrolab; den von MACNICHOL u. Mitarb. [2] gewonnenen Extinktionskurven der Endglieder von isolierten Zapfen aus der Retina von Primaten; sowie — für die Kurve des im Blaubereich absorbierenden Sehstoffs — der von BLACKWELL [4] gemessenen Tagesseh-Helligkeitskurve von solchen Zapfenmonochromaten, die allein über den Sehstoff des Blaubereichs verfügen.
Extinktion und Absorption brauchen im Prinzip nicht streng miteinander korreliert zu sein. Im Fall der Sehstoffe ist jedoch überall, wo man diesen Zusammenhang nachprüfte — sowohl beim Rhodopsin als auch bei den Zapfensehstoffen [1] — eine strenge Korrelation gefunden worden. Deswegen werden die relativen Extinktionsdaten in der folgenden Modellrechnung von vorneherein als voll übereinstimmend mit den relativen Absorptionsdaten der Sehstoffe betrachtet. — Extinktionsmessungen erfassen denjenigen Anteil des Lichtes, der beim Durchtritt durch die Sehzellen bzw. durch deren Sehstoffe verlorengeht, sei es im lebenden Auge des Menschen [1], sei es bei der Durchstrahlung einzelner isolierter Zapfen [2]. (In beiden Fällen sind die Meßdaten dimensionslose Größen, weil das der Extinktion anheimgefallene Licht als Anteil des eingestrahlten Lichtes angegehen wird; deswegen ist es ohne Belang, ob hier Energien oder Quantenflüsse gemessen und verglichen werden.) Absorptionsdaten werden dagegen im Auge nicht unmittelbar gewonnen, sondern auf dem Umweg über psychophysische Effekte; denn diese können nur auf physiologisch Wirksamen, d.h. also im Sehstoff absorbierten Lichtquanten beruhen. Nur diese sind für the Modellrechnung relevant; deswegen sind die Sehstoffe auf Abb. 2 und 3 durch ihre relativen Absorptionsdaten charakterisiert, obwohl die genaue Kurvenform aus Extinktionsmessungen [2] entnommen wurde.
Als Modelleingangskurven setze ich drei in ihrer Form identische Absorptionskurven voraus, deren Absorptionsmaxima bei 445, 535 und 570 nm liegen (Abb. 2). Als Kurvenform wählte ich die nach Augenmaß typisierte und vereinfachte ungefähre Durchschnittskurve der Extinktionsmessungen des 570 nm-Sehstoffs von MACNICHOL u. Mitarb. [2]. — Da die Modellrechnungen später mit den Ergebnissen psychophysischer Messungen in Beziehung gesetzt werden sollen, wurden die vorausgesetzten Absorptionskurven der Abb. 2 dann mit der spektralen Durchlässigkeitskurve der Augenmedien (nach Abb. 2) multipliziert und danach erneut auf gleiche Maxima normiert (Abb. 3).
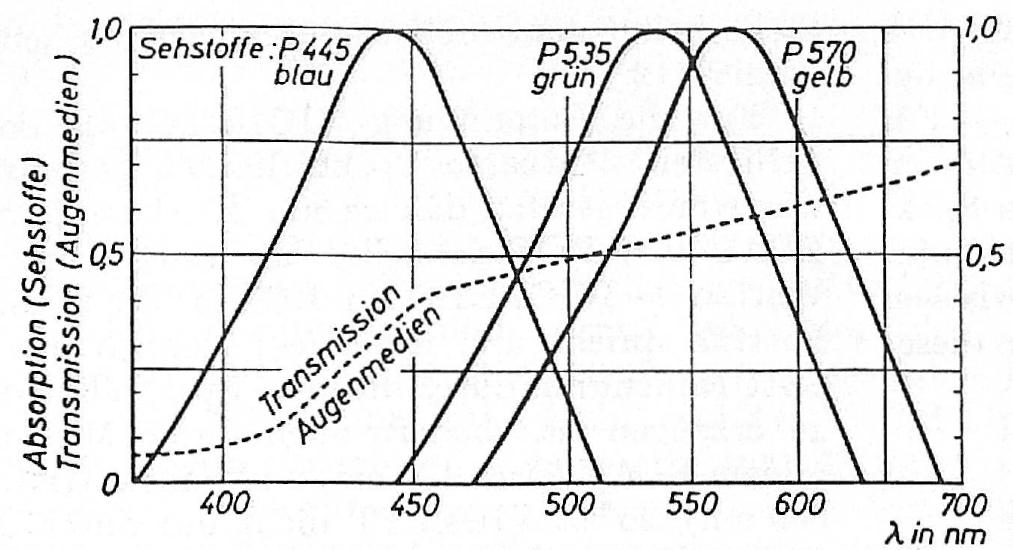 Abb. 2.
Als Modelleingangskurven vorausgesetzte Absorptionskurven dreier Sehstoffe sowie die spektrale Durchlässigkeitskurve der Augenmedien nach [14], S. 813, Tabelle 2. — Die Absorptionskurven geben den Anteil N1 des eingestrahlten Lichtes N0 an, der im Sehstoff absorbiert wird, also N1/N0 (dimensionslose Zahl); die Kurven sind so normiert, daß die Maximalabsorption gleich 1 gesetzt ist. Die Transmissionskurve gibt denjenigen Anteil T1 des ins Auge fallenden Lichtes T0 an, der zur Retina gelangt, also T1/T0 (ebenfalls dimensionslos)
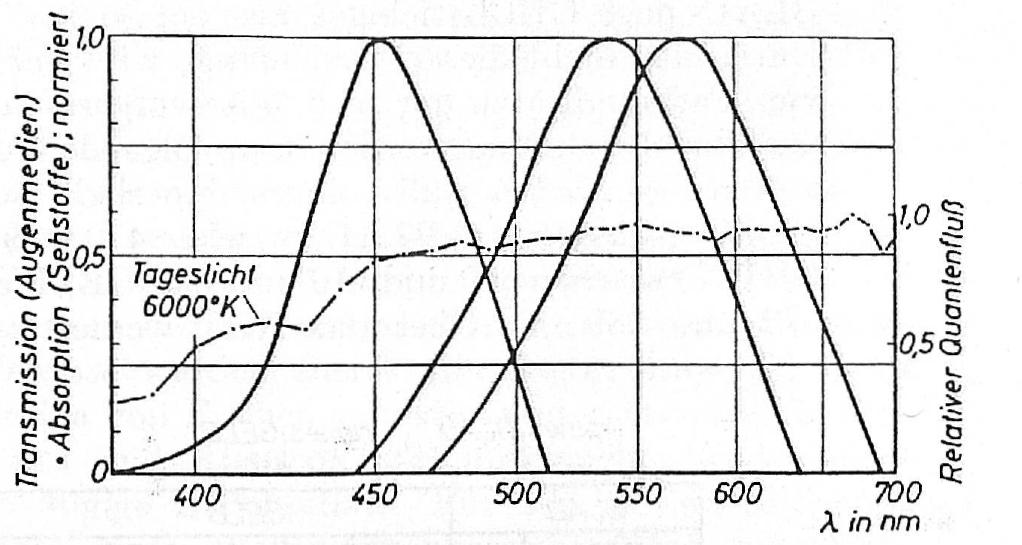 Abb. 3.
Die Modelleingangskurven der Abb. 2, multipliziert mit der spektralen Durchlässigkeitskurve der Abb. 2. Die Kurvenintegrale repräsentieren unter den Voraussetzungen der Modellrechnung die relative Absorption von Quanten, wenn "quantengleiches Licht" in ein intaktes menschliches Auge fällt und die Augenmedien durchsetzt hat. — Die strichpunktierte Kurve gibt den relativen Quantenfluß des Tageslichts wieder (errechnet nach Tabelle 1, 4, S. 9 aus [20])
Als Abszisse wählte ich in Abb. 2 und 3 nicht die lineare Wellenlängenskala, sondern eine für die Wellenzahlen (λ-1) lineare Skala, die deswegen gegenüber der Wellenlängenskala verzerrt ist; es sind daran jedoch der besseren Orientierung halber die Wellenlängen aufgetragen. Die Gründe dafür sind folgende: 1. Das Integral über formgleiche Absorptionskurven gibt bei linearer Wellenzahlenskala und bei "quantengleichem Spektrum" die Absorption gleicher Anzahlen von Quanten unabhängig von der Position der Absorptionskurve auf der Abszisse an. Da man die Sehstoffe eher als "Quantenzähler" denn als Energiemesser (Thermosäule, Aktinometer) auffassen muß, ist diese Auftragung sinnvoll, weil sich bei ihr die relative Anzahl der absorbierten Quanten ohne weitere Umrechnung aus den Flächenintegralen der Absorptionskurven ablesen läßt. 2. Die Annahme von verschiedenen Zapfensehstoffen mit Absorptionskurven gleicher Form, die nur längs der Wellenzahlenskala gegeneinander verschoben sind, ist auch für Sehstoffe vom Rhodopsin-Typus ausgesprochen und im Dartnall-Nomogramm [19] niedergelegt worden. 3. Empirisch gleichen einander — im Rahmen der Fehlergrenzen — die gemessenen Extinktionskurven der drei Sehstoffe (MACNICHOL u. Mitarb. [2]), wenn man sie auf der Wellenzahlenskala aufträgt, nicht aber bei der Auftragung auf der linearen Wellenlängenskala.
Die drei Sehstoffe bezeichne ich in dieser Arbeit nach den Positionen ihrer Absorptionsmaxima — s. Abb. 2 — mit den Farbworten blau, grün und gelb, und zwar mit kleinen Buchstaben. Große Buchstaben kennzeichnen dagegen im folgenden stets entweder die Farben-Empfindungen BLAU, GRÜN, GELB etc. oder deren (in unserer Modellvorstellung — s. Abb. 1 — vorausgesetzte) physiologische Basis.
B 2. Ausgangsdaten
Als Ausgangswerte der Datenverarbeitung beim Farbensehen des Menschen gelten in dieser Untersuchung die Farben-Empfindungen (Abb. 4). Sechs Gruppen von psychophysischen Beobachtungs- und Meßergebnissen bilden die Voraussetzungen für die Modellrechnung; sie müssen sich also aus den Eingangswerten (Abb. 3) durch den zu ermittelnden Prozeß der Datenverarbeitung ergeben:
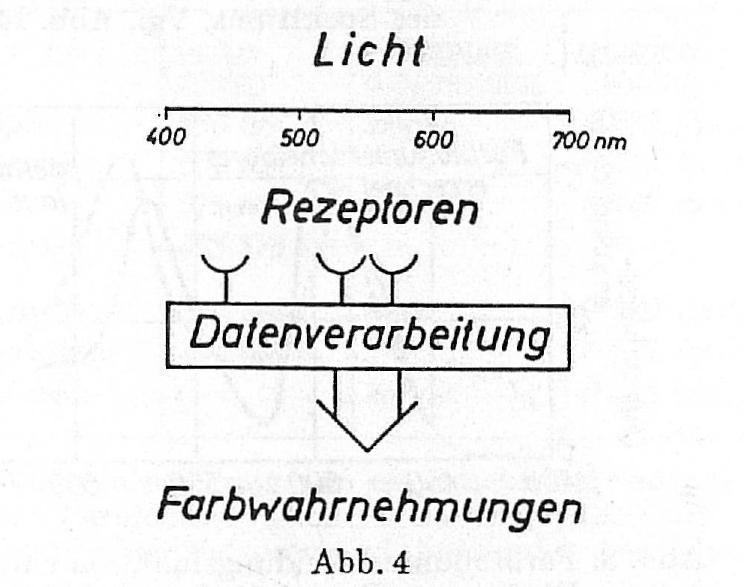 Abb. 4.
Graphische Veranschaulichung der Fragestellung: Vorausgesetzt sind die Absorptionskurven der Abb. 2 bzw. 3 als Eingang, bestimmte psychophysische Meßergebnisse (Wahrnehmungen, Empfindungen ; s. Abschnitt B2) als Ausgang. Gefragt ist nach der vermittelnden Datenverarbeitung
a) Gegenfarben (kompensative Farben). Bestimmte reine Spektralfarben im kurzwelligen Bereich sind bestimmten reinen Spektralfarben des langwelligen Bereichs derart zugeordnet, daß die Mischung der beiden Partner bei einem bestimmten Intensitätsverhältnis farblos aussieht. Abb. 5 zeigt diese Zuordnung auf. — Für die Spektralfarben in der Mitte des Spektrums (zwischen etwa 495 und etwa 565 nm) existieren keine kompensativen reinen Spektralfarben; doch übernehmen Mischungen aus kurz- und langwelligen Lichtern diese Rolle.
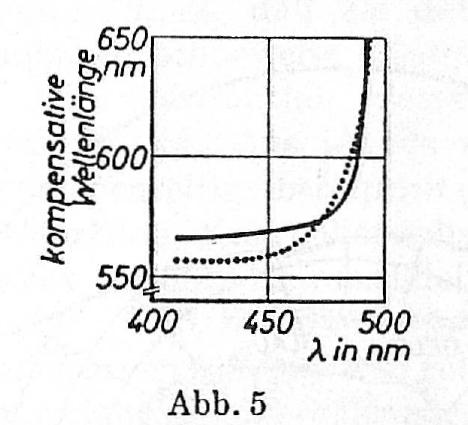 Abb. 5.
Zuordnung von Spektralfarben zu ihren Komplementärfarben. Werte entnommen aus: [18], S. 307, Tabelle 37. Die punktierte Kurve gibt das Ergebnis der Modellrechnung wieder (s. Abschnitt E3)
b) Unvereinbare Qualitäten. BLAU wird stets als qualitativ unterschiedlich zu GELB empfunden, GRÜN als qualitativ unterschiedlich zu ROT. Innerhalb dieser beiden Farbenpaare schließt ein Partner den anderen an der gleichen Stelle des Gesichtsfeldes aus: Es gibt keinen gleichzeitig bläulichen und gelblichen Farbton, ebensowenig einen gleichzeitig grünlichen und rötlichen. Dagegen schließen alle anderen Farbtonmischungen einander nicht aus: Es gibt bläuliches GRÜN, bläuliches ROT etc. Abb. 6 ist eine graphische Darstellung dieser Verhältnisse.
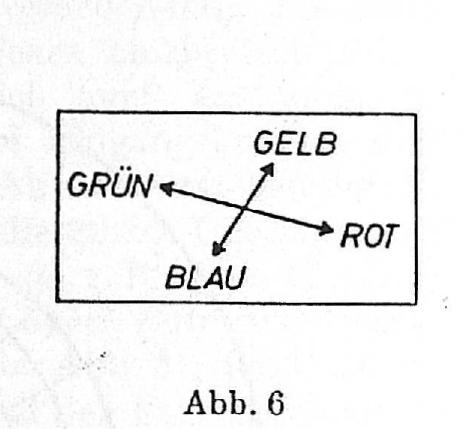 Abb. 6.
Graphische Darstellung der "unvereinbaren Quantitäten" beim Farbensehen des Menschen. Die einander gegenüberliegenden Qualitäten schließen sich am gleichen Ort des Gesichtsfelds gegenseitig aus. Gleichzeitig handelt es sich bei ihnen umn Gegenfarben (kompensative Farben)
Für die Ausgangswerte der Datenverarbeitung ergibt sich aus dem Phänomen der unvereinbaren Farbqualitäten, daß ein Ausgangswert "BLAU" niemals mit einem Ausgangswert "GELB" identisch sein kann. Das gleiche gilt für GRÜN und ROT. Die physiologischen Reprätsentanten für BLAU müssen daher als getrennt von denen von GELB, die von GRÜN als getrennt von denen von ROT aufgefaßt werden. Dies geschieht in Anwendung des in Abschnitt A angegebenen Prinzips der 1:1-Beziehung zwischen den physiologischen Ausgangswerten der Datenverarbeitung und den Empfindungen: Qualitativ unterschiedliche und unvereinbare Empfindungen repräsentieren danach unterschiedliche physiologische Ausgangswerte.
c) Zuordnung der spektralen Wellenlängen zu den Qualitäten. Die meisten reinen Spektralfarben lösen Farbenempfindungen aus, die zwei der unter B 2b (Abb. 6) genannten Qualitäten enthalten; beispielsweise wird 485 nm i eindeutig BLAU-GRÜN empfunden. Geht man innerhalb des Spektrums von einer solchen Mischfarbe aus und bewegt sich langsam in Richtung auf längere oder kürzere Wellenlängen, so nimmt jeweils der Charakter der einen der beiden in den Mischfarben enthaltenen Qualitäten ab, der andere zu. Dabei gelangt man schließlich an eine Spektralfarbe, bei welcher die zuvor abnehmende Farbqualität gar nicht mehr empfunden wird. Hier wird von den vorhin genannten Qualitäten also nur noch eine wahrgenommen; es handelt sich also um eine reine Farbempfindung (engl. full colour). — Setzt man dann die Blickbewegung längs des Spektrums in der bisherigen Richtung fort, so erscheint bald eine neue Qualität, die der zuvor abnehmenden und verschwundenen nicht vereinbar ist (Unvereinbarkeit im Sinne des Abschnitts B 2b). Beispielsweise verschwindet bei der Wanderung von BLAU-GRÜN zu längerwelligen Spektralfarben zunächst der BLAU-Anteil; danach taucht — von etwa 510 nm an — ganz langsam ein GELB-Anteil im GRÜN auf, der dann weiterhin zunimmt. — Diejenige Spektralfarbe, bei welcher der BLAU-Anteil bereits verschwunden war, sich aber auch noch kein GELB-Anteil zeigte, ist ein weder BLAU- noch GELBstichiges, also ein "reines" GRÜN. Durch das Licht dieser Wellenlänge wird nur eine der vier Farbqualitäten der Abb. 6 hervorgerufen. — Für die Modellrechnung werden nun folgende Positionen von reinen Farben (full colours) innerhalb des Spektrums vorausgesetzt: BLAU zwischen 470 und 480 nm ; GRÜN zwischen 500 und 510 nm ; und GELB zwischen 570 und 580 nm. Über das ROT werden an dieser Stelle keine Voraussetzungen gemacht; s. jedoch Abschnitt G 2.
Für die Empfindung VIOLETT, die den kurzwelligsten sichtbaren Spektralfarben zugeordnet ist, wird vorausgesetzt, daß sie eine Mischempfindung aus BLAU und ROT darstellt, daß also — mit anderen Worten — VIOLETT ein RÖTLICHES BLAU ist. Hierfür spricht u.a. folgendes: Ähnlich wie BLAU-GRÜN nicht nur durch die reine Spektralfarbe 485 nm zu erzeugen ist, sondern auch durch Mischung von reinem BLAU (etwa 475 nm) und reinem GRÜN (etwa 505 nm), so ist VIOLETT nicht nur durch die reine Spektralfarbe 420 nm, sondern auch durch Mischung von reinem BLAU (etwa 475 nm) und SPEKTRAL-ROT (700 nm) zu erzielen.
Das unter Abschnitt B 2b und B 2c Gesagte ergibt für die Verteilung der vier Qualitäten BLAU, GELB, GRÜN und ROT innerhalb des Spektrums die Darstellung von Abb. 7. Diese wird der Modellrechnung als repräsentativ für die Ausgangswerte der Datenverarbeitung zugrundegelegt. — Besonders auffällig ist das Auftreten der Komponente ROT sowohl am lang- wie am kurzwelligen Ende des Spektrums (s. hierzu auch Abb. 14 und [16]).
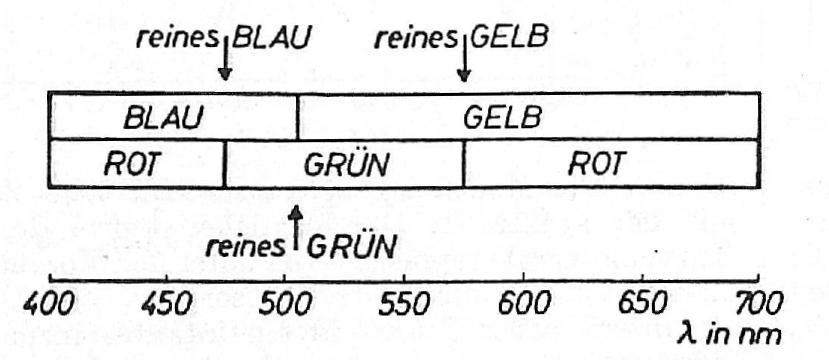 Abb. 7.
Verteilung der "unvereinbaren Farbtöne" der Abb. 6 längs des Spektrums (ohne Berücksichtigung der Farb-Intensitäten), sowie Angabe der drei "reinen Farbtöne" innerhalb des Spektrums. Vgl. Abb. 14
Die Farbtonunterscheidungsfunktion in Abhängigkeit von der Wellenlänge des Lichtes ist in Abb. 8 — allerdings in einer anderen als der üblichen Weise — abgebildet: Nicht die gemessenen Schwellen wurden aufgetragen, sondern ihre Kehrwerte. Dadurch ist erreicht, daß die Kurve die Unterscheidungsgüte oder Unterschiedsempfindlichkeit wiedergibt: Gute Farbtonunterscheidung ergibt hohe, schlechte Unterscheidung niedrige Maßzahlen der Unterschiedsempfindlichkeit.
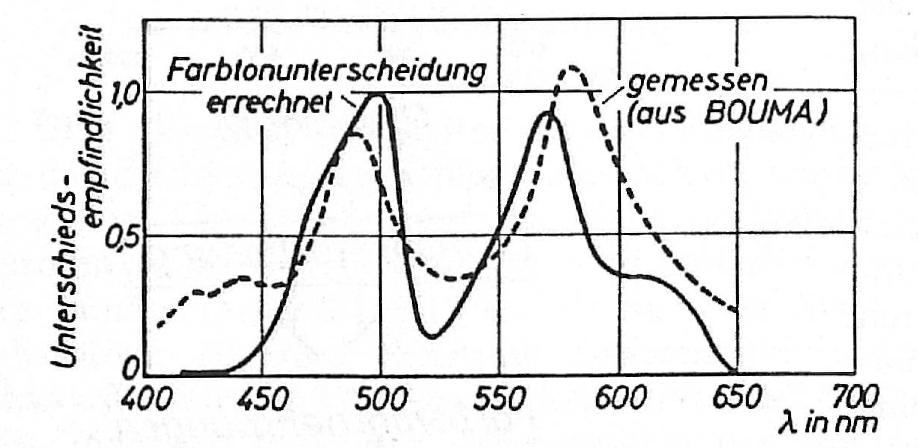 Abb. 8.
Farbtonunterscheidungsfunktion empirisch — berechnet aus Werten von BOUMA [15] — und theoretisch unter den Voraussetzungen der Modellrechnung, jedoch mit normiertem Farbtonunterschied zwischen den benachbarten Farbtönen BLAU, GRÜN, GELB, ROT, sowie ohne Berücksichtigung des unterschiedlichen WEISS-Gehalts dieser Farbtöne (s. [16] und Abschnitt E4)
e) Farbenperimetrie (Abb. 9). Der äußerste Bereich des Gesichtsfeldes ist auch beim voll Farbentüchtigen total farbenblind. Zentralwärts schließt sich ein weiter peripherer Bereich des Sehfeldes an, der partiell farbenblind ist: Nur die Empfindungen BLAU und GELB sind von dort her hervorzurufen, nicht aber GRÜN und ROT. Das vorzuschlagende Modell muß demnach, wenn möglich, der funktionellen Selbständigkeit und Unabhängigkeit eines BLAU-GELB-Gegenfarbensystems gegenüber dem GRÜN-ROT-System gerecht werden. — Darin liegt — neben den Unvereinbarkeitsverhältnissen der Farbenempfindungen (B 1b) — ein weiterer Grund dafür, vier separate Farbmeldungsausgänge aus dem Datenverarbeitungssystem vorauszusetzen: BLAU und GELB, GRÜN und ROT.
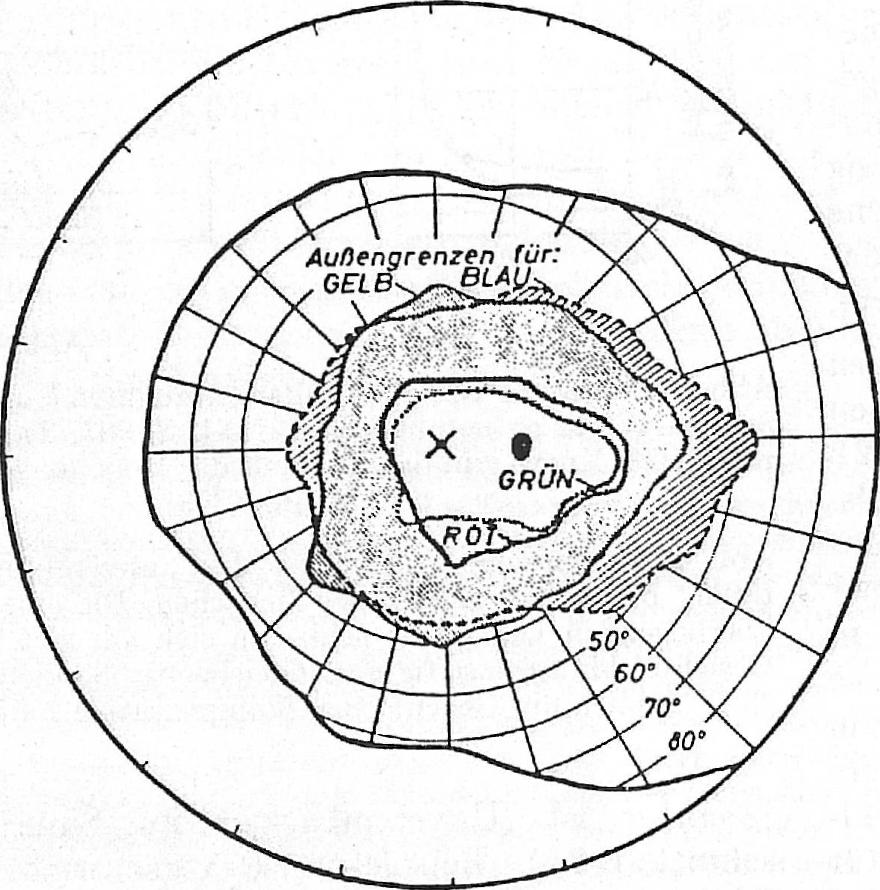 Abb. 9.
Schema der Farbentüchtigkeit der Netzhaut. Im innersten Feld sind das Zentrum der Fovea und der blinde Fleck angedeutet. Aus [18], Fig. 20, S. 104, umgezeichnet. — Der Tatsache, daß die Außengrenzen für BLAU und GELB, und ebenso diejenigen von GRÜN und ROT nach den bisherigen Messungen nur ungefähr, nicht aber genau übereinzustimmen scheinen wurde in der Modellüberlegung nicht Rechnung getragen.
f) Farbadaptation und "Neutralstimmung" des Farbensehens. Überwiegt in einem Teil des Gesichtsfeldes eine Farbe für längere Zeit, so blaßt sie allmählich ab. Wird die überwiegende Farbe dann schnell durch farbneutrales Licht ersetzt, so erscheint an der betreffenden Stelle des Gesichtsfeldes subjektiv ein anderer Farbton (successiver Farbenkontrast). Für die Modellrechnung wird — möglicherweise ist dies eine Vereinfachung der Tatsachen — vorausgesetzt, daß der als "Nachbild" subjektiv erscheinende Farbton der kompensativen Farbe (Gegenfarbe) des zuvor gebotenen Lichtes entspricht.
Durch die Kompensationsreaktionen auf das Überwiegen bestimmter Farhen ist indirekt eine physiologische Ruhelage definiert, in der der Korrekturmechanismus nicht anspricht. Diese Ruhelage, die "Neutralstimmung", stellt sich bei einem Aufenthalt von einigen Minuten in völliger Dunkellheit ein (bevor noch die Dunkeladaptation bis zum Stäbchensehen, d. h. bis zum Wirksamwerden des Sehpurpurs vorgeschritten ist). Als "neutrale Beleuchtung" würde man sinngemäß diejenige Beleuchtung definieren, die dem Neutralzustand der Farbadaptation entspricht, d. h. ihn ungeändert läßt. Das müßte bedeuten, von dem neutralen Licht würden "physiologisch gleich viel" BLAU und GELB-Meldungen, und ebenso "physiologisch gleich viel" GRÜN- und ROT-Meldungen ausgelöst werden. Ein solches "neutrales Licht" müßte WEISS erscheinen. Am einfachsten wäre es nun, man könnte "neutrales" Licht mit "energiegleichem" Licht — letzteres wäre die Mischung aller Komponenten eines energiegleichen Spektrums — gleichsetzen. "Energiegleiches Licht" sieht jedoch schwach BLÄULICH aus. Bei "quantengleichem Licht" müßte dieser Effekt noch stärker sein. Um trotzdem mit einem Licht rechnen zu können, das physiologisch "neutralem" Licht aller Wahrscheinlichkeit nach sehr nahe kommt, setze ich für die folgende Modellrechnung voraus, "neutrales Licht" entspreche gewöhnlichem Tageslicht. Für dieses wählte ich auf Rat von Herrn Dipl.-Ing. K. KALBERLAH ein Tageslicht von der Farbtemperatur 6000° K (Abb. 3).
B 3. Erscheinungsweisen des gestörten Farbensehens
Als Gruppe weiterer Voraussetzungen geht in die Modellrechnung ein, daß es eine Anzahl diagnostisch unterscheidbarer Farbensinn-Störungen gibt. Für die auszuarbeitende Modellrechnung ist daher zu fordern, daß der Ausfall von Funktionsgliedern der erarbeiteten Datenverarbeitungsstruktur gerade diejenigen Veränderungen der Ausgangswerte nach sich ziehen muß, die den klinisch feststellbaren Abweichungen des Farbensehens entsprechen. Eine vollständige Lösung dieser Teilaufgabe wäre dann erreicht, wenn sich das Ensemble der empirisch bekannten Farbsehstörungen aus den möglichen Ausfällen im Modellsystem der Datenverarbeitung herleiten ließe.
Man gliedert die bekannten Farbfehlsichtigkeiten in Farbenblindheiten (Dichromasien) und Farbanomalien (anomale Trichromasien). Aus den Symptomen beider Kategorien seien für die Modellrechnung ausgewählt (Abb. 10):
-
Neutralstellen im Spektrum. Den Dichromaten und manchen anomalen Trichromaten erscheinen bestimmte reine Spektralfarben nicht farbig, sondern neutral grau.
-
Verkürzungen des sichtbaren Spektrums. Am kurz- oder langwelligen Ende des Spektrums können die für den Normalsichtigen erkennbaren Wellenlängen für den Farbfehlsichtigen unsichtbar sein.
-
Fehlende Sehstoffe. Bei mehreren Farbfehlsichtigen ist das Fehlen eines der Sehstoffe unmittelbar nachgewiesen worden.
-
"Gesteigerter Farbkontrast" [5]. Bei den Farbanomalen (und auch bei manchen Dichromaten ?) beobachtet man eine gegenüber dem Normalsichtigen gesteigerte Abhängigkeit der Farberkennung von der Tönung des Umfelds.
In Abb. 10 sind die von der Ophthalmologie unterschiedenen und gesondert benannten Farbfehlsichtigkeiten zusammen mit den dazugehörigen quantitativen Daten angegeben; diesen Angaben soll die Modellrechnung gerecht werden.
C. Bisherige Kenntnisse über die Datenverarbeitung aus der Physiologie des Farbensehens von Vertebraten
Bereits HERING sah in den sich zu WEISS auslöschenden Gegenfarben den Hinweis auf antagonistische physiologische Prozesse; als Vorstellungsbild verwendete er dafür — der Denkweise seiner Zeit gemäß — die "Assimilation" und "Dissimilation" von Substanzen. Formal entsprechende elektrophysiologische Prozesse wurden zuerst von SVAETICHIN [6] in der Retina von Fischen gefunden und später von ihm und NAKA und RUSHTON [23] untersucht: wellenlängenabhängige S-Potentiale. Für sie ist kennzeichnend: Licht eines Wellenlängenbereichs führt zur elektrischen Depolarisation, Licht eines anderen zur Hyperpolarisation der Zellmembran der betreffenden neuralen Elemente.
Formal ist damit eine Subtraktion aufgezeigt: Den Eingangswerten sind funktionell die Vorzeichen + oder - zugeordnet. Gleichstarke Aktivierung beider Prozesse hat das Ergebnis "null". Gleichzeitige unterschiedliche Aktivierung beider Prozesse hat ein Ergebnis, das der Differenz ihrer Funktionswerte entspricht. Für die folgende Modellrechnung ist damit vorgezeichnet, daß als datenverarbeitende Prozesse zunächst probeweise Subtraktionen einzusetzen sind.
| Graustellen | Verkürzung d. Spektrums | fehlender Sehstoff | |
|---|---|---|---|
| Protanopie | 490 nm | langw. | P 570 (gelb) |
| Deuteranopie | 500 nm | — | P 535 (grün) |
| Tritanopie | 575 nm | kurzw. | P 445 (blau) |
| Tetartanopie | 465,575 nm | — | ? |
| Protanomalie | 500 nm ? | langw. | P 570 (gelb) |
| Deuteranomalie | 495 nm ? | — | P 535 (grün) |
| Tritanomalie | — | kurzw. | P 445 ? (blau) |
Zusammenstellung von empirischen Daten aus dem Bereich der Farbfehlsichtigkeiten. Zahlenangaben auf 5 nm genau angegeben bzw. entsprechend abgerundet. Aus [5] und [8]
Die Subtraktion bietet sich auch aus anderen Gründen an: Aus jeweils zwei Eingangskurven, die sich gegenseitig überlappen (s. Abb. 3) entstehen durch Subtraktion Kurvenbereiche, die ohne Überlappung direkt aneinander anschließen (s. z. B. Abb. 11: Die Kurve "GRÜN/ROT" entsteht durch Subtraktion aus den Kurven für grün und gelb der Abb. 3); dies letztere entspricht den Verhältnissen bei der Farbenwahrnehmung, da dort die Farbenbereiche innerhalb der voneinander unabhängigen Systeme BLAU/GELB bzw. GRÜN/ROT ohne Überlappung aneinander anstoßen (Abb. 7). — Ein Farbenantagonismus ist auch durch elektrophysiologische Untersuchungen z.B. im Geniculatum von Primaten nachgewiesen worden (DE VALOIS [7]) etc.
D. Qualitativ-logische Untersuchung des Abbildungsproblems
D 1. GELB aus Grün- und Gelb-("Rot"-)Meldungen ?
Vergleicht man Abb. 2 als Repräsentant der Eingangswerte mit Abb. 6 als Repräsentant der Ausgangswerte, so fällt folgendes auf: Die Anzahl der Eingangskanäle in die Datenverarbeitung ist drei (blau, grün, gelb), die der Ausgangsgrößen aber vier (BLAU, GRÜN, GELB, ROT: s. Abschnitt B 2b und B 2c). Die strukturell einfachste Transformation der Eingangswerte in die Ausgangswerte bestünde demnach darin, daß drei der Ausgangswerte ihre Meldungen ausschließlich von je einem der drei Eingangselemente erhielten, daß der vierte Ausgangswert aber aus der Summe der Meldungen von zweien der Eingangselemente entstünde.
Dieses einfachste Schema läßt sich kombinatorisch auf dreierlei Weisen verwirklichen. Bisher ist von diesen drei Möglichkeiten jedoch, soweit ich sehe, nur eine einzige in Betracht gezogen worden, zuletzt durch WALD und BROWN [8] und durch MEESSEN [9]: Je einzeln wären danach die drei Zapfenarten der Abb. 2 für die drei Farbenempfindungen BLAU, GRÜN und ROT verantwortlich ; die vierte Farbenempfindung GELB ergäbe sich durch gemeinsame Wirkung der für die GRÜN- und die ROT-Empfindung verantwortlichen Zapfen (Abb. 11, Einschaltfigur).
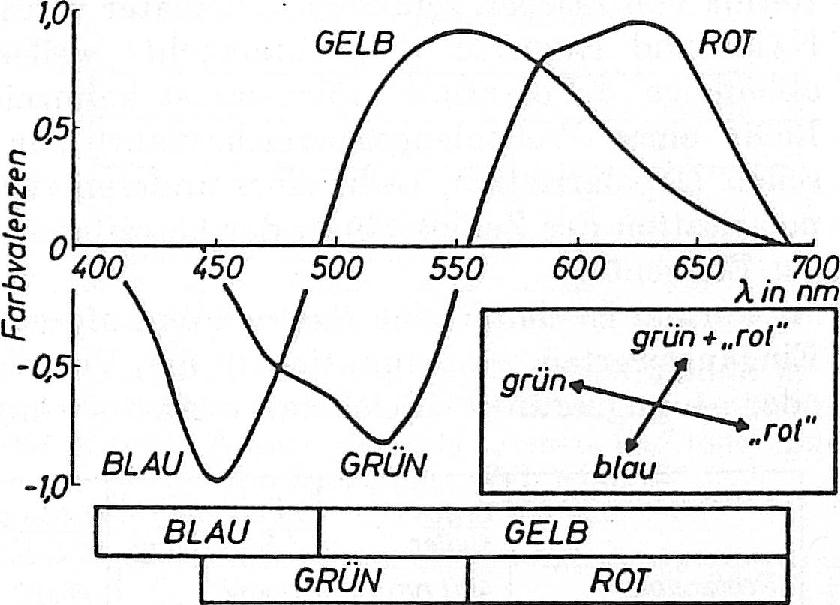 Abb. 11.
Einschaltfigur: Schema zur Vorstellung, der Farbenantagonismus der Abb. 6 komme zustande 1. durch Subtraktion der Meldungen des Grün-Receptors von denen des Rot-Receptors (in dieser Arbeit sonst Gelb-Receptor genannt, s. Abschnitt B 1, letzter Absatz), und 2. durch Subtraktion der Meldungen des Blau-Receptors von der Summe der Meldungen des Grün- und des Rot-Receptors. — Kurvenbild: Ergebnis der Subtraktion der Modellkurven der Abb. 3 nach diesem Schema. Dabei wurden folgende Gewichtsfaktoren eingesetzt: 2 für grün; 2 für "rot"; 1 für blau; 0,5 für grün + "rot". Bei anderen Gewichtsfaktoren würden sich die Nullstellen der resultierenden Kurven verschiehen; doch würde sich nichts Prinzipielles an der Farbverteilung ändern. — Unten: Die Farbenverteilung — gezeichnet nach Art der Abb. 7 —, die sich aus der Verrechnung entsprechend den darüberstehenden Farbvalenzkurven ergeben würde. Am kurzwelligen Ende ergibt sich im Unterschied zu Abb. 7 kein ROT
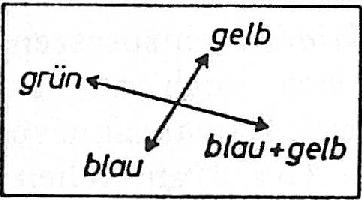 Abb. 12.
Schema für das Zustandekommen des Farbenantagonismus Abb. 6 durch das Zusammenwirken der Farbreceptoren nach dem Prinzip: ROT aus Gelb- und Blau-Meldungen
Subtrahiert man die damit als antagonistisch angenommenen Meldungen — genauer: die Absorptionskurven — voneinander, so erhält man die auf Abb. 11 angegebenen Kurvenzüge. An ihnen erkennt man folgendes: Innerhalb des Verlaufs des Spektrums ergeben sich im Unterschied zur Darstellung Abb. 7 nur zwei Positionen von reinen Farben, eine für GELB und eine für GRÜN; die dritte reine Farbe, das BLAU, erscheint — im Unterschied zu Abb. 6 — am kurzwelligen Ende des Spektrums. Diese Farbe wäre somit nicht — wie in Abschnitt B 2c. beschrieben — an beiden Seiten von spektralen Mischfarben eingegrenzt. Das liegt daran, daß am kurzwelligen Ende gar keine ROT-Meldungen auftreten. Dies alles steht im Widerspruch zu Abb. 7. Das Verrechnungsschema der Abb. 13 steht also mit bestimmten Voraussetzungen für die hier vorzulegende Modellrechnung nicht im Einklang.
D 2. ROT aus Gelb- und Blau-Meldungen
In der soeben beschriebenen Hypothese war das GELB diejenige Farbempfindung, die aus den Meldungen zweier Zapfenarten herührte. Mehr als das GELB bietet sich jedoch das ROT für diese Rolle an: Es tritt an zwei voneinander getrennten Stellen des Spektrums auf, am lang- und am kurzwelligen Ende. Nach dem eingangs genannten Prinzip, daß gleiche Empfindungen als Indiz für gleiche physiologische Gegebenheiten gelten sollen, bedeutet das: Die Ausgangsgröße "ROT" muß — im Rahmen dieser Modellüberlegungen — von Meldungen aktiviert werden, die sowohl von der Absorption langwelligen als auch von der Absorption kurzwelligen Lichtes ausgehen. Nun reicht aber der Absorptionsbereich keines der drei Sehstoffe bis zu beiden Enden des sichtbaren Spektrums (Abb. 2). Das ergibt sich empirisch auch daraus, daß das Fehlen sowohl des Gelb- wie des Blau-Sehstoffes zur Verkürzung des sichtbaren Spektrums jewels an einem der beiden Enden führt (s. Abb. 10); diesen Verlust kann also keiner der jeweils übrigbleibenden Sehstoffe bzw. Rezeptoren ausgleichen. Der Absorptionsbereich eines Sehstoffes reicht jedenfalls nicht aus, um sowohl die kurzwelligen als auch die langwelligen ROT-Meldungen hervorzurufen. Hieraus folgt, daß Meldungen der beiden "außenliegenden" Sehstoffe, also des Blau- und des Gelb-Receptors, zur Ausgangsgröße "ROT" beitragen müssen.
Solange man sich an den einfachsten Verrechnungsmodus hält (zwei Zapfenarten antagonistisch zueinander, die dritte gegen die Summe der beiden anderen), muß somit diejenige der vier Ausgangsgrößen, die von zweien der drei Eingangskanäle Meldungen erhält, das ROT sein; die beiden hierfür zusammenwirkenden Eingangsinstanzen wären dann zwangsläufig der Blau- und der Gelb-Receptor. Dies ist in Abb. 12 dargestellt.
Die dritte der möglichen Kombinationen wäre: Blau antagonistisch zu grün; gelb antagonistisch zu blau + grün. Sie führt zu ähnlichen Widersprüchen mit den Voraussetzungen wie die in Abschnitt D 1 besprochene Vorstellung.
Hiernach steht also nur folgende Art und Weise der Datenverarbeitung mit den bisher in Betracht gezogenen Voraussetzungen des Abschnitts B nicht im Widerspruch: Die Antagonisten wären 1. Blau- und Gelb-Receptor; 2. Grün-Receptor und — gemeinsam — Blau- und Gelb-Receptor (Abb. 12).
Weitere Alternativen zu dem damit skizzierten einfachsten denkbaren Verrechnungssystem wären nunmehr nur noch solche Verrechnungsweisen, die strukturell weniger einfach sind. Hierher gehört u.a. die Modellvorstellung von HURVICH und JAMESON [16]: Drei Receptorarten α, β, γ werden dort nach folgendem Schema als Antagonisten betrachtet: α gegen β + γ (BLAU/GELB-System) und β gegen α + γ (GRÜN/ROT-System); hier gelten also nicht nur eine, sondern zwei Ausgangsfarben (GELB und ROT) als zusammengesetzt. Die Absorptionskurven weichen in dieser Modellvorstellung allerdings insofern weit von den experimentell gefundenen ab, als sie sehr eng benachbarte Maxima (α 555 nm, β 553 nm, γ 558 nm) besitzen. Ihre Form wird als etwas verschieden angenommen1.
E. Quantitative Ausführung der Modellüberlegung für den normalen Farbensinn
E 1. Übersicht über die quantitativen Voraussetzungen
-
Eingangsseite. Über die quantitativen Beziehungen zwischen der auf die Netzhaut fallenden Lichtenergie und den absoluten Größen der Eingangswerte der physiologischen Datenverarbeitung ist nichts bekannt und kann daher nichts vorausgesetzt werden. Aus diesem Grunde waren auf Abb. 2 und 3 die Eingangskurven für die Verrechnung in ihren Maxima willkürlich auf die gleiche Höhe normiert worden. Die entscheidenden quantitativen Voraussetzungen der Eingangsseite liegen in den relativen Absorptionswerten, damit also in den Kurvenformen der Abb. 3 sowie in der Lage der drei Kurven relativ zur Wellenlängenskala.
-
Hinsichtlich der Ausgangsseite der Datenverarbeitung, also der Farbenempfindungen, sind die quantitativen Voraussetzungen folgende: 1. Die Positionen der drei "reinen Farben" (s. Abb. 7), also diejenigen Wellenlängen, bei denen eines der beiden Gegenfarbensysteme gerade im Gleichgewicht ist; 2. die gegenseitigen Zuordnungen der Gegenfarben (Abb. 5); 3. die Farbtonunterscheidungsfunktion (Abb. 8); 4. die Voraussetzung, daß "normales Tageslicht" WEISS aussieht (B 2f), daß also beide Gegenfarbensysteme (BLAU/GELB und GRÜN/ROT) bei dieser Spektralverteilung (Abb. 3) im Gleichgewicht sind.
E 2. Durchführung der Modellrechnung für den normalen Farbensinn
Nach Abschnitt C und D 2 ergeben sich die Ausgangswerte der Datenverarbeitung durch Subtraktion der jeweils negativ bewerteten Meldungen von den positiv bewerteten. Dies gilt für jeden Punkt der Wellenlängen- bzw. Frequenzskala. Man stelle sich vor, eine Versuchsperson betrachte ein Spektrum; man kann dann die Absorptionskurven als ganze miteinander verrechnen. Dabei ist jedoch zunächst offen, mit welchen relativen Gewichten die Absorptionskurven in die Verrechnung eingehen (sie waren auf Abb. 2 und 3 willkürlich auf gleiche Maximalamplitude normiert worden). Falls die Modellvorstellung auch quantitativ in sich widerspruchslos wäre, so müßte es Gewichtsfaktoren für die Absorptionskurven geben, auf Grund derer zweierlei zugleich erfüllt wäre: 1. Es müßten sich die Nulldurchgänge der Abb. 7 ergeben; 2. nach der Multiplikation der Ergebniskurven mit der Lichtquantenverteilung des mittleren Tageslichts (Abb. 3) müßten die Integrale über die resultierenden BLAU- und die GELB-Meldungen einander gleichen und ebenso die Integrale über die GRÜN-Kurve und die beiden Abschnitte der ROT-Kurve; denn nach der Voraussetzung 4 des Abschnitts E 1b sollten bei dieser Beleuchtung beide Gegenfarbensysteme im Gleichgewicht sein.
In der Tat lassen sich die beiden, voneinander unabhängigen Forderungen mit Hilfe folgender Gewichtsfaktoren erfüllen: αbB=1 für blau und αyY=0,6 für gelb im BLAU/GELB-System; αgG=1,7 für grün sowie αbR=0,6 für blau und αyR=1,2 für gelb im GRÜN/ROT-System. (Die Integrationen wurden graphisch durchgeführt; die angestrebte Genauigkeit für die Übereinstimmung zwischen den Integralen der zueinandergehörigen positiven und negativen Kurvenabschnitte war ± 10 %).
Die Verrechnungsfunktionen der Datenverarbeitung in der Modellüberlegung lauten demnach:
(Abkürzungen:
Pos [...] ≙ Positive Werte von ...;
Neg [...] ≙ Negative Werte von ...).
| Neg [ - blau + 0,6 · gelb ] → BLAU, | (1) |
| Pos [ - blau + 0,6 · gelb ] → GELB, | (2) |
| Neg [ - 1,7 · grün + (0,6 · blau + 1,2 · gelb) ] → GRÜN, | (3) |
| Pos [ - 1,7 · grün + (0,6 · blau + 1,2 · gelb) ] → ROT. | (4) |
Diese Verrechnungen führen vom Kurvenbild Abb. 3 zum Kurvenbild Abb. 13.
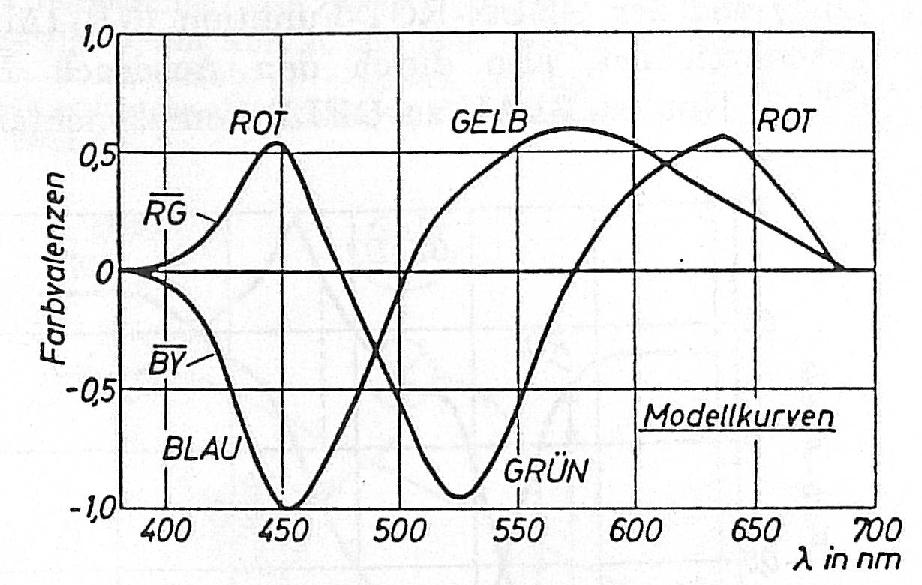 Abb. 13.
Farbvalenzen, entstanden durch Verrechnung der korrigierten Absorptionskurven Abb. 3 nach den Funktionen (1)—(4). Die Kurven entsprechen — im Rahmen der Modellrechnung — den wellenlängen-abhängigen Intensitäten der Farbenwahrnehmungen beim Betrachten eines quantengleichen Spektrums. Um die Farbenverteilung bei der Betrachtung eines Spektrums mit der Energieverteilung neutralen Tageslichts zu erhalten, müssen diese Kurven mit der Tageslichtkurve der Abb. 3 multipliziert werden. — Die Bezeichnung BY bedeutet "Blau-Gelb-Funktion" (Y nach "yellow", um Verwechslung mit G für Grün zu vermeiden); RG "Rot-Grün-Funktion". Genaue Durchtrittspunkte durch die Null-Linie: 474, 502 und 575 nm
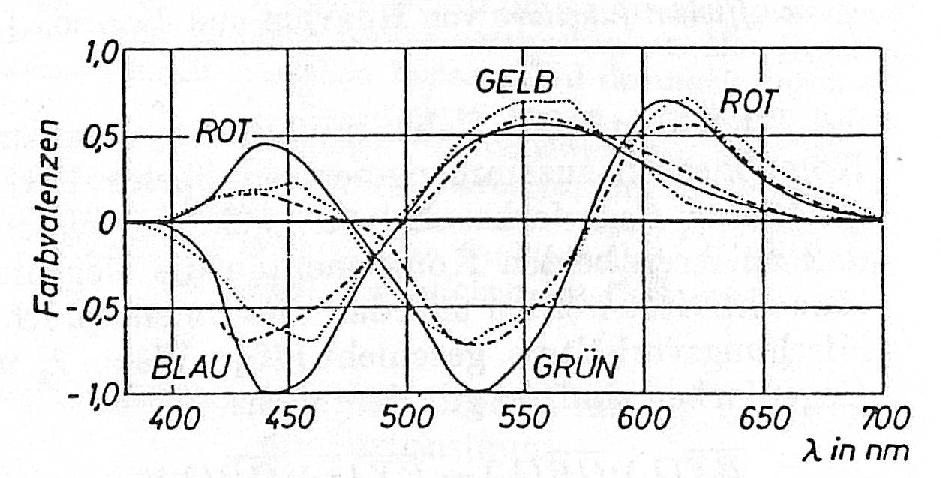 Abb. 14.
Drei Kurvenpaare für die Farbverteilung im sichtbaren Spektrum: Kurvenpaar 1 (punktiert) nach BRÜCKNER (1927) aus [5], S. 123, Abb. 54. — Kurvenpaar 2 (strichpunktiert) nach HURVICH und JAMESON [16]. — Kurvenpaar 3 (durchgezogen) nach JUDD aus [19], S. 308, Abb. 2. — Genaue Nullwerte: 472, 495, 580 nm (Kurve 1); 472, 500, 576 nm (Kurve 2); 476, 500, 576 nm (Kurve 3)
Abb. 14 zeigt drei aus der Literatur entnommene Vergleichskurven zu Abb. 13. Sie zeigen die "Hering-Komponenten" oder die "Farbvalenzen" des Farbensehens. Kurven 1 und 2 stammen aus unmittelbaren Messungen; Kurve 3 ist aus farbmetrischen Untersuchungen hergeleitet und daher nur mittelbar mit den ersten, direkt gemessenen Kurven vergleichbar [16].
In den folgenden Erörterungen geht es um die Feststellung, ob auch die nicht in die Konstruktion der Abb. 13 eingegangenen Voraussetzungen, die im Abschnitt B zusammengestellt wurden, mit dem in den Funktionen (1)—(4) formulierten Verrechnungsmodus im Einklang stehen. Die dabei vorzunehmenden Umrechnungen entsprechen denjenigen, mit deren Hilfe HURVICH und JAMESON [16] die Beziehungen zwischen den Funktionen der Farbvalenzen (relative visual responses), der Farbenanteile (hue coefficient functions), der Farbtonunterscheidung und der gegenseitigen Zuordnung der komplementären Wellenlängen dargestellt haben.
E 3. Zuordnung der kompensativen Farben
Im Rahmen dieser Modellüberlegung ist der Farbton einer Spektralfarbe λ durch das Verhältnis zwischen den zugehörigen Werten der BLAU-GELB-Funktion (BY) und der GRÜN-ROT-Funktion (GR) (Abb. 13) gekennzeichnet, also durch den Ausdruck BY(λ) / GR(λ). Nun ist BLAU zu GELB komplementär, und
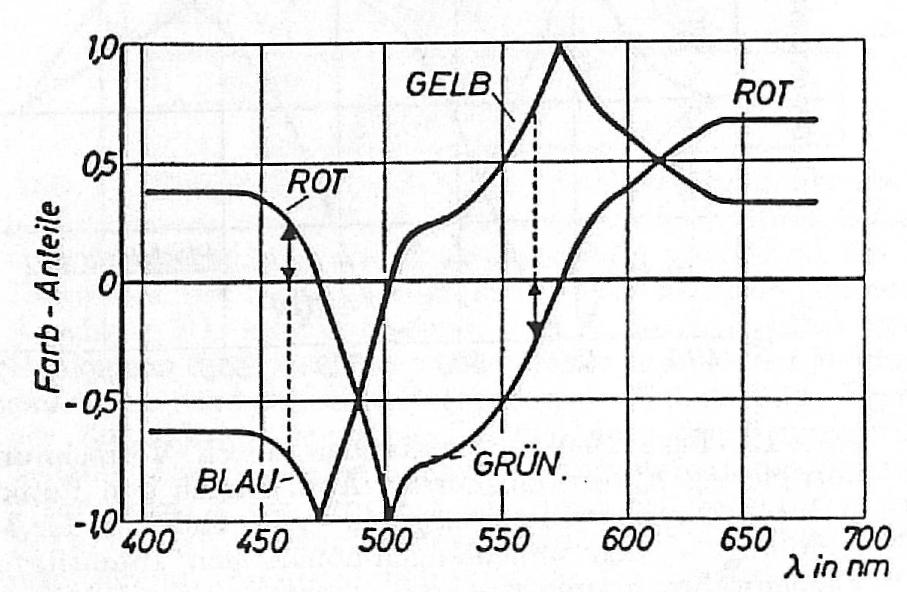 Abb. 15.
Farbanteilfunktion, entstanden aus dem Kurvenpaar der Abb. 13 durch Normierung (Dividieren durch die Summe der absoluten Beträge der Ordinatenwerte beider Kurven der Abb. 13). Die Wellenlänge λ1 = 460 nm und deren kompensative Wellenlänge (Gegenfarbe) λ2 = 562 nm sind durch Pfeile im Kurvenbild angedeutet; sie zeichnen sich durch gleiche prozentuale Anteile beider Farbensysteme bei entgegengesetzten Vorzeichen aus. — Gestaltung der Abbildung R. ENGELHARDT in Anlehnung an die Darstellung der hue coefficient functions von HURVICH und JAMESON [16]
dgl. GRÜN zu ROT. Daher muß die zu einem aus zwei Komponenten zusammengesetzten Spektralfarbton λ gehörende Gegenfarbe dadurch gekennzeichnet sein, daß zu ihren beiden Komponenten die Gegenfarbentöne aktiviert werden und daß dies im entsprechenden Mischungsverhältnis geschieht [16]: Wenn λ1 und λ2 Gegenfarben sind, so gilt denmach:
| BY(λ1):GR(λ1) = BY(λ2):GR(λ2) | (5) |
Um die zueinandergehörigen Gegenfarben unmittelbar aus einem Kurvenbild ablesen zu können, seien die Farbvalenzkurven (Abb. 13) in "Farbanteilfunktionen" [16] umgerechnet. Diese Funktionen sind auf Abb. 15 dargestellt. Sie entstehen durch Division eines jeden Kurvenpunktes der Abb. 13 durch die Summe der absoluten Beträge der Ordinatenwerte der beiden Kurven. Nunmehr kann man für jedes λ1 dasjenige λ=λ2 ablesen, für welches beide Kurven bei umgekehrten Vorzeichen die entsprechenden Ordinatenwerte haben [16].
Hierdurch ergibt sich die Zuordnung von Gegenfarben im Rahmen der Modellüberlegung. Das Ergebnis ist auf Abb. 5 im Vergleich zur empirischen Kurve aufgetragen. Die Übereinstimmung zwischen beiden Kurven ist überraschend gut.
E 4. Farbtonunterscheidungsfunktion
Wenn der einer Wellenlänge λ zugeordnete Farbton durch das Verhältnis zwischen den zugehörigen Werten der Farbvalenzkurve gekennzeichnet wird (s. E 3), dann gibt die Steigung der Farbenanteilfunktion (Abb. 15) bei jeder Wellenlänge einen Hinweis darauf, wie schnell sich der Farbton in Abszissenrichtung ändert [16]. Je schneller sich der Farbton mit dem Wellenlängenunterschied ändert, desto geringer muß die Farbtonunterschiedsschwelle und desto besser die Unterscheidungsgüte zwischen benachbarten Wellenlängen sein. Daher liegt es nahe, den Differentialquotienten der Kurven der Abb. 15 (ohne Berücksichtigung der Vorzeichen der Steigungen) als Maß für die Unterschiedsempfindlichkeit zu betrachten.
Exakt würde dies jedoch nur unter folgenden Voraussetzungen gelten: 1. Wenn man die Farbtonunterschiede zwischen den benachbarten Farben BLAU und GRÜN, GRÜN und GELB, GELB und ROT sowie ROT und BLAU quantitativ einander gleichsetzen könnte (dies ist in Abb. 15 implicite der Fall), und 2. wenn die Zumischung von "physiologischem WEISS", die im Verlauf des Spektrums sicherlich wechselt (verschiedene "Sättigung" der Spektralfarben), vernachlässigt werden dürfte [16]. — Da diese beiden Voraussetzungen hier nicht berücksichtigt wurden, gibt die Kurve des absoluten Wertes des Differentialquotienten der Kurven Abb. 15 nur einen Hinweis auf die ungefähre Kurvenform der "Farbtonunterscheidungsfunktion" im Rahmen der Modellvorstellung. Trotzdem ist diese Kurve auf Abb. 8 zum Vergleich mit der gemessenen Kurve eingezeichnet. Die Übereinstimmung zwischen den Formen beider Kurven ist befriedigend.
E 5. Schaltbild
Ein Überblick über die in Abschnitt E2 bis E4 gewonnenen Ergebnisse (s. vor allem Abb. 5, 7, 8, 13, 14) zeigt, daß die in Abb. 12 und durch die Formeln (1)—(4) wiedergegebene modellmäßige Verrechnungsweise eine befriedigende Übereinstimmung mit den Voraussetzungen des Abschnitts B2 liefert. Es lohnt sich daher, sie in Form eines Schaltbildes darzustellen. Dies ist in Abb. 16 gesehehen. Das Schema stellt gleichsam eine Lösung der Aufgabe dar, die durch Abb. 4 symbolisiert wurde. Als repräsentativ für den Eingang in die Datenverarbeitung sind oben die Modellkurven der Abb. 3 in abgeflachter Form eingezeichnet. Als repräsentativ für den Ausgang des Systems hätte man die Darstellung der Abb. 7 verwenden können. Ich habe jedoch eine Darstellung vorgezogen, die das ROT graphisch als einen einheitlichen Ausgangswert erkennen läßt — entsprechend der Voraussetzung (Abschnitt A), daß gleiche Empfindungen als Indiz für gleiche physiologische Informationswerte gelten sollen. Hierdurch ergibt sich als Darstellung der subjektiven Farbenwelt der (Farben-)Kreis (s. Abschnitt G2).
Abb. 16 enthält neben den besprochenen Zusammenhängen noch eine modellmäßige Darstellung für die Zuordnung zwischen den Meldungen der Farbreceptoren und der Empfindung WEISS. Hierüber wird im Abschnitt G3 Näheres gesagt werden.
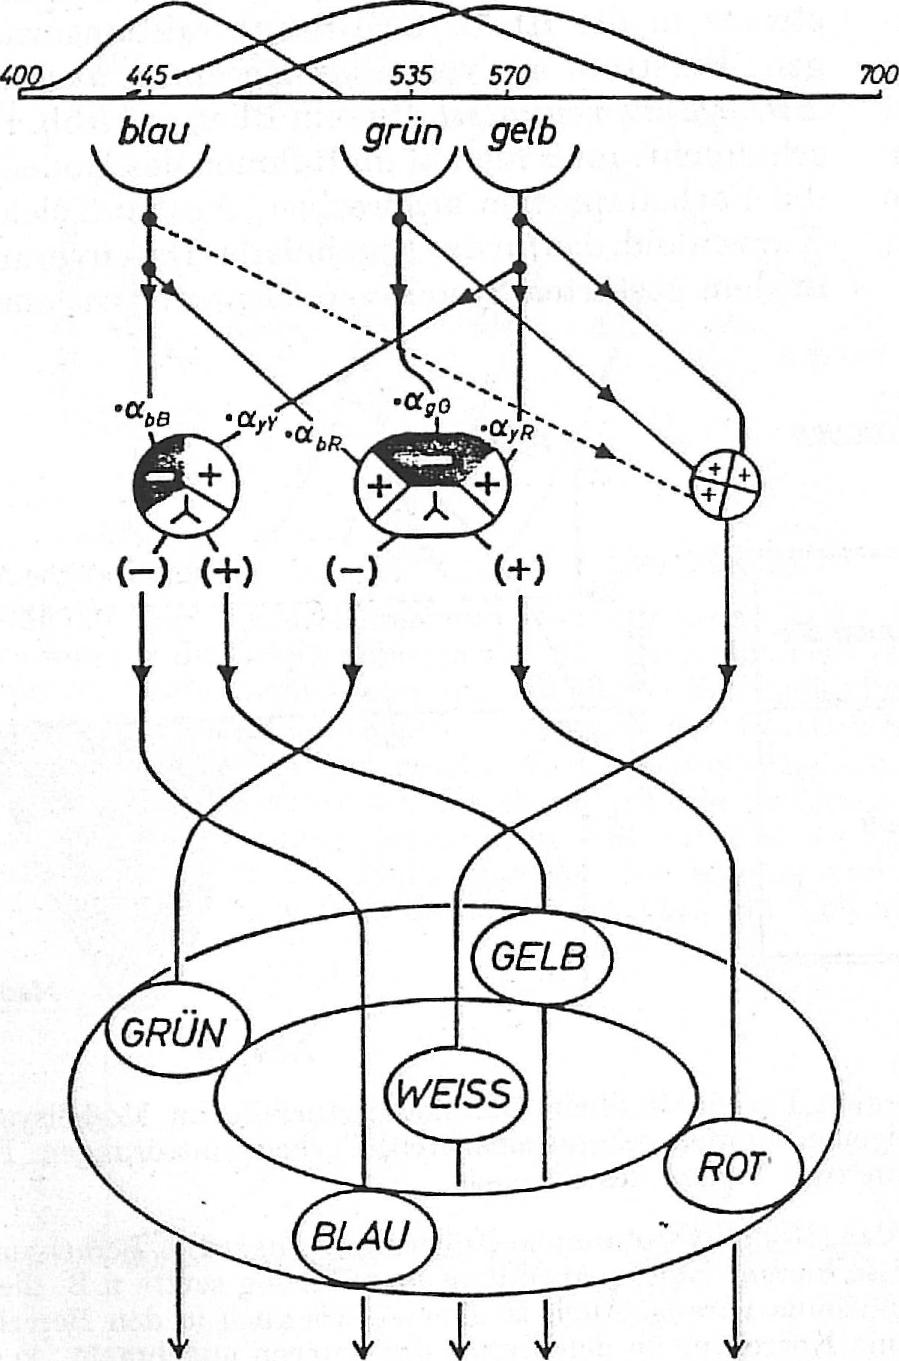 Abb. 16.
Informationsflußdiagramm, das die durch die Formeln (1)—(4) wiedergegebene Verrechnung
graphisch darstellt. Die Eingangselemente blau, grün, gelb stellen modellmäßig die Receptoren dar.
Die Faktoren α geben an, mit welchem relativen Gewicht die Meldungen der Receptoren in die
Verrechnungsinstanzen eingehen, sofern man mit gleichartig normierten Empfindlichkeiten der Eingangselemente
rechnet (entsprechend der Darstellung der Abb. 3). Die Verrechnungsinstanzen summieren bzw. subtrahieren die
Eingangsmeldungen entsprechend den in den betreffenden Sektoren angegebenen Vorzeichen.
Das Zeichen  deutet an,
daß positive und negative Verrechnungsergebnisse auf verschiedenen Kanälen weitergegeben werden.
Es laufen also stets nur auf einem der beiden Kanäle Meldungen weiter, je nach dem Verrechnungsergebnis
entweder nur auf dem "+"- oder nur auf dem "–"-Kanal. Die Empfangsinstanzen (unten) sollen
die unmittelbare physiologische Basis für die verschiedenen Farbenwahrnehmungen darstellen.
— Zum Problem des WEISS s. Abschnitt G3. Die auch hier vorzusehenden Gewichtsfaktoren
αbW, αgW und αyW wurden der Übersichtlichkeit
wegen weggelassen
E 6. Einbeziehung der Farbadaptation
Es gibt keine gleichzeitige Empfindung von BLAU und GELB am gleichen Ort des Gesichtsfelds; nach längerdauernder Adaptation an BLAU erscheint aber nach Ersatz des BLAU durch neutrale Beleuchtung an dem betreffenden Ort des Gesichtsfelds ein GELB. Während der vorangehenden Adaptation blaßte das BLAU allmählich ab. Im Laufe eines Tages, während dessen eine Versuchsperson ununterbrochen eine blaue Brille trägt, geschieht dies fast völlig [10].
Das Abblassen einer langdauernd gebotenen Farbe und das Nachbild in der kompensativen Farbe lassen sich nach v. HOLST [13] auf das gleiche Prinzip zurückführen, wenn man eine Schaltung wie die von Abb. 17 zugrunde legt: Die Farbmeldungen werden nach der Subtraktion gesondert in je eine sehr träge integrierende Instanz mit entsprechend langsamer Abklingcharakteristik geleitet; deren jeweiliger Funktionszustand wird durch Signale in den Kanal der Gegenfarbe eingespeist. (Für die Modellvorstellung war vorausgesetzt worden, daß im successiven Farbkontrast die jeweilige kompensative Farbe erscheint, s. Abschnitt B 2f). Dies bedeutet: Zusatz der Gegenfarbe, folglich auch Subtraktion von dem eigenen Farbwert. Es handelt sich hierbei also um eine feed-back-Schaltung; deren Stabilität wird hier ohne nähere Begründung als gegeben vorausgesetzt.
In die Modellschaltung von Abb. 16 könnte man die von Abb. 17 hineinzeichnen. Dies sei jedoch unterlassen, weil dadurch ein zu unübersichtliches Bild entstehen würde. Doch sei festgehalten, daß die vollständige Modellvorstellung die Prinzipien von Abb. 16 mit dem Prinzip der Farbadaptation — z. B. nach Abb. 17 — in sich vereinigt. — Für die folgende Diskussion des abweichenden Farbensinns sind beide Prinzipien notwendig.
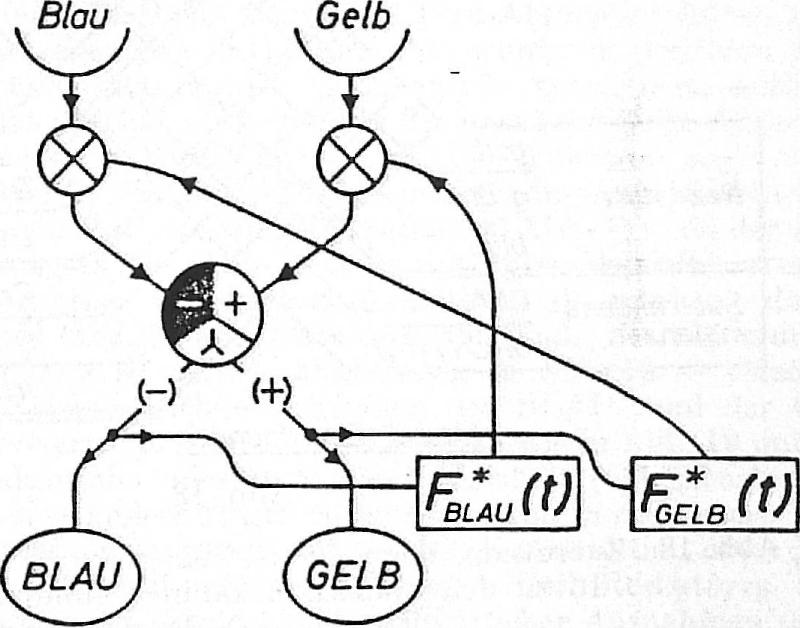 Abb. 17.
Denkbare Schaltung für die Farbadaptation. Die rechteckig gezeichneten Instanzen F*(t) stellen Speicher dar, welche durch einfließende Meldungen aufgefüllt werden, deren Funktionswert aber bei fehlendem Einstrom allmählich wieder zu null abnimmt. Der jeweilige Funktionswert hängt somit zugleich von den jeweiligen und von den voraufgegangenen Meldungen ab — von diesen jedoch um so weniger, je längere Zeit seit ihrem Empfang bereits verstrichen ist. Der jeweilige Funktionswert einer solchen Instanz wird demnach durch ein Faltungsintegral F*(t) beschrieben. — In der abgebildeten Schaltung wird der jeweilige Funktionswert des Speichers in die Bahn des antagonistischen Farbreceptors eingespeist. — Die Zeichnung stellt dasjenige Funktionssystem graphisch dar, das v. HOLST zur Lösung der funktionellen Aufgabe der Farbkonstanz entwickelt hat [13]
F. Konsequenzen aus dem Model für die Störungen des Farbensinnes
Die Modellvorstellung für die Datenverarbeitung beim Farbensehen (Abb. 16) enthält — abgesehen von den übertragenden Leitungen und der Summationsinstanz — fünf Instanzen, in denen Transformationen von farbenbezogenen Meldungen vor sich gehen: Die drei Arten von Receptoren, in denen die physikalischen Einflüsse in Eingangswerte des datenverarbeitenden Systems transformiert werden; und die beiden Subtraktionsinstanzen, in denen die maßgeblichen Wechselwirkungen zwischen den Receptorenmeldungen stattfinden. Die nächstliegende Art und Weise von Störungen in diesem Modellsystem bestände darin, daß eine oder mehrere von diesen fünf Instanzen eliminiert würden.
Am Flußdiagramm in Abb. 16 führen acht verschiedene Ausfälle zu einer Reduktion, aber noch nicht zum völligen Verlust der Wellenlängenunterscheidung durch das Gesamtsystem: 1. Der Ausfall von einer der drei Arten von Receptoren (drei Möglichkeiten); 2. der Ausfall von einer der beiden Subtraktionsinstanzen (zwei Möglichkeiten); 3. der Ausfall von einer der drei Receptorenarten und einer der Subtraktionsinstanzen (drei der sechs kombinatorischen Möglichkeiten). Alle anderen Ausfälle, z. B. der Ausfall zweier Receptorenarten, führen zum Verlust jeder Wellenlängenunterscheidung durch die Datenverarbeitungsstruktur Abb. 16. (Hierbei sind nur die Zapfen in Betracht gezogen; daß es beim Übergang von Zapfen- zum Stäbchensehen auch beim Zapfenmonochromaten zu einem gewissen Farbenempfinden kommen kann, hat BLACKWELL [4] mitgeteilt.)
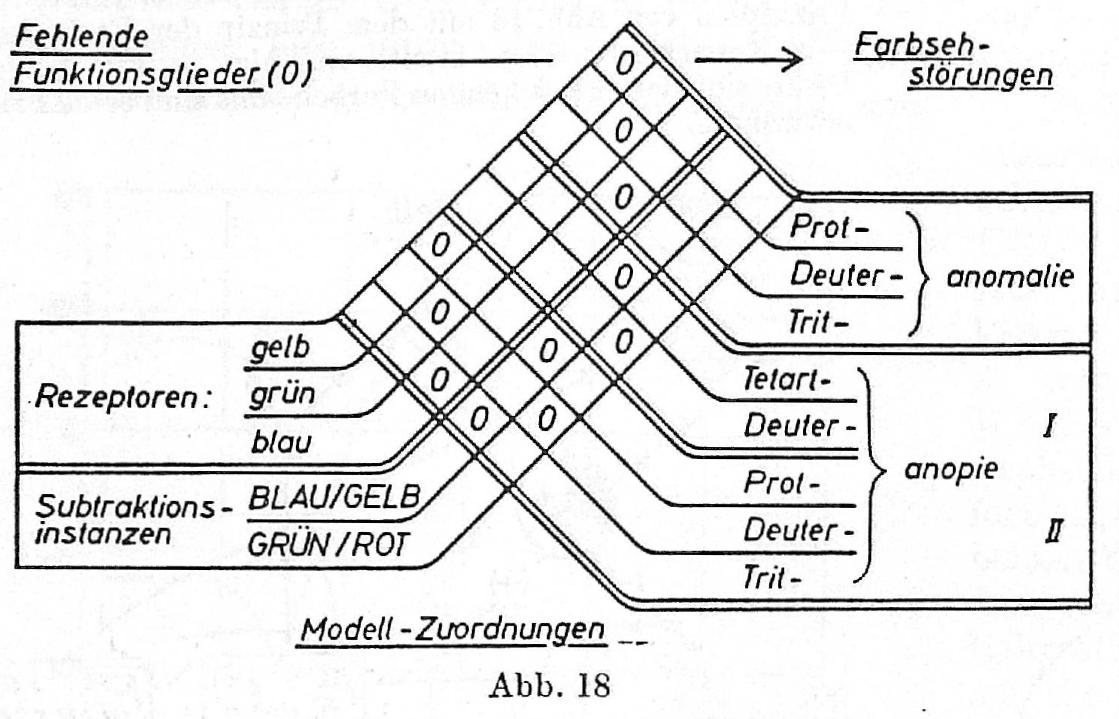 Abb. 18.
Zuordnung der acht denkbaren (noch nicht zur totalen Farbenblindheit führenden) Ausfälle im Modellsystem der Abb. 16 zu den klinisch bekannten (und mit einem eigenen Namen gekennzeichneten) Farbensinnstörungen. Die Deuteranopie erscheint an zwei Stellen des Schemas
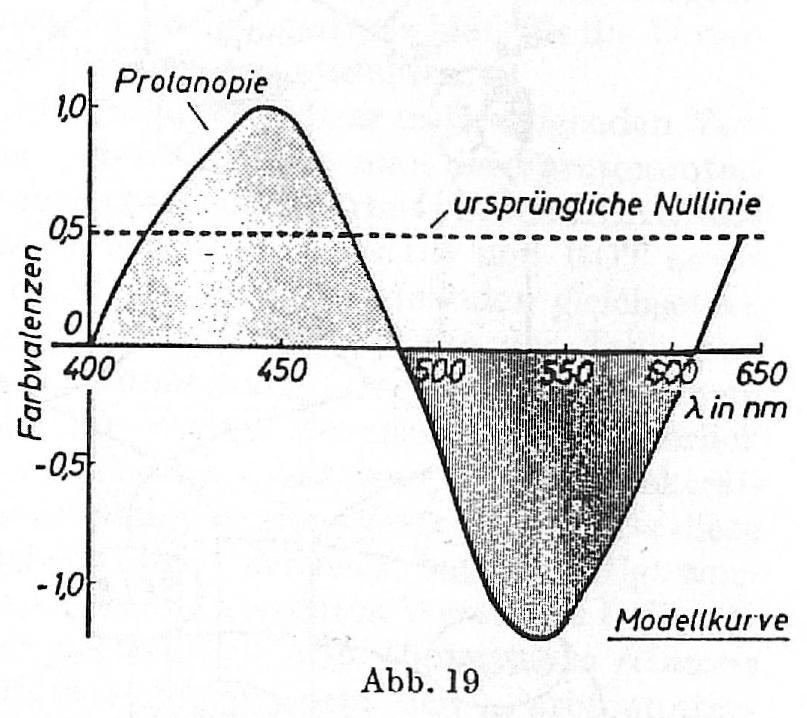 Abb. 19.
Graphische Konstruktion der Farbvalenzkurve bei der (Modell-)Protanopie. Näheres siehe Text. Die Berechnung kann nur eine allererste Annäherung an die tatsächlichen Verhältnisse bieten. Eine quantitative Annäherung setzte z.B. die Kenntnis der inneren Verstärkung im Farbadaptations-Regelmechanismus voraus. Auch ist hier — wie auch in den Berechnungen der anderen Valenzkurven in Abb. 20, 22, 23 und 24 — keine Korrektur an den Enden der Kurven angebracht, so daß sich formal Verkürzungen oder Verlängerungen des Sehbereichs ergeben, die nicht den Tatsachen zu entsprechen brauchen. — Nullstelle bei 487 nm
Ermittelt man nun nach den bisher angegebenen Regeln die Konsequenzen der genannten Ausfälle für die Funktion der Modell-Datenverarbeitung, so ergibt sich folgendes: Jede der acht Veränderungen der Modellstruktur führt zu einer bestimmten der sieben klinisch bekannten Formen von gestörtem Farbensehen in deren auf Abb. 10 angegebenen Symptomen. Abb. 18 gibt die Zuordnung zwischen den Ausfällen im Modellsystem und den Farbensinnstörungen schematisch wieder.
Für alle Farbenblindheiten (Anopien) wäre es hiernach, wie auch HURVICH und JAMESON [16] im Rahmen ihrer Modellvorstellung annahmen, charakteristisch, daß eine der beiden Subtraktionsinstanzen ausfällt. Den Farbanomalien entspräche nach Abb. 18 jedoch allein der Ausfall von je einem der Sehstoffe.
Bei der Ermittlung der Funktion der durch Elimination von Funktionsgliedern veränderten Modellstruktur spielt das im Abschnitt E6 behandelte Prinzip der Farbadaptation eine besondere Rolle: Nur bei zwei der sieben Strukturänderungen (Deuteranopie und Tetartanopie) ergeben sich von vornherein (d.h. allein durch die auszuführenden Subtraktionen) Kurvenzüge, bei denen die Integrale über die jeweils zusammengehörenden positiven und negativen Kurvenabschnitte einander gleich sind; bei den übrigen fünf Ausfallsformen sind die Integrale der zusammengehörigen Gegenfarbenkurven — zum Teil extrem — verschieden. Dies ergibt sich, auch wenn — wie bei der Betrachtung des normalen Farbensehens im Abschnitt E 1c — neutrale Beleuchtung vorausgesetzt wird. Beispielsweise muß aus dem Fehlen des Gelb-Receptors ein totales Ungleichgewicht des Signaleinstroms in die BLAU/GELB-Subtraktionsinstanz folgen: Einstrom nur vom Blau-Receptor, auch wenn die Beleuchtung neutral ist. Wie ein Blick auf Abb. 17 veranschaulicht, muß hierauf im Rahmen des Modellsystems die Farbadaptation ansprechen; dies muß sich in dem Kurvenbild, das für das Ergebnis der Datenverarbeitung in dem gestörten System repräsentativ ist, auswirken.
Wie die Farbadaptation bei der Ermittlung der Ausgangsgrößen der gestörten Modellsysteme berücksichtigt werden kann, ist auf Abb. 19 für das Beispiel der (Modell-)Protanopie angegeben: Die Protanopie entspricht nach Abb. 18 derjenigen Störung, bei der die BLAU/GELB-Subtraktionsinstanz und der Gelb-Receptor ausgefallen sind. Da damit das BLAU/GELB-Gegenfarbensystem ganz ausfällt, bleibt nur das GRÜN/ROT-System übrig, dieses aber mit nur einem der beiden zum ROT beitragenden Eingänge, dem des Blau-Receptors. Der hieraus primär resultierende Kurvenzug ist in Abb. 19 relativ zur "ursprünglichen Null-Linie" aufgetragen. Er entspricht im kurzwelligen Bereich dem Kurvenzug des GRÜN/ROT-Gegenfarbensystems beim Normalsichtigen (vgl. Abb. 13). Wenn nun — entsprechend der Modellvorstellung Abb. 17 — so viele GRÜN-Meldungen in den Blau-Kanal hineinfließen, bis das GRÜN-ROT-Gleichgewicht wieder hergestellt ist, so entspricht das graphisch bzw. rechnerisch einer Versetzung des gesamten Kurvenzuges in Ordinatenrichtung nach oben bzw. einer entsprechenden Verschiebung der Null-Linie nach unten. Wie sich auf Abb. 19 erkennen läßt, wandert dadurch der Nulldurchgang des Kurvenzuges in Abszissenrichtung, und zwar in diesem Falle um rund 15 nm zu größeren Wellenlängen.
Die Abb. 20—24 zeigen die auf entsprechende Weise gewonnenen Modellkurven für die in Abb. 18 angegebenen Ausfälle. Ein Vergleich mit den auf Abb. 10 zusammengestellten Voraussetzungen für die Merkmale der in Betracht gezogenen Farbsehstörungen läßt überall gute Übereinstimmung deutlich werden:
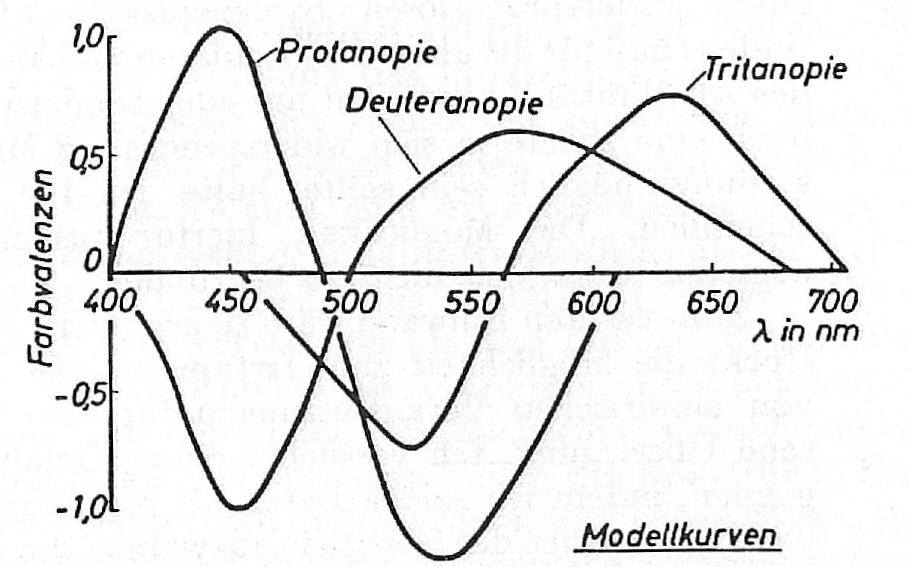 Abb. 20.
Aus der Modellrechnung hervorgehende Farbvalenzkurven für die beiden Formen der Rot-Grün-Blindheit (Protanopie, Deuteranopie) und die Blau-Gelb-Blindheit (Tritanopie). Die Deuteranopiekurve entspricht der BLAU-GELB-Valenzkurve (BY) des normalen Farbensehens (Abb. 13). Die Tritanopiekurve wurde mit derselben Methode gewonnen, wie sie für die Protanopie beschrieben und auf Abb. 19 veranschaulicht wurde. Die Nullstellen der drei Kurven sind 487, 502 und 564 nm; vgl. damit die Angaben auf Abb. 10
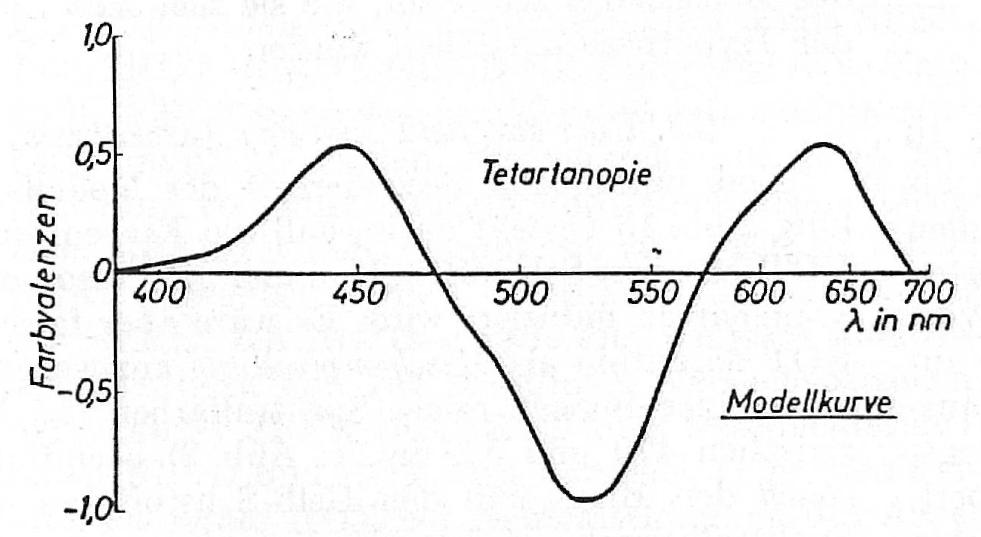 Abb. 21.
Farbvalenzkurven der (Modell-)Tetartanopie. Sie entspricht der ROT-GRÜN-Valenzkurve (RG) des normalen Farbensehens (Abb. 13)
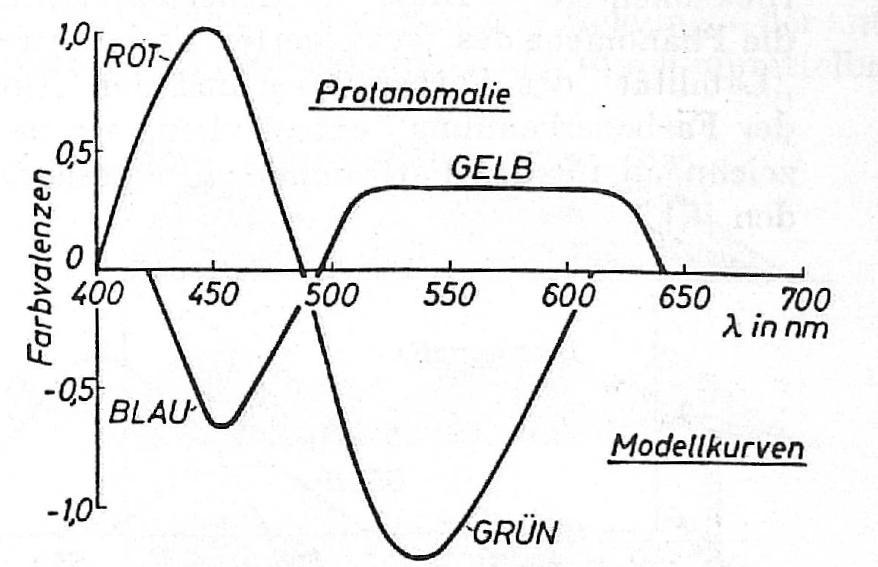 Abb. 22.
Farbvalenzkurven der (Modell-)Protanomalie. Die ROT-GRÜN-Valenzkurve gleicht der Protanopiekurve der Abb. 20. Die BLAU-GELB-Kurve wurde folgendermaßen konstruiert: Zunächst wurde die Blau-Absorptionskurve negativ aufgetragen (αbB=1). Daraufhin wurde im positiven Bereich ein Feld von gleicher Flächengröße konstruiert, seitlich begrenzt durch die Flanken der Blau- und der Grün-Absorptionskurve nach Multiplikation mit den Faktoren αbR=0,6 und αgG=1,7; dieses Feld repräsentiert die Gelb-Meldungen, die auf dem Weg über die F*-Instanz (s. Abb. 17) von der BLAU-Leitung in die Gelb-Leitung einfließen. Daraufhin wurde die Subtraktion vorgenommen (– blau + gelb), so daß eine BLAU-GELB-Funktionskurve entstand. Hierauf wurde die Null-Linie so weit — ähnlich wie in Abb. 19 — verschoben, bis Flächengleichheit zwischen der BLAU- und der GELB-Kurve erreicht war. All dies geschah wie in Abb. 19 unter Verwendung der linearen Wellenzahlenskala (vgl. Abschnitt B1). Die entstandenen Kurven wurden dann in die lineare Wellenlängenskala umgezeichnet. — Die Konstruktion einer BLAU-GELB-Valenzkurve bei fehlenden Gelb-Receptoren ist zur Zeit nur auf Grund einiger willkürlicher Ausnahmen möglich, wie sie auch in der obigen Herleitung stecken. Doch sollte hier ein erster Hinweis auf die ungefähren Formen der Valenzkurven der Protanomalie gegeben werden, die sich aus der Modellrechnung ergeben. — Durchtrittspunkte durch die Null-Linie 487 und 495 nm
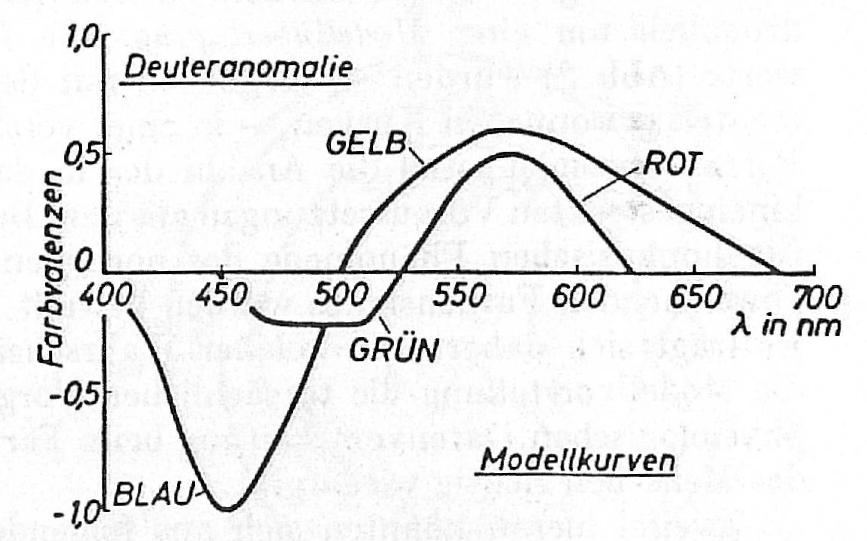 Abb. 23.
Farbvalenzkurven der (Modell-)Deuteranomalie. Die BLAU-GELB-Kurve entspricht der entsprechenden Farbvalenzkurve des Farbnormalen (s. Abb. 13). Die GRÜN-ROT-Kurve ist nach dem gleichen Prinzipien konstruiert wie die BLAU-GELB-Kurve der (Modell-)Protanomalie Abb. 22. Durchtrittspunkte durch die Null-Link 502 und 530 nm
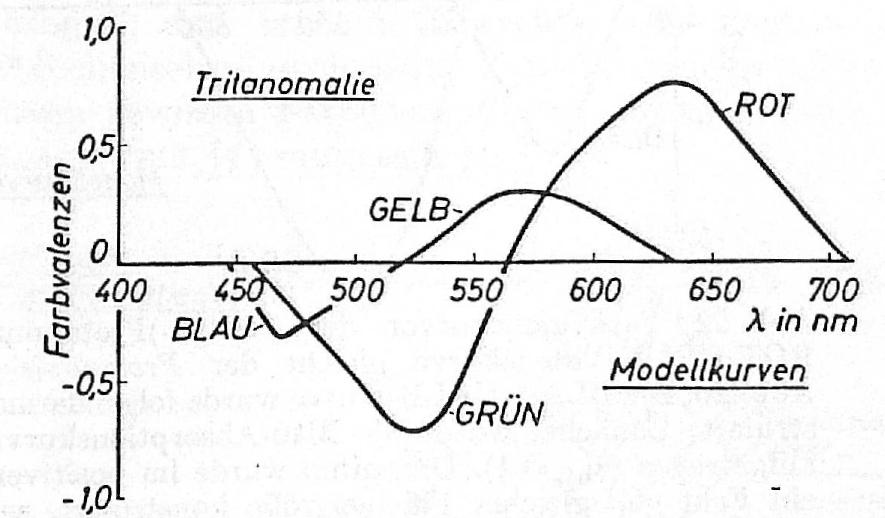 Abb. 24.
Farbvalenzkurven der (Modell-)Tritanomalie. Die GRÜN-ROT-Kurve entspricht der Valenzkurve der Tritanopie (Abb. 20). Die BLAU-GELB-Kurve ist nach den gleichen Prinzipien konstruiert wie die BLAU-GELB-Kurve bei der Protanomalie (Abb. 22), nur daß dort der Gelb-, hier aber der Blau-Receptor ausfällt. Durchtrittspunkte durch die Null-Linie 520 und 504 nm
Die Übereinstimmungen liegen bei den fehlenden Sehstoffen, bei den Verkürzungen des sichtbaren Spektrums und — besonders kritisch — bei den Wellenlängen der Graustellen. Die Graustellen entsprechen im Modell den Neutralstellen eines Gegenfarbensystems, sofern nicht das jeweils andere Gegenfarbensystem bei der betreffenden Wellenlänge eine Farbmeldung liefert. Aus diesem Grunde erscheinen im Modell Graustellen im Spektrum 1. bei denjenigen Farbsehstörungen, bei denen eine der beiden Subtraktionsinstanzen ausgefallen ist, also bei den vier Dichromasien, 2. bei der Protanomalie, obwohl dort beide Gegenfarbensysteme aktiv sind (Abb. 22); aber deren beide Neutralstellen liegen nach der Modellrechnung beinahe bei derselben Wellenlänge. — Es ist aber auch verständlich, daß eine Graustelle im Spektrum der Protanomalen manchmal angegeben, manchmal aber auch geleugnet wird: Beide Gegenfarbensysteme der Protanomalen sind ja nach der Modellvorstellung bei neutraler Beleuchtung farbverstimmt, weswegen die Positionen der Graustellen der beiden Systeme verhältnismäßig variabel sein müßten; sie brauchen sich bei verändertem Zustand der Farbadaptation nicht mehr zu decken. — Ähnlich liegen die Verhältnisse bei der Deuteranomalie (Abb. 23): Hier wären die GRÜN-Meldungen so schwach, daß die Neutralstelle des BLAU-GELB-Systems farblos erscheint.
Bei den drei Farbanomalien sowie bei zwei der Dichromasien befindet sich nach der Modellvorstellung der Mechanismus der Farbadaptation bei neutraler Beleuchtung nicht in der Ruhelage; das Farbsehsystem ist farbverstimmt. Dies muß zur Folge haben, daß die Farbstimmung sehr stark von der jeweiligen Tönung des Gesichtsfeldes abhängig ist, aber auch von Helligkeitsschwankungen; denn die Farbstimmung muß bei Dunkelheit die Tendenz haben, zu ihrer Ruhelage zurückzukehren. — Diesen Modelleigenschaften könnten die Phänomene des "gesteigerten Farbkontrastes", der "Labilität" des Farbensinnes und der "Unsicherheit der Farbenerkennung" entsprechen, wie sie als kennzeichnend für die Farbenanomalien beschrieben werden [5].
G. Schlußfolgerungen
G 1. Anwendbarkeit der Modellvorstellung
Die in Abschnitt D erarbeitete und auf Abb. 16 (und 17) dargestellte Modellvorstellung hat sich als geeignet erwiesen, sämtliche in Abschnitt B aus dem Tatsachenbereich des normalen und des gestörten Farbensehens des Menschen zusammengestellten Voraussetzungen zu einem widerspruchslosen Bild zusammenzufügen: Dabei handelt es sich jedoch ausdrücklich um eine Modellüberlegung: die Eingangswerte (Abb. 2) wurden — verglichen mit den experimentell gewonnenen Kurven — in einer vereinfachten Form verwendet; und die Anzahl der in das Modell hineingesteckten Voraussetzungen aus dem Bereich der psychophysischen Phänomene des normalen und des abweichenden Farbensinnes wurden bewußt begrenzt. Es fragt sich daher, mit welcher Wahrscheinlichkeit die Modellvorstellung die tatsächlichen Vorgänge der physiologischen Datenverarbeitung beim Farbensehen des Menschen richtig wiedergibt.
Zweifel hieran könnten sich aus folgenden Überlegungen herleiten: 1. Außer dem System der Abb. 16 könnten noch andere Systeme denkbar sein, die — als theoretische Modelle — das gleiche leisten. 2. Die in Abschnitt B zusammengestellten Voraussetzungen könnten trotz der auf die Auswahl verwendeten Sorgfalt nicht repräsentativ sein; es könnte nicht berücksichtigte Fakten geben, die die Möglichkeit der in Abb. 16 angegebenen Verrechnungsweise widerlegen.
Auf den ersten Einwand wäre zu antworten: Einerseits sind aus logischen Gründen — s. Abschnitt D — außer der besprochenen nur noch solche Modellvorstellungen auf die Voraussetzungen des Abschnitts B anwendbar, die strukturell komplizierter sind; beispielsweise müßte dann mehr als nur eine der vier "reinen Farben" (BLAU, GELB, GRÜN, ROT) aus den Meldungen von zwei Zapfenarten gespeist werden (im Modell Abb. 16 ist es nur das ROT). Meist bewährt sich aber in der Biologie das heuristisch fruchtbare Prinzip, die jeweils einfachste unter den den Tatsachen gerecht werdenden Vorstellungen als Arbeitshypothese zu verfolgen. — Andererseits erweist es sich erfahrungsgemäß als äußerst schwierig, für eine größere Anzahl von unabhängig gewonnenen Funktionsdaten einen widerspruchslosen Systemzusammenbang zu finden; daß für die über 20 Einzeldaten und Meßkurven des Abschnitts B aber nicht nur eine, sondern zugleich noch eine zweite in sich widerspruchslose Modellvorstellung möglich sein sollte, halte ich für unwahrscheinlich. Die Möglichkeit hierfür prinzipiell zu negieren, wäre aber nicht zu begründen.
Zum zweiten Einwand wäre zu erwidern: Natürlich steckt die Möglichkeit zum Irrtum in jeder Auswahl von empirischen Voraussetzungen für eine theoretische Überlegung. Ich versuchte dieser Gefahr zu begegnen, indem ich solche Daten als repräsentativ für das Farbensehen des Menschen auswählte, die aus möglichst unabhängigen Beobachtungen herrühren.
Diese Überlegungen veranlassen mich zum Aussprechen der Arbeitshypothese [11], daß die physiologische Datenverarbeitung beim Farbensehen des Menschen durch die Formeln (1)—(4) in Abschnitt E2 und durch Abb. 16 qualitativ und annähernd quantitativ zutreffend wiedergegeben wird. In den folgenden Abschnitten seien einige Grundzüge des Farbensehens des Menschen beschrieben, wie sie sich beim Zutreffen der Hypothese darstellen würden.
G 2. Über das ROT und den Farbenkreis
Eine auffallende Besonderheit der Modellvorstellung Abb. 16 besteht darin, daß die Farbempfindung ROT von zwei Sehstoffen, blau und gelb, also von zwei Zapfenarten induziert wird. Es wäre aber falsch, das ROT daraufhin als Mischempfindung anzusehen. Nur ein kleiner Bereich reiner Spektralfarben (im Modell zwischen 470 und 520 nm, s. Abb. 2) beeinflußt zugleich den Blau- und den Gelb-Sehstoff; zu diesem Spektralbereich gehört überdies eine viel stärkere Wirksamkeit des Grün-Sehstoffs, so daß die ins GRÜN/ROT-System eintretenden und dabei sich "mischenden" Blau- und Gelb-Meldungen gar keine ROT-Empfindung auslösen können, sondern sich nur in der Reduzierung der GRÜN-Intensität auswirken.
Man muß das ROT darum nach der Modellvorstellung als eine zweite Qualität sowohl des Blau- als auch des Gelb-Receptors auffassen. Die ROT-Empfindung wird von den selben Sehstoffen bzw. Receptormeldungen induziert wie die Empfindungsqualitäten BLAU und GELB. Blau- und Gelb-Receptoren wären demnach zutreffend als "BLAU- und -ROT-" bzw. als "GELB- und -ROT-Receptoren" zu bezeichnen.
Daß sich dabei das ROT dem BLAU bzw. dem GELB im sichtbaren Spektrum nun nicht einfach überlagert, sondern in seiner Empfindungsstärkenkurve gegen BLAU und GELB verschoben ist (s. Abb. 13), liegt daran, daß von den künftigen ROT-Meldungen die Meldungen des Grün-Sehstoffes subtrahiert werden, und daß die Grün-Meldungen dabei mit einem größeren Gewicht in die Verrechnung eingehen: Dadurch werden die Maxima der ROT-Empfindung von denen der BLAU- und der GELB-Empfindung in Richtung auf die Enden des Spektrums gleichsam "abgedrängt". Abb. 25 demonstriert dies schematisch. Damit wird deutlich, welchen funktionellen Sinn es hat, daß die Grün-Meldungen mit einem höheren Gewicht als ihre beiden Antagonisten in die Verrechnung eingehen: Hierdurch wird ein Maximum an Farbtonunterschieden in den Randbereichen des sichtbaren Spektrums erreicht.
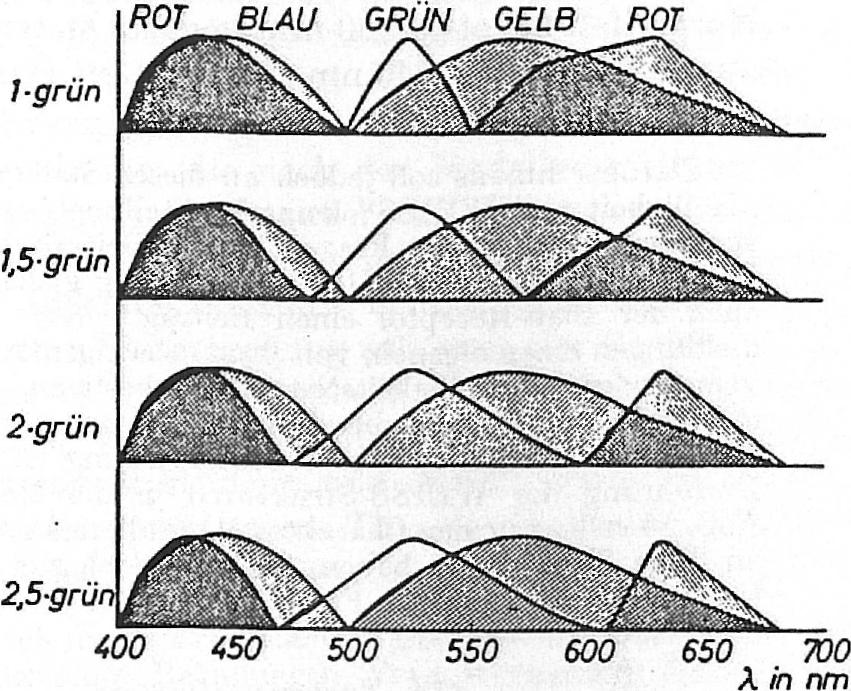 Abb. 25.
Schematische Darstellung der Farbenbereiche im Spektrum bei verschiedenem relativen Gewicht αgG der "Grün"-Meldungen; alle anderen Meldungen sind in den vier Teilabbildungen mit gleichbleibendem Gewicht eingerechnet: αbB=1, αyY=0,6, αbR=1, αyR=1. Alle Einzelkuren wurden auf gleiche Maximalhöhe normiert; Vorzeichen wurden nicht berücksichtigt. Man erkennt, wie auf der kurzwelligen Seite bei zu geringem Unterschied zwischen αbR und αgG das BLAU und das ROT nicht voneinander differenziert sind; der gesamte Bereich würde unterschiedslos VIOLETT ergeben. Hier entspricht die unterste Teilabbildung etwa den tatsächlichen Verhältnissen (s. Abb. 13, 14). Im langwelligen Bereich wird das Optimum der Differenzierung dann erzielt, wenn der GRÜN-ROT-Übergang etwa mit dem GELB-Gipfel übereinstimmt. Dies ist in der ersten und zweiten Teilabbildung der Fall. Den tatsächlichen Verhältnissen entspricht etwa die zweite Teilabbildung
Da die "zweite Qualität" des Blau- und die "zweite Qualität" des Gelb-Receptors somit vornehmlich durch die Strahlung des kurzwelligen und des langwelligen Endes des sichtbaren Spektrums ausgelöst werden, und weil diese beiden "zweiten Qualitäten" einander gleich sind, sind die endständigen Farben des Spektrums einander qualitativ ähnlicher als den Farben der Mitte des Spektrums; VIOLETT ist dem SPEKTRALROT verwandter als dem GRÜN. Will man die qualitative Ähnlichkeit graphisch repräsentieren, so muß man die Enden des Spektrums einander näher bringen als den mittleren Teilen des Spektrums. Hierdurch deutet sich der "Farbenkreis" (Abb. 26) an. Man vervollständigt ihn, indem man die Enden des Spektrums durch diejenigen Farbtöne verbindet, die sich durch Mischung von Lichtern des kurz- und langwelligen Endes des Spektrums ergeben; hierdurch entsteht der PURPUR-Bereich.
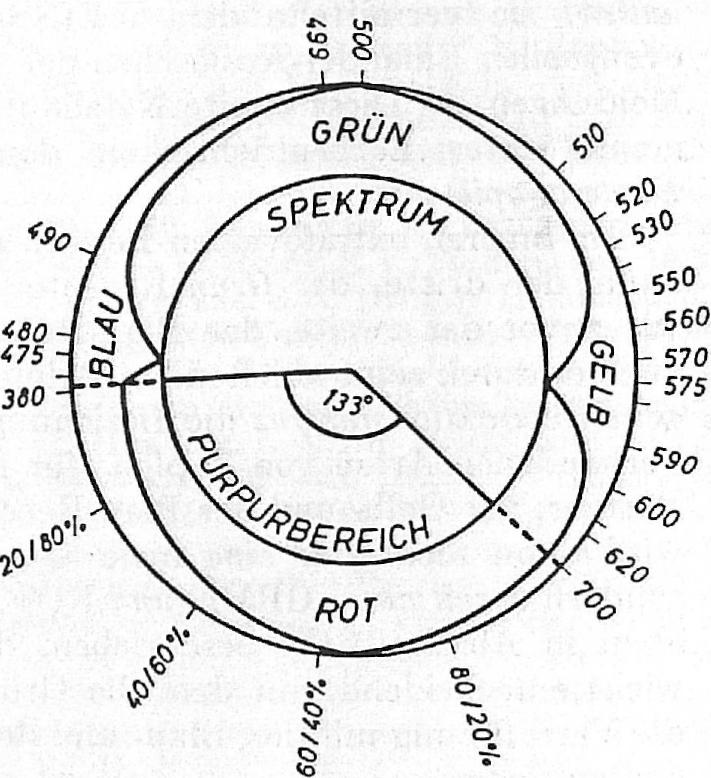 Abb. 26.
Darstellung des "Farbenkreises" mit Andeutung der Anteile der Farben BLAU, GRÜN, GELB und ROT. Zur Konstruktion wurden verwendet: Die Farbenanteilfunktion Abb. 15 und das "Farbendreieck" [15] Abb. 31
Da sowohl dem Blau- wie dem Gelb-Receptor je zwei Empfindungsqualitäten zugeordnet sind, sind die Spektralfarben an den beiden Enden des Spektrums Mischqualitäten: am kurzwelligen Ende VIOLETT = BLAU-ROT-Mischung; am langwelligen Ende SPEKTRALROT = ROT-GELB-Mischung. Die reine Empfindung ROT kann demgemäß durch kein spektralreines Licht induziert werden. Sie entsteht nur durch eine Mischung von kurzwelligem und langwelligem Licht: Dem SPEKTRALROT muß so viel VIOLETT oder BLAU zugegeben werden, daß die GELB-Beimischung des SPEKTRALROTs gerade zu "neutral" kompensiert wird. In der Tat empfinden Versuchspersonen, denen außer SPEKTRALROT auch Mischlichter zwischen BLAU und ROT zum Vergleich angeboten werden, als reines ROT bei Neutralstimmung des Auges keine reine Spektralfarbe, sondern eine Mischung aus (viel) SPEKTRALROT und (wenig) VIOLETT oder BLAU [12].
Auch entspricht — sowohl nach der Modellvorstellung als auch empirisch — die kompensative Farbe zu reinem GRÜN keiner reinen Spektralfarbe, sondern der eben genannten Mischung aus SPEKTRALROT und VIOLETT (oder BLAU). — Zusammenfassend kann man somit sagen: Reines ROT entsteht nur durch Mischung reiner Spektralfarben; durch diese Mischung werden die den Spektralfarb-Empfindungen zugeordneten Beimischungen BLAU und GELB gegenseitig zu null kompensiert, so daß die physiologisch einheitliche ROT-Meldung übrigbleibt.
Physikalisch reine Spektralfarben können also psychophysisch reine Farben oder auch Mischfarben induzieren; die psychophysisch reinen Farben lassen sich von reinen Spektralfarben oder auch von spektralen Gemischen hervorrufen; nur ROT macht eine Ausnahme: Es läßt sich nur durch spektrale Gemische hervorbringen.
G 3. Bemerkungen zum WEISS-Problem
Gegenfarben, in entsprechendem Intensitätsverhältnis am gleichen Gesichtsfeldort dargeboten, löschen sich gegenseitig in ihren Farbcharakteren aus; es ergibt sich aber nicht die Empfindung "kein Licht", sondern die nicht farbige Qualität WEISS. Der dem WEISS entsprechend physiologische Ausgangswert könnte sich in dieser Situation theoretisch auf zweierlei Weisen bilden: Durch nichtlineare Wechselwirkung, z. B. Multiplikation, zwischen den Meldungen der antagonistischen Farbreceptoren; oder durch unmittelbare Signale der Farbreceptoren auf Bahnen, die die Subtraktionsinstanzen umgehen. Da zur Zeit kaum etwas für die erste Alternative spricht, sind in das Schema der Abb. 16 drei von den Receptoren ausgehende signalleitende Verbindungen eingezeichnet, die zum Ausgangspunkt WEISS hinführen. (Dabei ist die Leitung vom Blau-Receptor gestrichelt gezeichnet als Ausdruck davon, daß der Beitrag dieses Receptors zum WEISS, falls überhaupt vorhanden, sehr gering ist.)
Für die qualitative Richtigkeit dieser Modellannahme spricht folgendes: Sowohl beim Fehlen des Gelb- wie bei dem des Grün-Receptors — nicht aber beim Fehlen des Blau-Receptors — ist die Helligkeitsverteilung im Spektrum verändert. Ihr Maximum (im Normalfall bei etwa 560 nm) liegt im ersten Fall (Protanopie) bei etwa 540 nm, im zweiten (Deuteranopie) bei etwa 570 nm [5].
Darüber hinaus soll jedoch an dieser Stelle zum Problem "Helligkeit und WEISS" keinerlei Stellung bezogen werden, vor allem nicht zu den Fragen, ob der Beitrag der Grün- und Gelb-Receptoren zur WEISS-Empfindung gleich groß ist, ob auch der Blau-Receptor einen Beitrag liefert, ob die Farbmeldungen einen eigenen, von ihrem etwaigen WEISS-Gehalt verschiedenen "Helligkeitscharakter" besitzen, ob die Farbmeldungen nach den Subtraktionsvorgängen noch einmal mit den WEISS-Meldungen in Wechselwirkung treten usw. Die Einführung der WEISS-Strukturen in die Modellschaltung Abb. 16 sollte nur den Charakter einer allerersten Annäherung an diese Problematik haben. Sie ist jedoch zur ersten Orientierung in der folgenden Frage von Nutzen:
G 4. Farbenperimetrie
Träfe die durch Abb. 16 dargestellte Hypothese zu, so würden die drei durch die Farbenperimetrie unterscheidbaren extrafovealen Netzhautzonen verschiedener Farbtüchtigkeit von außen nach innen die Abfolge von drei aufeinander aufbauenden funktionellen Entwicklungsstadien des Farbensehens repräsentieren (vgl. Abb. 9 und 16): Die äußerste Zone enthielte ausschließlich Zapfen mit dem Pigment der Gelb-Receptoren, und zwar nur in Verbindung mit den WEISS-Instanzen. In der nächstinneren Zone kämen hinzu: 1. Das Blau-Pigment; 2. die BLAU/GELB-Subtraktionsinstanzen mit den Verbindungen zu den BLAU- und GELB-Ausgangswerten. Die Verbindung des Gelb-Receptors zur WEISS-Instanz bliebe dabei erhalten; sie vermittelte den WEISS-Eindruck beim eventuellen Einander-Auslöschen der Blau- und Gelb-Meldungen. — Diese zweite Netzhautzone entspräche gemäß ihrer Farbentüchtigkeit dem Zustand der Deuteranopie.
Im inneren extrafovealen Bereich der Retina träte dann der dritte, der Grün-Receptor hinzu. Ähnlich wie zuvor der zweite, der Blau-Receptor, so knüpft auch er durch seine ableitenden Bahnen über eine doppelte Subtraktions-Instanz die Beziehung zu den bereits vorhandenen Arten von Zapfen; für ihn sind es zwei Partner, der Gelb- und der Blau-Receptor. Hierdurch wird dann nicht nur eine neue Qualität gewonnen, sondern deren zwei: GRÜN und ROT. Dabei war, wie oben in Abschnitt G2 beschrieben, das größere Gewicht entscheidend, mit dem die Grün-Meldungen in die Verrechnung mit den Blau- und den Gelb-Meldungen eintraten.
Im Rahmen der früheren Anschauung (entsprechend Abb. 11) mußte man die unplausible Annahme machen, bereits in dem BLAU-GELB-sichtigen Netzhautbereich müßten alle drei Zapfenarten wie in der vollständig farbentüchtigen Zone vorhanden sein, da sich ja das GELB aus Grün- und "Rot"-Meldungen ergeben sollte. Es war dann aber schwer einzusehen, warum in diesem Bereich gerade die primären Meldungen der Grün- und der "Rot"-Receptoren, nämlich GRÜN und ROT, nicht wahrnehmbar sein sollten.
Sollte die hier entwickelte Modellvorstellung zutreffen, so folgten aus ihr entschiedene Forderungen an die synaptischen Schaltungen im Zusammenhang mit den unterschiedlichen farbentüchtigen Retinabereichen; diese Synapsen wird man wohl in der Retina selbst erwarten dürfen. In der Peripherie wäre nur ein einziger Synapsentypus zu erwarten: von Gelb-Receptoren zu WEISS-Leitungen (Abb. 16, ganz rechts). Das nächst-innere Feld würde zusätzlich Verrechnungsinstanzen mit zwei Arten von Eingängen (von Blau-Zapfen und Gelb-Zapfen; die einen exzitatorisch, die anderen inhibitorisch) erwarten lassen (Abb. 16, ganz links). Im extrafovealen Zentralbereich wären dazu noch Verrechnungsinstanzen mit insgesamt drei Arten von Eingängen, zwei exzitatorischen und einem inhibitorischen (oder umgekehrt) zu fordern (Abb. 16, Mitte).
G 5. Farbtonunterscheidung
Die entscheidende biologische Funktion des Farbensehens ist die Wellenlängenunterscheidung. Die Farbtonunterscheidungsfunktion (Abb. 8) — oder besser: das Integral über diese — würde ein (allerdings auf die Spektralfarben beschränktes) Maß für die biologische Leistungsfähigkeit eines Farbensystems darstellen.
Wie die Erörterungen von Abschnitt E4 erkennen ließen, ist der formale Zusammenhang zwischen der Farbtonunterscheidungsfunktion und den Absorptionskurven der Sehstoffe keineswegs einfach: Die Modell-Farbtonunterscheidungsfunktion Abb. 8 gibt den Differentialquotienten der auf Prozentwerte umgerechneten (Abb. 15) Farbempfindungskurven (Abb. 13) wieder, welche selbst erst durch die Transformationsformeln (1)—(4) aus den Absorptionskurven (Abb. 3) entstehen. Eine manchmal vermutete direkte Korrelation zwischen guter Farbtonunterscheidung und Mischfarben sowie zwischen schlechter Farbtonunterscheidung und Grundfarben ist daher als allgemeine Regel nicht aufrechtzuerhalten. Dies könnte für künftige Untersuchungen über das Farbensehen von Tieren wichtig sein. — Abb. 27 zeigt in einer tabellarischen Zusammenstellung, wie wenige augenfällige Korrelationen aus dem Zueinander von Absorptionsmaxima, reinen Farben und Maxima der Farbtonunterscheidungsfunktion abzulesen sind.
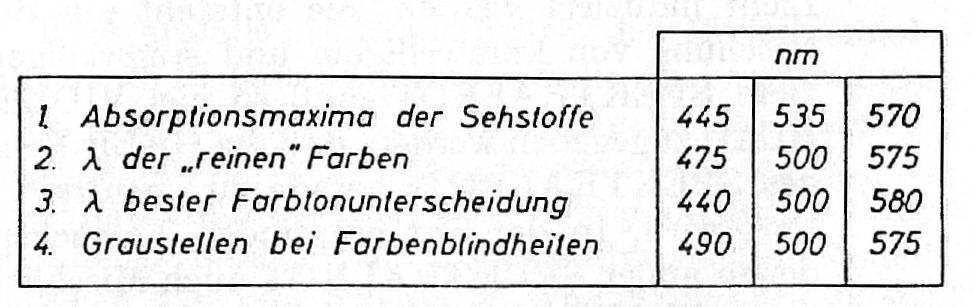 Abb. 27.
Ungefähre Wellenlängen von "Kardinalpunkten" bei der Farbenwahrnehmung des Menschen. Übereinstimmungen finden sich in der ersten der drei Wertekolonnen zwischen den Zahlenangaben der Zeilen 1 und 3; in der zweiten Wertekolonne zwischen den Zeilen 2, 3 und 4; und in der dritten Wertekolonne zwischen 1, 2, 3 und 4. Keine Korrelation zwischen den Zeilen ist also durchgehend! Die Modellrechnung beschreibt den Formalismus, nach dem die Phänomene der Zeilen 1-4 miteinander zusammenhängen
G 6. Über den gestörten Farbensinn
Träfen die Modellvorstellungen der Abb. 16 auf die Farbensinnstörungen in der Weise zu, wie dies in Abschnitt F und den Abb. 18—24 dargestellt ist, so wären damit manche offenen Fragen unmittelbar beantwortet; es müßten aber auch einige derzeit gängige Anschauungen revidiert werden.
Die Farbanomalien würden sich von den Farbenblindheiten darin unterscheiden, daß bei den ersteren jeweils eine der drei Arten von Zapfensehstoffen fehlte, bei den letzteren eine der beiden Subtraktionsinstanzen wegfiele [16]. Während sich damit eine gebräuchliche systematische Unterscheidung (Farbanomalien/Farbenblindheiten) als sinnvoll bestätigte, wäre eine andere zu korrigieren: Trichromatisch wären nur das normale Farbensehen und die Tetartanopie; alle übrigen sechs Farbensinnstörungen — einschließlich der Farbanomalien — fielen in die Kategorie der Dichromasien. Der Ausdruck "anomale Trichromasie" wäre in sich falsch und müßte fallengelassen werden.
Die Farbanomalien waren stets darum zu den Trichromasien gerechnet worden, weil beim Vorliegen dieser Störungen alle wichtigen Farben BLAU, GRÜN, GELB und ROT ähnlich wie beim normalen Farbensehen — wenn auch unsicherer und schwächer — angesprochen werden können. Es schien sich mehr um eine quantitative Schwächung des Farbensehvermögens zu handeln als um einen qualitativen Verlust. Man hatte hierbei jedoch nicht an die Fähigkeit der Farbadaptation gedacht, auf Grund farbiger Umstimmungen auch solche Farben zur subjektiven Erscheinung zu bringen, deren adäquater Reiz nicht vorhanden ist. Nach der Modellvorstellung sind alle Farbanomalen bei neutraler Beleuchtung farbumgestimmt, woraus die Möglichkeit zur Empfindung der betreffenden Gegenfarben innerhalb eines polychromen Gesichtsfeldes (Modellfall: sichtbares Spektrum) zwingend folgt.
Ein besonderes Gewicht hat hinsichtlich der hier vertretenen Hypothese die Existenz der Tetartanopie (Abb. 21). Als äußerst seltene Farbsehstörung hatte sie bisher wenig Beachtung gefunden und ist selbst manchem Spezialisten unbekannt. Wäre sie wegen ihrer Seltenheit bisher übersehen worden, so wäre ihre mögliche Existenz jedoch durch die Modellvorstellung wahrscheinlich gemacht worden bzw. vorauszusagen gewesen (s. Abb. 18). Die Tetartanopie ist ferner theoretisch insofern von besonderem Interesse, als sie — sofern die hier entwickelte Hypothese richtig ist — das GRÜN/ROT-Gegenfarbensystem gleichsam in reiner Form demonstrierte. Entscheidend ist dabei, daß der Tetartanope kurzwelliges Licht nicht von langwelligem unterscheiden kann, daß aber die Mitte des Spektrums für ihn eine andere Farbe hat. — Hierdurch wäre übrigens die Natur des Spektralfarbtons VIOLETT als einer physiologischen Mischung aus BLAU und ROT von einer unabhängigen Seite her bestätigt.
Aus der Modellvorstellung ergeben sich Voraussagen über die Farben, die von den Dichromaten subjektiv wahrgenommen werden. Diese Identifizierung ist empirisch nur bei solchen Patienten möglich, deren eines Auge normal farbentüchtig ist und deren anderes Auge die Farbsehstörung aufweist. Volle Übereinstimmung zwischen Voraussage und Befunden besteht für die Deuteranopie und die Tritanopie: Im ersten Fall werden die Farben BLAU und GELB, im zweiten GRÜN und ROT wahrgenommen [5] — vgl. Abb. 21. Für die Protanopie wird jedoch in der Literatur wie bei der Deuteranopie BLAU und GELB angegeben [5]. Hier besteht also ein klarer Widerspruch zur Modellvorstellung, nach welcher der Protanope ROT und GRÜN wahrnehmen müßte.
H. Ungelöste Fragen
Eine ungelöste Frage wurde am Schluß des vorangehenden Abschnitts erwähnt: Die nach den subjektiven Farbenwahrnehmungen des Protanopen. Ein weiteres ungelöstes Problem ist folgendes: RUSHTON [21] gibt an, Protanomale würden einen schwachen Farbtonunterschied zwischen den Wellenlängen (etwa) 530 und 570 nm empfinden, auch nachdem die Intensitätsunterschiede abgeglichen wurden. RUSHTON folgert daraus die Existenz eines Sehstoffs, der den bei den Protanomalen fehlenden Gelb-Sehstoff (in seiner Terminologie: Erythrolab) ersetzt. Würde er einen solchen finden, so wären die Protanomalen doch keine Dichromaten, wie in Abschnitt G6 angegeben wurde, sondern wirklich anomale Trichromaten.
Die dargestellte Hypothese macht viele Voraussagen, die empirisch nachprüfbar wären, aber noch nicht nachgeprüft sind. Vor allem gehört hierher die Farbverstimmung des Farbsehsystems bei neutraler Beleuchtung, die nach der Modellvorstellung für alle Farbsehstörungen außer der Deuteranopie und der Tetartanopie vorliegen muß, und ferner die Anwesenheit aller drei Sehstoffe bei der Tetartanopie. In einer späteren Untersuchung soll auch die Beziehung der in dieser Arbeit skizzenhaft vorgetragenen Modellvorstellung zu den quantitativen Daten der derzeitigen Farbmetrik studiert und damit, wenn möglich, eine genauere quantitative Theorie des menschlichen Farbensehens vorgelegt werden.
Ich danke Frau URSULA BOCK für die Durchführung aller numerischen Rechnungen, Frau MARGARETE KLINGE für die Anfertigung der Zeichnungen, Herrn Dipl.-Biol. OTTO V. HELVERSEN für viele klärende Gespräche, Herrn Stud.-Ref. RODERICH ENGELHARDT für die Durchsicht der Rechnungen und für die Gestaltung der Abb. 15 und Herrn Dipl.-Ing. KLAUS KALBERLAH für Ratschläge und für die kritische Durchsicht des Manuskripts.
Literatur
- RUSHTON, W. A. H.: Nature (Lond.) 179, 571-572 (1957); 206, 1087-1091 (1965); dort weitere Literaturangaben.
- MARKS, W. B., W. H. DOBELLE, and E. F. MACNICHOL: Science 143, 1181 (1964).
- BROWN, P. K., and G. WALD: Science 144, 45 (1964).
- BLACKWELL, H. R., and O. M.: Vision Res. 1, 62-107 (1961).
- TRENDELENBURG, W.: Der Gesichtssinn, 2. Aufl. Berlin-Göttingen-Heidelberg: Springer 1961.
- SVAETICHIN, G.: Acta physiol. scand. 39, Suppl. 134, 17 (1956); MACNICHOL, E. F., and G. SVAETICHIN: Amer. J. Ophthal. 46, 26-40 (1958); s. auch BURKHARDT, D.: Naturwissenschaften 50, 586 (1963).
- VALOIS, R. L. DE, G. H. JACOBS u. A. E. JONES: Optik 20, 87-98 (1963).
- WALD, G., und P. K. BROWN: Cold Spr. Harb. Symp. quant. Biol. 30, 345 (1965).
- MEESSEN. A.: Kybernetik 4, 48 (1967).
- KOHLER, I.: Über Aufbau und Wandlungen der Wahrnehmungswelt. Ost. Akad. Wiss. 227, 1-114 (1951).
- HASSENSTEIN, B.: Naturwissenschaften 54, 320 (1967).
- TSCHERMAK, A.: Naturwissenschaften 18, 589-595 (1930).
- HOLST, E. v.: Studium gen. 10, 231-243 (1957).
- STEVENS, S. S. (Hrsg.): Handbook of experimental psychology. New York and London: John Wiley & Sons 1951 u. 1962.
- BOUMA, P. J.: Farbe und Farbwahrnehmung. Eindhoven (Holland): Philips Technische Bibliothek 1951.
- HURVICH, L. M., u. D. JAMESON: J. opt. Soc. Amer. 45, 546-552, 602-616 (1955); - Theorie der Farbwahrnehmung. In: Handbuch der Psychologie. Bd. I. Hrsg. W. Metzger, Göttingen 1966.
- VALOIS, R. L. DE, und I. ABRAMOV: Color vision. Ann. Rev. Psychol. 17, 337-362 (1966).
- Committee on Colorimetrie, Optical Society of America: The science of color. Washington D. C.: Optical Society of America 1953 u. 1963.
- DARTNALL, H. J. A.: Identity and distribution of visual pigments. In: H. DAWSON (Hrsg.), The eye. Bd. II. S. 367-426; Fig. 8, S. 380. New York and London: Academic Press 1962.
- WYSZECKI, G., and W. S. STILES: Color science. New York-London-Sidney: John Wiley & Sons 1967.
- RUSHTON, W. A. H.: Persönliche Mitteilung.
- HURVICH, L. M.: J. opt. Soc. Amer. 58, 429-430 (1968).
- NAKA, K. I., and W. A. H. RUSHTON: J. Physiol. (Lond.) 185, 536-555, 556-586, 587-599 (1906).
1) Anmerkung bei der Korrektur. HURVICH und JAMESON kündigen eine Herleitung der Farbwahrnehmungsfunktionen von den gemessenen Sehstoff-Absorptionskurven an, deren Erscheinen für das März-Heft 1968 des Journal of the Optical Society vorgesehen ist [22].