


Aus: Lexikon der Biologie HERDER Freiburg · Basel · Wien 1983-1987
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (34 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Beiträge zum Lexikon der Biologie (Herder)
Bernhard Hassenstein
Inhalt
- Entropie und ihre Rolle in der Biologie
- Information und Instruktion
- Injunktion
- Regelung im Organismus
- Steuerung
- Jugendentwicklung: Tier-Mensch-Vergleich
- Mensch und Menschenbild in biologischer Sicht
- Freiheit und freier Wille
Entropie und ihre Rolle in der Biologie
Im Verlauf von chemischen Prozessen und beim Übergang von einem in einen anderen Aggregatzustand bestehen die Elementarvorgänge in Trennungen und Neubildungen von chemischen Bindungen. Dabei kann sich die Temperatur erhöhen (z. B. in der brennenden Flamme od. wenn sich konzentrierte Schwefelsäure in Wasser verteilt) od. erniedrigen (z. B. wenn sich Kochsalz-Kristalle in Wasser auflösen, Kältemischung). Solche Temperaturänderungen haben zwei Ursachen:
a) Durch das Entstehen von Bindungen kann Wärmeenergie freigesetzt, durch die Trennung von Bindungen Wärmeenergie absorbiert werden. Was sich hiermit ändert, bezeichnet man als (zunehmende bzw. abnehmende) Enthalpie.
b) Durch die Vermehrung oder Verminderung von Bindungen oder auf sonstige Weise können sich die Anzahl und die Bewegungsfreiheitsgrade der beweglichen Teilchen vermehren oder vermindern. Dies bezeichnet man als Zunahme bzw. Abnahme der Entropie, d. h. des molekularen "Verwandlungsinhalts" der Materie.
Wie groß diese beiden Anteile an einem zu beobachtenden Gesamtprozeß sind, läßt sich nicht direkt messen, sondern nur indirekt erschließen. Doch gibt es für eigengesetzlich, also ohne äußeren Zwang ablaufende Prozesse einzelne Beispiele, in denen sich keine molekularen Bindungen bilden oder lösen und an denen man daher reine Auswirkungen von Entropieänderungen beobachten kann: Befestigt man beispielsweise ein Gewicht an einem senkrecht gehaltenen (vulkanisierten) gespannten Gummiband und gibt dann das zuvor festgehaltene Gewicht frei, so hebt das Gummiband das Gewicht, abhängig von dessen Masse, um einen bestimmten Betrag, leistet also Arbeit. Dabei wird das Gummiband meßbar kälter!
Die entscheidende Ursache für beides ist folgende: Im gedehnten Gummiband sind die selbst nicht dehnbaren Kettenmoleküle gestreckt und parallel ausgerichtet, haben aber die Tendenz, in den geknäuelten Zustand der Ruhelage zurückzukehren; in ihm können sie mehr und vielfältigere Wärmebewegungen vollführen. Auch eine von zwei Kindern gehaltene Wäscheleine zieht die Kinder zueinander, wenn sie in ihrer Mitte hin- und herbewegt und in dauernd wechselnde Schlingen gerafft wird. So erklärt sich die Tendenz zur Verkürzung. Dadurch, daß die Moleküle im geknäuelten Zustand mehr Bewegungsmöglichkeiten (Bewegungsfreiheitsgrade) haben, verteilt sich die vorhandene Bewegungsenergie auf mehr bewegliche Molekülteile. Damit nimmt die durchschnittliche Bewegungsenergie des einzelnen beweglichen Molekülteils ab, und dies äußert sich in der Abnahme der Temperatur. Daß die Verkürzung des Gummibandes tatsächlich durch die Wärmebewegungen in den Kettenmolekülen verursacht wird, zeigt sich daran, daß sich das Band bei Erwärmung noch weiter zusammenzieht — ganz im Gegensatz zu einem Metallstab, der sich bei Erwärmung verlängert. Für all diese Eigentümlichkeiten gilt beim entgegengesetzten Prozeß das Umgekehrte.
Δ G = Δ H - T Δ S
Entropievermehrung heißt hier also Leisten von Arbeit (= Produktion von freier Energie) und zugleich Erniedrigen der Temperatur. Anders ist das beim Entstehen von chemischen Bindungen: Hierdurch entsteht freie Energie und zugleich Wärme. Freie Energie ist Energie, die sich, entsprechende Vorrichtungen und Bedingungen vorausgesetzt, in mechanische (Muskelkontraktion), elektrische (Trockenbatterie) oder chemische Energie (ATP-Synthese) umsetzen läßt. Wenn chemische Prozesse, wie gewöhnlich, Entropieänderungen und Transformationen von chemischen Bindungen enthalten, faßt man die Beziehungen zwischen den Änderungen der freien Energie ΔG, der Enthalpie ΔH und der Entropie ΔS in der Formel (1) zusammen, wobei T die Temperatur ist. Die Vorzeichen in dieser Formel erklären sich daraus, daß man einer Produktion, d. h. Abgabe von freier Energie ΔG (weil sie für das System ein Energie verlust ist) und ebenso einer Wärmeproduktion ΔH das Vorzeichen minus verliehen hat; eine Vergrößerung der Entropie [ + ΔS], die ja zur Energieproduktion positiv beisteuert (siehe das Gummibandbeispiel), war daher mit dem Vorzeichen minus anzuknüpfen.
Formel (1) gilt für isobar und isotherm verlaufende Vorgänge, d. h., etwaige Volumenänderungen führen zu keinen Druckänderungen (z. B. weil alles bei Atmosphärendruck und nicht im abgeschlossenen Raum abläuft), und alle Temperaturänderungen werden durch eine Thermoregulierung ausgeglichen (dies kann, falls sich das Reaktionsgemisch von sich aus abkühlt, eine Energiezufuhr von außen zur Folge haben).
mitbestimmend für
die Arbeitsfähigkeit
Wie Formel (1) aussagt, sind etwaige Entropieänderungen im Verlauf eines chemischen Prozesses für die Arbeitsfähigkeit und unter Umständen auch für die Richtung, in der er abläuft, mitbestimmend. Wie schon angedeutet, gilt dabei: Entropievermehrung liefert zusätzliche reaktionsfördernde (freie) Energie, Entropieverminderung zehrt an ihr. Es wäre darum konsequent, nicht nur von ex- und endergonischen sowie exo- und endothermen Prozessen zu sprechen, sondern auch von exoentropischen (Entropievermehrung) und endoentropischen (Entropieverminderung). Dabei gilt für spontan verlaufende, also exergonische Prozesse (ΔG < 0) folgendes: Sind sie exoentropisch (ΔS > 0), so können sie je nach dem Vorzeichen und dem Betrag der Änderung der Bindungsenergien endotherm sein (wie beim sich zusammenziehenden Gummiband und beim Sich-Lösen von Salz in Wasser; ΔH < TΔS) oder exotherm (Brennen einer Kerzenflamme, ATP-Spaltung, Verdünnen von H2SO4 mit Wasser; ΔH > TΔS). Exergonische Prozesse können jedoch nur dann endoentropisch, also mit einer Entropieverminderung verlaufen, wenn die Enthalpieänderung energetisch überwiegt und damit die Gesamtreaktion exotherm ist (Eisbildung in unterkühltem Wasser; ΔH > TΔS); andernfalls wäre ΔG nicht negativ, und der Vorgang würde gar nicht spontan ablaufen.
spontane Entstehung
von Struktur und Ordnung
Ein biologisch bedeutsames Beispiel für eine spontan vor sich gehende Entropieabnahme und zugleich ein Modellfall für die spontane Entstehung von Struktur und Ordnung ist die Bildung der räumlichen (Tertiär-)Struktur von Proteinen. Der eindimensionale Informationsträger m-RNA übersetzt seine Information in die eindimensionale Aminosäuresequenz der Polypeptidkette, die sich nach ihrer Bildung zunächst in wäßrigem Milieu befindet. Ein Teil der Aminosäurereste ist hydrophil, ein anderer aber hydrophob. Diesem gegenüber haben die umgebenden Wassermoleküle schwächere Bindungstendenzen als untereinander, so daß sie zueinanderstreben, woraufhin sich die Peptidkette aufknäuelt (vergleichbar mit der Abrundungstendenz von Fettaugen auf der Suppe).
Dabei faltet sich aber die Peptidkette entsprechend den in den Seitenketten gemäß der genetischen Information verteilten Bindungsaffinitäten zu einer ganz bestimmten, vorgegebenen Form, ihrer typischen und für die Funktion erforderlichen Tertiärstruktur. Dabei verringert sich ihre Entropie (innere Beweglichkeit) analog zur Kristallbildung aus einer Schmelze. Biologisch kaum bedeutsam sind zwei physikalisch zwangsläufige begleitende Effekte dieser spontanen Strukturbildung: Es entsteht Wärme, und der Entropiegehalt der von ihren ursprünglichen Plätzen ausgewichenen H2O-Moleküle erhöht sich.
spontanem Prozeß
zunehmen, aber
auch abnehmen
Für die Richtung, Geschwindigkeit, Temperaturabhängigkeit u. Wärmeproduktion, aber auch für die Lage des Gleichgewichts bei chemischen und biochemischen Umsetzungen sind nach Formel (1) nicht allein die Entropieverhältnisse maßgebend, sondern sie wirken mit den Enthalpieverhältnissen (beim Entstehen und Sich-Trennen von chemischen Bindungen) zusammen. Die Entropie kann im Verlauf eines spontanen Prozesses, wie gesagt, nicht nur zunehmen, sondern auch abnehmen — letzteres, wenn die Entstehung der Bindungen mehr freie Energie produziert als durch die Entropieverringerung eingebüßt wird. Da die Entstehung neuer Bindungen wesensgleich ist mit der Vermehrung von Ordnung, heißt das zweierlei:
a) Wenngleich die Vermehrung der Entropie zur Verwischung von Ordnung und zur Zerstörung von Strukturen tendiert, so ist ihr die Tendenz von Atomen, sich zu verbinden, als ordnendes Prinzip entgegengerichtet.
b) Wie Gleichung (1) ausdrückt, vermehrt sich der energetische Einfluß der Entropie mit wachsender Temperatur; mit abnehmender Temperatur gewinnt dagegen die spontane Tendenz zur Bildung von Strukturen und zur Ordnung immer mehr Einfluß.
Einen Sonderfall im Rahmen chemischer Prozesse stellen Fließgleichgewichte dar. Ein Beispiel liefert die Kerzenflamme. Ist sie einmal entzündet, so läßt die erhöhte Temperatur das Wachs schmelzen, im Docht aufsteigen und schließlich verdampfen. Durch die Verbrennung entsteht Wärmeenergie, von der ein Teil durch die gleichzeitige Entropievermehrung aufgebraucht wird. Ein anderer Teil davon fließt als "Volumenarbeit" in die Ausdehnung der heißen Verbrennungsgase, so daß diese im Schwerefeld aufsteigen und Luft von unten und der Seite her in die Flamme hineinströmt. Im Luftraum eines Satelliten brennt keine Kerzenflamme, weil dort der die Gasbewegung richtende Einfluß der Schwerkraft fehlt. Auf die geschilderte Weise entsteht eine bleibende Gestalt, die Flamme, durch ein Fließgleichgewicht von Stoffbewegungen, Phasenumwandlungen, chemischen Vorgängen und Energieumsetzungen in einem Schwerefeld, wobei auch eine "Rückwirkung" in die Abfolge der Einzelschritte eingeführt ist, das Aufschmelzen des Wachses und dessen Verdampfung durch die Reaktionswärme. Da hierbei, insgesamt gesehen, freie Energie, darunter auch durch Entropiezunahme entstandene, zunächst strukturgebend auf die Flamme wirkt, dann aber in die Umgebung entweicht und sich dort verteilt, spricht man neuerdings von dissipativen Strukturen. Für Fließgleichgewichte und für die Entstehung und Erhaltung dissipativer Strukturen gilt das gleiche wie für sonstige chemische und physikalische Prozesse: Entscheidend ist nicht die Vermehrung der Entropie, sondern die Produktion von freier Energie, in deren Rahmen meistens eine Entropievermehrung mitwirkt, theoretisch aber auch eine Entropieverminderung stattfinden und durch entsprechend höhere Enthalpiewerte aufgewogen werden könnte.
Auch lebende Organismen sind in diesem Sinne dissipative Strukturen: Mit der Sonnenstrahlung (Pflanzen) bzw. mit der Nahrung (Tiere) nehmen sie potentielle freie Energie in sich auf — darin meist, wenn auch nicht notwendigerweise, Teilsysteme nicht maximalen Entropiegehalts. Die räumlich richtungsgebenden Bedingungen (bei der Flamme die Struktur der Kerze und die Schwerkraftrichtung) entstehen nach Mustern, wie sie an der Tertiärstrukturbildung der Proteine angedeutet wurden. Das Lebensgeschehen wird durch ein vielfältiges Fließgleichgewicht mit zahllosen Rückwirkungswegen aufrechterhalten. Im Tode und in dessen Konsequenz bricht dieses teils strukturelle, teils dynamische Gefüge zusammen, wodurch sich die Gesamtentropie der einstmals lebenden Substanz natürlich stark erhöht.
das Anwachsen der Entropie als
ein dem Leben zuwiderlaufendes
Prinzip ansehen
Die bis hierher besprochenen Vorgänge (vom sich kontrahierenden vorgespannten Gummiband über die Tertiärstrukturbildung von Peptidketten und die Kerzenflamme bis zum lebenden Organismus) spielten sich — physikochemisch gesehen — in offenen Systemen ab, d. h., der betrachtete Vorgang konnte Energie abgeben ("loswerden"; z. B. Volumenänderung bei der Eisbildung) und Wärme produzieren oder absorbieren, ohne von diesen seinen Produkten rückwirkend beeinflußt zu werden. Die begleitenden Entropieänderungen in der Umgebung wurden nicht in Betracht gezogen. Schließt man dagegen den Reaktionsraum (gedanklich oder — angenähert — physikalisch) gegen jeden Energie- oder Stoffaustausch mit seiner Außenwelt ab, betrachtet man also ein geschlossenes System, so gilt im Unterschied zum offenen System, in dem, wie eben beschrieben, die Entropie auch ohne äußeren Zwang, also spontan, abnehmen kann: Im geschlossenen System kann der Gesamtgehalt der Entropie stets nur — bis zu einem bestimmten Maximum — zunehmen, niemals abnehmen. Wenn sich also unterkühltes Wasser in einem abgeschlossenen System zu Eis verwandelt, so nimmt zwar im Eiskristall die Entropie ab (durch die Entstehung von Bindungen); die Temperatur aber steigt bis zum Gefrierpunkt an, und die darin steckende Entropiezunahme übersteigt den Entropieverlust durch die Eisbildung. Am Gefrierpunkt, d. h. bei einem bestimmten Mengenverhältnis von Wasser und Eis, erreicht die Entropie des geschlossenen Systems ihr Maximum. Dieses Verhältnis wird aufrechterhalten durch ein dynamisches Gleichgewicht: Am Gefrierpunkt (= Schmelzpunkt) werden pro Zeiteinheit im Durchschnitt ebensoviele Eiskristall-Bindungen an den Außenflächen des Eises durch die molekulare Wärmebewegung gesprengt, als sich neue Bindungen zwischen zuvor frei beweglichen Teilchen bilden. In einem derartigen geschlossenen System richtet sich das Mengenverhältnis zwischen Wasser und Eis nach der Menge der insgesamt im System enthaltenen Wärmeenergie.
Die Beispiele von der Eisbildung in unterkühltem Wasser und von der dynamischen Coexistenz von Wasser und Eis beim Gefrierpunkt in einem gedachten geschlossenen System lehren, daß der Vorgang der Maximierung der Entropie in einem geschlossenen System keineswegs ausschließt, daß sich dabei dasjenige entwickelt und dynamisch aufrechterhält, was wir als maximale kristalline, also molekulare Ordnung anzusprechen gelernt haben. Die der Entropie vielfach ohne Einschränkung zugesprochene Tendenz zur Zerstörung von Strukturen und zum Verwischen von Ordnung kann sich nur bei freier Beweglichkeit der molekularen Teilchen auswirken; sie stößt dort auf eine unüberwindliche Grenze, wo bei der gegebenen Temperatur die Tendenz zur Bildung od. Erhaltung der molekularen Bindungen überwiegt.
Diese Überlegung gilt auch für den vieldiskutierten Gedankenversuch, in dem man den gesamten Kosmos als thermodynamisch abgeschlossenes System betrachtet: Der vollständige Ausgleich aller Temperaturunterschiede, d. h. die Maximierung der Entropie im "Wärmetod" des Weltalls, könnte zwar bei hoher Temperatur auf eine strukturlose homogene Mischung aller beweglichen Teilchen hinauslaufen: Je niedriger jedoch die Endtemperatur ist, die sich schließlich einstellt, desto mehr Materie würde die feste Phase, also die Gestalt geformter Festkörper — vielleicht hochgeordneter Kristalle —, einnehmen. Im Endzustand des Temperaturausgleichs könnten also — solange wir über die Endtemperatur noch nichts wissen —, durchaus die Ordnungskräfte über die Entropie siegen.
Wo man in der Biologie Entropiewerte ausrechnet, geht es zumeist nur um deren Zunahme oder Abnahme im Verlauf einer Reaktion, also um Vergleichswerte (ΔS). Die Frage nach dem absoluten Entropiegehalt einer Menge von Materie wurde erst dadurch, und auch nur mittelbar, interessant, daß formale Beziehungen zum Begriff der Information hervortraten.
Beim Vergleich zwischen dem gedehnten und dem erschlafften Gummiband ging es um die relative Anzahl von Bewegungsmöglichkeiten von Molekülteilchen. Bei der Definition der Entropie ging man jedoch nicht den Weg einer Abzählung der elementaren Bewegungsmöglichkeiten, sondern man bezog sich auf die Anzahl der unterscheidbaren molekularen Zustände des betrachteten Gesamtsystems. Als absoluten Betrag des Entropiegehalts definierte man S dann nach Formel (2).
S = k · ln W
Dabei ist k eine durch die jeweilige Temperatur dividierte kleine Energiemenge (Boltzmannsche Konstante genannt), und das Symbol W steht für die Anzahl der Kombinationsmöglichkeiten der Teilcheneigenschaften. (Den Buchstaben W interpretiert man demgemäß am besten als Abkürzung von "Wandlungsgehalt" oder "Wechselmöglichkeiten" und ignoriert damit die ursprüngliche, aber irreführende Herleitung vom Wort "Wahrscheinlichkeit"; denn die Wahrscheinlichkeit entspricht niemals, außer im Sprachgebrauch der Thermodynamik, einer Anzahl von Möglichkeiten, sondern deren Relation zur Gesamtheit).
Lit.: Eigen, M., Winkler-Oswatitsch, R.: Das Spiel. München 1975. Flamm, D.: Der Entropiesatz und das Leben. Naturwiss. Rundschau 32, 225-239, 1979. Försterling, H.-D., Kuhn, H.: Kautschukelastizität. In: Physikalische Chemie in Experimenten. Weinheim 1971. Haken, H.: Synergetik. Heidelberg 31983. Lehninger, A. L.: Bioenergetik. Molekulare Grundlagen der biologischen Energieumwandlungen. Stuttgart/New York 31982. Netter, H.: Theoretische Biochemie. Physikalisch-chemische Grundlagen der Lebensvorgänge. Berlin/Göttingen/Heidelberg 1959. Weizsäcker, C. F. von: Evolution und Entropiewachstum. In: Scharf, J.-H.: Informatik. Leipzig 1972.
Information und Instruktion
An einem DNA-Abschnitt innerhalb der lebenden Zelle ist zweierlei von Interesse: Zum einen seine molekulare Struktur aus den fünf Atomarten C, H, O, N und P, zum anderen seine funktionelle Bedeutung als genetische Basis für die Synthese von Substanzen, sei es — bei der Zellteilung — neue DNA nach dem gleichen Muster, seien es — auf dem Wege über Transkription und Translation — bestimmte Proteine. Diese letzteren besitzen eine ganz andere chemische Struktur als die DNA; trotzdem sind sie in ihrer Aminosäuresequenz und damit in ihrer Funktion durch die Nucleotidsequenz des zugehörigen DNA-Abschnitts bestimmt.
Seit dem Entstehen der Informationstheorie drückt man diesen Zusammenhang gern so aus: Die DNA enthält die genetische Information für die Struktur der Proteine und damit auch — vermöge der spezifischen Wirkungen der Proteine — für den Bau, die Lebenserscheinungen des Organismus und für die genetisch bedingten Anteile seiner Verhaltenssteuerung. Die genetische Information prägt in diesen Hinsichten den Phänotyp.
von Informationszusammenhang
Außer in der Biologie spricht man auch in vielen anderen Lebensbereichen von "Information", und zwar dann, wenn die Bedingungen für einen Informationszusammenhang erfüllt sind: Bestimmte Gegebenheiten (= der Inhalt der Information) werden durch Symbole, Zeichen oder Signale ausgedrückt; die dadurch zustande gekommene Meldung oder Nachricht wird von einem Sender an einen Empfänger (Adressaten) übertragen; für diesen sind daraufhin nicht nur die materiellen oder energetischen Gegebenheiten der empfangenen Meldungen oder Nachrichten bedeutsam, sondern vor allem dasjenige, was die Meldungen bedeuten, d.h., was sie auf der Senderseite repräsentieren, denn das ist die Information, die sie dem Empfänger übermitteln. War der Empfänger bereits im voraus informiert, so enthielten die Meldungen für ihn keine Information mehr. Zu einem "Informationszusammenhang" gehören danach folgende Funktionsglieder:
-
der Inhalt der Information
-
dessen Übersetzung in Symbole, Zeichen oder Signale
-
deren Übertragung vom Sender zu einem noch nicht informierten Empfänger; und dort
-
die Ermittlung des Inhalts der empfangenen Signale oder das dementsprechende Reagieren des Empfängers.
Ein solcher Informationszusammenhang läßt sich in der Reiz-Reaktionsbeziehung eines Reflexes erkennen, beispielsweise dem schnellen Sich-Zusammenziehen eines Regenwurms nach der plötzlichen Berührung durch den Schnabel einer Amsel: Die darauf ansprechenden Hautrezeptoren erzeugen neurale Aktionspotentiale und werden so zum "Übersetzer" vom Reiz in die physiologische Erregung und zum "Sender". Die Nervenimpulse erreichen auf Nervenbahnen ("Übertragungsvorgang") die Längsmuskeln ("Empfänger"), die sich kontrahieren, wodurch der Wurm als ganzes Tier biologisch sinnvoll reagiert.
— Informationskapazität
Der einleitend skizzierte Informationszusammenhang zwischen der DNA und den phänotypischen Merkmalen enthält einen Funktionsschritt, der auf einen quantitativen Aspekt des Informationsbegriffs hinführt: Der genetische Code enthält 4 Symbolarten C, G, A und U. Dreierkombinationen (Tripletts) aus diesen determinieren jeweils die Addition eines Moleküls der 20 Arten von Aminosäuren an die entstehende Peptidkette. Wie eine elementare Kombinationsüberlegung zeigt, würden Zweierkombinationen (Dupletts) aus Vertretern der 4 Symbolarten nur 42 = 16 unterscheidbare "Codeworte" zulassen; dagegen lassen sich daraus 43 = 64 unterschiedliche Tripletts bilden. Für die 20 unterschiedlichen Aminosäuren würden also Dupletts nicht ausreichen, während Tripletts für mehr als das dreifache der 20 unterschiedlichen Aminosäuren hinreichend wären. Der DNA-Triplett-Code besitzt also die mehr als dreifache "Unterscheidungskapazität", als notwendig wäre, um den Einbau von 20 verfügbaren Aminosäuren zu determinieren. Als "Unterscheidungskapazität" versteht sich an dieser Stelle die Möglichkeit, verschiedene Informationen auszudrücken. Daher wird sie im folgenden, wie üblich, auch Informationskapazität genannt.
Als Maßzahl für die Informationskapazität I eines Ensembles von Symbolen (eines Codes) hat man nun nicht - wie es nach dem eben Gesagten denkbar gewesen wäre - die Anzahl W der verfügbaren unterschiedlichen Zeichen oder Zeichenkombinationen gewählt, sondern deren dualen Logarithmus (= Logarithmus zur Basis 2, geschrieben ld, zu errechnen aus dem Zehnerlogarithmus durch Multiplikation mit 3,32). Die Definition I = ld W war an sich willkürlich; aber sie bewährt sich: Die einfachste denkbare Entscheidung, nämlich diejenige zwischen zwei Alternativen, besitzt nach dieser Definition sinnvollerweise die "Informationskapazität" mit dem Zahlenwert 1 (weil ld 2 = 1 ist; denn der duale Logarithmus einer Zahl ist ja derjenige Betrag, mit dem man 2 potenzieren muß, um die genannte Zahl als Ergebnis zu erhalten; und 21 = 2). Dementsprechend heißt die Einheit der Informationskapazität 1 bit, abgekürzt aus binary digit (binäre Ziffer, Entscheidung zwischen den zwei Alternativen 0 und 1).
Auch die höheren Zahlenwerte des dualen Logarithmus lassen sich anschaulich interpretieren: Eine bestimmte Anzahl W von Wahlmöglichkeiten vorausgesetzt, entspricht ld W der Anzahl der "Entweder-Oder"-Entscheidungsschritte und damit zugleich der Anzahl von dualen Zeichen (0; 1), um jede einzelne der Möglichkeiten W1, W2...Wn mit einer nur ihr eigenen Zeichenkombination zu versehen.
und Informationsgehalt
Ein wichtiger Gedankenschritt führt von der Anzahl der Möglichkeiten W und deren Logarithmus I = ld W (= Informationskapazität einer Zeichenmenge W) zum Informationsgehalt eines einzelnen Zeichens Ix. Man verleiht diesem denselben Zahlenwert wie der Informationskapazität der gesamten Zeichenmenge und meint damit: Der Informationsgehalt eines einzelnen Zeichens bemißt sich danach, aus einer wie großen Menge von sonstigen Möglichkeiten (= aus einer wie großen Informationskapazität) er ausgewählt ist. (Diese Formulierung wird sogleich durch Anwendung des Wahrscheinlichkeitsbegriffs noch verfeinert werden.)
Ein Anwendungsbeispiel: Die Informationskapazität der DNA-Tripletts und damit der Informationsgehalt jedes einzelnen DNA-Tripletts ist ld 64 = 6 [bit] (weil Tripletts aus 4 Symbolarten 43 = 64 Kombinationen zulassen). Gäbe es statt der 4 Elemente C, G, A und U nur deren zwei, so würden erst Codonen aus jeweils sechs Zeichen dieselbe Unterscheidungskapazität von 64 Kombinationen gewährleisten (26 = 64). Nun ist die Anzahl der von der DNA determinierten Aminosäuren nicht 64, sondern 20, die Informationskapazität dieser Vielfalt also ld 20 = 4,32 [bit]. Beim Übergang vom DNA- bzw. RNA-Code auf die Aminosäurevielfalt bleiben also, formal gesehen, bei jeder Festlegung einer Aminosäure 1,68 bit je Triplett ungenutzt. (In dieser Berechnung sind unterschiedliche Häufigkeiten von Tripletts bzw. Aminosäuren unberücksichtigt geblieben.)
Vorausgesetzt, im Falle von W verfügbaren Zeichen kämen in einer Zeichenmenge die "Zeichenklassen" a1, a2... ax... aw gleich häufig vor, so wäre die Häufigkeit px, des Auftretens einer bestimmten Zeichenklasse ax, gleich dem Kehrwert von W, also px = 1/W. Damit wird nach der ursprünglichen Formel I = ld W der Informationsgehalt jedes einzelnen Zeichens aus der Klasse ax gleich ld(1/px). Eine einfache (hier nicht durchgeführte) Überlegung ergibt: Diese Formel für Ixbleibt unverändert, auch wenn die anderen Zeichen nicht die gleichen Häufigkeiten und damit andere Informationsgehalte haben.
Wahrscheinlichkeit in
das Informationskonzept
Damit ist der Begriff der Wahrscheinlichkeit in das Informationskonzept eingeführt, und zwar mit folgender Konsequenz: Mit abnehmendem px nimmt Ix zu (logarithmisch)! Darum deckt sich der Begriff "Informationsgehalt" hier in seiner Bedeutung qualitativ mit dem umgangssprachlichen Ausdruck "Seltenheitswert".
Wenn innerhalb einer Gesamtmenge von n Zeichen die verschiedenen Zeichenklassen a1... ax... aw unterschiedlich häufig vorkommen, stellt sich die Frage nach dem durchschnittlichen Informationsgehalt H des einzelnen Zeichens. Dieser Durchschnittswert stellt sich — auf den ersten Blick überraschenderweise — als eine Summe dar, nämlich H = ∑x=1..W px ld(1/px)
In Wirklichkeit verbirgt sich hinter dieser Formel durchaus die Operation der Durchschnittsbildung "Summe aller Einzelwerte, geteilt durch n"; nur ist die Division durch n bereits jedesmal in die Ausrechnung der relativen Beiträge der Zeichenklassen hineingezogen: Man multipliziert den Informationsbeitrag jedes Einzelzeichens (ld 1/px) — anstatt mit seiner Anzahl Ax — mit px = Ax/n, also mit seiner Häufigkeit (Wahrscheinlichkeit). Dadurch wird jeder Summand durch n dividiert.
von Informationsgehalt
Bei näherer Betrachtung der Formel I = ld W und ihrer Verallgemeinerung für den Durchschnittswert H fällt auf: Nichts deutet in ihnen auf die eingangs zusammengestellten Bestandsstücke eines Informationszusammenhanges wie Inhalt, Sender, Übertragungsstrecke, Empfänger. In der Tat sind die Ausdrücke ld W und ∑px ld(1/px) rein statist. Natur und lassen sich daher nicht nur (wie soeben getan) auf Zeichenvorräte im Rahmen von Informationszusammenhängen, sondern auf beliebige Mengen aus unterschiedlichen Elementen anwenden. An die Stelle von "Informationskapazität" tritt dann der allgemeine Ausdruck "Diversität", d. h. Vielfältigkeit oder innere Vielfalt. Ein biologischer Anwendungsbereich hierfür ist die Vielfalt einer Biozönose hinsichtlich der Anzahl und Häufigkeit der dort vorkommenden Arten. (Den einstmals auch hier verwendeten Ausdruck "Informationsgehalt" hat man zu Recht wieder fallen gelassen.) Sucht man die Diversität einer bestimmten Menge, so muß man den für das Element berechneten Durchschnittswert H mit der Anzahl n der Elemente multiplizieren.
Ursprünglich hat C. E. Shannon den durchschnittlichen Informationsgehalt H auch als "Entropie" bezeichnet. Damit hat er einen Ausdruck der Thermodynamik angewendet, der sich auch dort auf eine Vielfalt W, nämlich die von physikalischen Mikrozuständen, bezieht:
S = k · log W
In Worten: Die Entropie Si entspricht dem Boltzmannschen temperaturbezogenen Energiebetrag k, multipliziert mit dem Logarithmus der Wandlungsmöglichkeiten zwischen den Teilchenkombinationen (→Entropie). Den Ausdruck "Entropie" auch als Informationsmaß zu verwenden hat allerdings mehrere Nachteile:
1) Er entspricht ihm nicht hinsichtlich seines Betrages (Zehner- statt Zweierlogarithmus sowie Multiplikation mit der Boltzmann-Konstanten),
2) hinsichtlich seiner Dimension ([Energie dividiert durch Temperatur] anstatt dimensionslos) und
3) der Bedeutung des Ausdrucks "Wahrscheinlichkeit" (Anzahl der Kombinationsmöglichkeiten statt Anteil am Gesamten).
Trotzdem ist die physikalische Entropie so sehr zum Leitbild dessen geworden, was man gedanklich mit dem Begriff "Information" verknüpft, daß man für das ursprüngliche, umgangssprachliche Informationskonzept, nämlich die einzelne inhaltlich festgelegte Information, nach neuen Ausdrücken suchte: So bezeichnete E. Schrödinger das aus einem Vorrat von Möglichkeiten Ausgewählte oder Festgelegte als Negentropie (in der Tat vermindert jede Festlegung die Entropie des übriggebliebenen Teilsystems), R. Riedl als Determinationsgehalt. Die Entropie (Informationskapazität) und die konkrete Information (im Sinne einer bestimmten Nachricht) stehen zueinander in einem ähnlichen Verhältnis wie das Fassungsvermögen eines leeren und der Inhalt eines gefüllten Gefäßes: Beides wird in Volumeneinheiten gemessen; das Fassungsvermögen gibt an, welche Mengen an konkreter Füllung möglich sind. Dementsprechend stehen Informationskapazitiät (Entropie) und konkrete Meldung zueinander im logischen Verhältnis von potentieller und aktueller (konkretisierter) Information. Bei bloßer Kenntnis der Kombinationsmöglichkeiten (Diversität) der Elemente bzw. Symbole ist das Wissen um die aktuelle, verwirklichte Kombination noch gleich Null; ist dieses Wissen jedoch gewonnen worden, so ist die Anzahl der Möglichkeiten auf 1 und damit die Diversität (Entropie) auf Null heruntergegangen (ld 1 = 0).
Für Informationszusammenhänge, wie sie in der Biologie bedeutsam sind, eignet sich unter bestimmten Voraussetzungen als Stellvertreter für den Begriff der aktuellen, konkreten Information der Begriff der Instruktion (M. Eigen): Man spricht von Instruktion, wenn Information von Sendern auf Empfänger übertragen und dann vom Empfangsort aus, wo sie gegebenenfalls auch gespeichert wird und "abrufbar" bleibt, weiter wirksam werden kann. Ein Beispiel hierfür wäre die "genetische Information für ein bestimmtes Merkmal", die man danach zur Unterscheidung von der in der DNA steckenden Diversitäts auch genetische Instruktion nennen könnte. Das Verhältnis zwischen den Begriffen "Information" und "Instruktion" wird in der Abbildung graphisch dargestellt. Eine vermittelnde Rolle spielt dort der Begriff der "Transinformation':
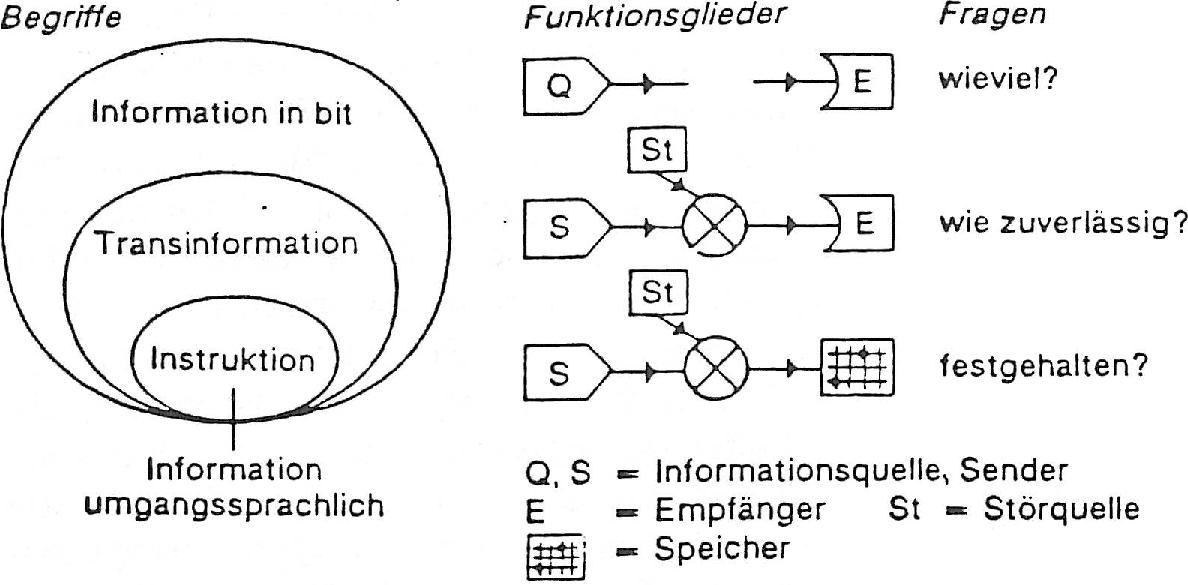
Varianten des Informationsbegriffs
Transinformation
Als Transinformation Txy in einem Informationszusammenhang bezeichnet man denjenigen Anteil der empfangenen Gesamtinformation (y), der den abgesandten Signalen (x) entspricht. Er ist gleich der formalen Gesamtinformation Ix abzüglich eines mathematischen Ausdrucks für die Wahrscheinlichkeit der richtigen Übertragung (Rückschlußwahrscheinlichkeit px←y. Und zwar gilt (für ein Zeichen):
Txy = Ix - ld(1/px←y) = ld(1/px) - ld(1/px←y) = ld(px←y/px) [bit]
Im Begriff der Transinformation ist hiernach im Unterschied zum Begriff der Diversität ein Informationszusammenhang vorausgesetzt, in dem die Beziehung zwischen individuellen Symbolkombinationen am Sender und am Empfänger die entscheidende Rolle spielt. Dies entspricht weitgehend dem umgangssprachlichen Konzept der Glaubwürdigkeit einer Übertragenen Information.
Information in
der Biologie
Welche Rolle spielt der Begriff der Information in der Biologie? Mit seiner Hilfe erfaßt man das Gleichbleibende bei der Übertragung steuernder Signale vom Sender zum Empfänger, z. B. beim Vorgang der Transkription und Translation (von der DNA zu den Proteinen) und allgemein im Zusammenhang zwischen lebenden Individuen und ihren Nachkommen: Was übertragen und vererbt wird, ist nichts Materielles — kein Atom eines Nachkommen braucht aus einem seiner Vorfahren zu stammen und nichts Energetisches, obwohl auch Energie für den Fortpflanzungsvorgang unentbehrlich ist. "Gedanken der Schöpfung" nannte C. E. von Baer bildlich das immaterielle Prinzip, das die Übereinstimmung zwischen Vorfahren und Nachkommen über alle Stufen des dramatischen Gestaltwandels hinweg erhält, der beim Säugetier über das Ei von beispielsweise 1/10 mm Durchmesser führt, das v. Baer 1826 entdeckte. Heute heißt dieses immaterielle erhaltende Prinzip "Information" (im Sinne von "Instruktion").
Auch N. Wiener, der Begründer der Kybernetik, betonte dessen immaterielle Natur: "Information is information, not matter or energy". Allerdings bedarf Information, um sich auszuprägen und materielles Geschehen zu steuern, des Trägers in Form von Materie oder von Energie.
Weitere biologische Informationsträger außer der DNA, in deren Namen sich ihre steuernde Funktion ausdrückt, sind messenger-RNA, second messenger, Überträgerstoff ("Transmitter"), Hormon (= Botenstoff) und Induktionsstoff.
Lit.: Baer, C. E. v.: Welche Auffassung der lebenden Natur ist die richtige? (1837). Neudruck u.a. in Loerke, O. und Suhrkamp, P. (Hg.): Deutscher Geist. Ein Lesebuch aus zwei Jahrhunderten. Berlin und Frankfurt 1959. Flechtner, H.-J.: Grundbegriffe der Kybernetik. Stuttgart 1969. Hassenstein, B.: Biologische Kybernetik — eine elementare Einführung. Heidelberg 51977. Riedl, R.: Die Strategie der Genesis. München 1976. Shannon, C. E. und Weaver, W.:The mathematical Theory of Communication. The University of Illinois Press 1949. Weizsäcker, C. F. v.: Evolution und Entropiewachstum. In: Scharf, J.-H. (Hg.): Informatik, Leipzig 1972. Wiener, N.: Kybernetik. Düsseldorf 1963.
Injunktion
Injunktion w [v. lat. iniungere anfügen, zufügen], sachbezogener (= deskriptiver) Begriff, der in seiner Form die Beschaffenheit seines Bezeichnungsfeldes repräsentiert ("abbildet") u. daher (1) fließende Grenzen hat, falls die begriffsbestimmenden Merkmale gg. die Grenzen des Bezeichnungsfeldes kontinuierlich anstatt sprunghaft abnehmen, und (2) durch mehrere unabhängig voneinander variierende Merkmale bestimmt sein kann. Im Ggs. dazu wird für eine Definition gefordert, daß sie, wie der Name sagt, (1) scharf begrenzt und (2) durch ein einziges "definierendes Merkmal" bestimmt ist (vgl. Spaltentext).
Injunktion [Spaltentext]
Zahlr. Begriffe der Biol. u. der übrigen Wiss. sind, genau genommen, I.en, z. B. Pflanze u. Tier, Individuum, gesund u. krank (bzw. physiologisch und pathologisch), stenök u. euryök, Haustier u. Wildtier, Art (Spezies), Leben, aber auch Oligopeptid/Polypeptid/Protein. Solche Begriffe "scharf definieren" zu wollen, kann zu willkürl., nicht durch die Sache begründeten u. in der Folge strittigen Begriffsbestimmungen führen, denen dann der wiss. Sprachgebrauch nicht folgt. Eher empfiehlt es sich, I.en als solche bestehen zu lassen u. anzuerkennen, daß sie sich in der überkommenen Form am besten zur Verständigung eignen. Verwandt sind die Begriffe der →Typologie u. des →Typus.
Regelung im Organismus
Regelung, selbsttätige R., Regulierung (→Regulation) durch negative Rückkopplung (→Feedback); Wirkungsprinzip in Organismen u. in der Technik, demzufolge etwaige Abweichungen v. einem gegebenen Zustand od. Funktionszustand selbsttätig — über einen gesonderten Funktionsweg — Wirkungen hervorrufen, die den Abweichungen entgegengesetzt sind u. sie im Idealfall kompensieren. Es handelt sich also um einen Kreisprozeß (Abweichung → gesonderter Funktionsweg → Wirkung gg. die Abweichung ...). Das zugrundeliegende funktionelle System, der Regelkreis, besteht im einfachsten Fall aus 3 Gliedern: 1) einem Registrier- od. Meßglied für die Regelabweichungen (Fühler), das zugleich entsprechende Signale erzeugt, also ein "Transducer" ist; 2) einer Signalübertragungund 3) einem v. den ankommenden Signalen gesteuerten Wirkungsträger (Stellglied), der Gegenwirkungen gg. die auslösenden Abweichungen ausüben kann. Der (Funktions-)Zustand, dessen jeweiliger Meßwert (Istwert) vom Fühler registriert u. dann vom Stellglied beeinflußt wird, verdiente genau genommen den Namen "geregelte Größe', wird aber Regelgröße genannt. Außeneinflüsse auf die Regelgröße, die deren Abweichungen bewirken, heißen Störgröße. Falls das Stellglied die Regelgröße nicht unmittelbar, sondern über ein od. mehrere funktionelle Zwischenglieder beeinflußt, so bezeichnet man die Verbindung vom Ort der Stellgliedwirkung zum Meßort des Fühlers recht. unpräzise als "Regelstrecke". Das Steuerkommando für das Stellglied heißt Stellgröße. Als Sollwert eines Regelkreises bezeichnet man sinngemäß denjenigen (Funktions-)Zustand, bei dem die Stellgliedtätigkeit ihr Ziel, etwaige Abweichungen zu kompensieren, erreicht hat. Das ist der Fall, wenn der Fühler keine Abweichung mehr registriert, formal also die Meldung "null" absendet. Beim Regelkreis ist also im einfachsten Fall der Sollwert ident. mit dem Nullwert der Meßskala des Fühlers. — Das ändert sich, sobald zu den 3 genannten Funktionsgliedern (Fühler, Signalübertragung, Stellglied) ein viertes dazutritt, ein Sollwertgeber. Er läßt Signale, Führungsgröße genannt, in die Signalübertragung zw. Fühler u. Stellglied einfließen (im einfachsten Fall additiv). Hierdurch wird (anstelle des Nullwerts der Fühler-Meßskala) die Führungsgröße zum Sollwert des Regelkreises. Um dies anschaulich zu erfassen, setze man in ein Regelschema theoretisch Zahlenwerte ein (z.B. Führungsgröße = 2) und ermittle durch Rechnung, wie sich das System daraufhin verhält. Der Funktionswert "Regelabweichung" entsteht jetzt durch die Verrechnung der Führungsgröße mit dem Istwert der Regelgröße, im einfachsten Fall durch Subtraktion. Man spricht auch von einem "Vergleichen von Istwert und Sollwert", meint damit aber nichts anderes als die Differenzbildung. — Die bis hierher beschriebene Art der R. trägt den Namen Proportionalregelung (P-Regelung), weil zeitlich variierende Regelabweichungen Stellgrößen hervorrufen, die ihnen proportional sind.
Bei einer zeitlich gleichbleibenden positiven od. negativen Störgröße erreicht ein P-Regler niemals seinen Sollwert: Der Beginn der Störung verursacht zunächst eine vom Fühler registrierte Regelabweichung; hierauf folgt die entgegengerichtete Tätigkeit des Stellglieds. Würde daraufhin der Sollwert wieder voll erreicht werden, so müßte das zweierlei Folgen haben: Erstens würde die Tätigkeit des Stellglieds daraufhin aufhören (sie wird ja nur durch Abweichungen des Istwerts vom Sollwert veranlaßt); zweitens würde die weiter wirkende Störgröße nun natürl. eine erneute Abweichung hervorrufen. Das System käme also beim Erreichen seines Sollwerts gar nicht zur Ruhe. Ein Ruhezustand stellt sich jedoch bei einer bestimmten bleibenden Abweichung des Istwerts vom Sollwert ein, und zwar wenn die entspr. Stellgliedfunktion dem konstanten Störgrößeneinfluß gerade die Waage hält. Die Abweichung vom Sollwert, bei der dies geschieht, trägt den Namen "Proportionalabweichung" (weil sie ein Charakteristikum der "Proportional-R." ist).
— Ein zum Proportionalregler hinzutretendes weiteres (in unserer Zählung fünftes) Funktionsglied verleiht der R. die Fähigkeit, auch bei anhaltender Störgröße den Sollwert zu erreichen: Dieses Funktionsglied transformiert das Signal "Regelabweichung" in das Kommando "Verstärken der Stellgliedtätigkeit in der Gegenrichtung zur Regelabweichung". Der Betrag der Regelabweichung bestimmt jetzt nicht mehr, wie beim P-Regler, die Wirkungsstärke des Stellglieds, sondern wie schnell sich diese ändern soll. Daher wächst hier die Stellgliedtätigkeit so lange weiter an, wie Überhaupt noch eine Regelabweichung gemeldet wird. Ist dadurch schließlich die Regelabweichung voll kompensiert, also gleich Null, so entspricht das dem Kommando: "Stellgliedtätigkeit nicht mehr ändern", d. h. sie weiterhin so stark weiterlaufen lassen, wie es gerade geschieht. Damit erreicht der Regelprozeß trotz anhaltender Störgröße tatsächl. seinen Sollwert und hält ihn ein. Ein Funktionsglied, das eingehende Signale als Änderungskommandos für ihren Signalausstrom verwendet, leistet — mathematisch gesehen — eine zeitl. Integration; darum heißt die in diesem Absatz beschriebene Form der R. Integralregelung (I-Regelung).
— Außer reinen P- und I-Reglern gibt es auch Mischformen, bei denen sich das Stellkommando additiv aus proportionalen u. zeitlich integrierten Anteilen zusammensetzt (PI-Regler). Schließlich kann auch der zeitliche Differentialquotient der Regelabweichung separat gewonnen und zusätzl. in das Stellkommando eingespeist werden ("Differentialanteil", z. B. im PD-Regler). Dann reagiert der Regelkreis um so stärker, je schneller sich eine Regelabweichung ändert.
— Regelkreise haben eine Systemeigenschaft, die man ihnen bei der bloßen Betrachtung ihrer Funktionsstruktur nicht ansieht: Falls die durch Regelabweichungen ausgelösten Gegenreaktionen über ihr Ziel, den Sollwert, zu weit hinausschießen, entstehen Schwingungen mit anwachsender Schwingungsweite, bis entweder das ganze System zerstört wird ("Regelkatastrophe") od. bis die Schwingungen durch Energiemangel begrenzt werden. Instabil wird ein Regelkreis beim Überschreiten einer Kennzahl, die sich aus seiner inneren Verstärkung (Verhältnis zw. Regelabweichung u. Stellgliedwirkung) u. seiner Totzeit (Zeitabstand zw. beginnender Regelabweichung u. beginnender Stellgliedfunktion) errechnet: Je größer die Verstärkung u. je länger die Totzeit, desto eher wird ein Regelkreis instabil. — Bei Reglern mit Sollwertgebern ist die Regelabweichung gleich der Differenz zw. Führungsgröße u. Fühlermeldung. Ändert sie sich häufig, so kann dies mehr auf variierende Störgrößen od. aber auch vornehmlich auf Variationen der Führungsgröße zurückgehen. Im ersten Fall korrigiert die R. im wesentl. die Folgen v. Störungen ("Halteregler"), im zweiten läßt sie vorwiegend die Regelgröße den Sollwertänderungen folgen ("Folgeregler", "Servomechanismus"). In der Struktur stimmen beide Reglerarten überein. Die unterschiedl. Benennung spiegelt nur wider, wozu sie überwiegend gebraucht werden. Folgeregelungen dienen vorwiegend der Einspeisung der notwend. Energie für die Änderung u. Durchführung v. Steuerprozessen (Servolenkung). — Betrachtet man einen Regelkreis als Funktionssystem, so besteht er aus einer geschlossenen Kette v. Einzelfunktionen. Will man die Dynamik eines Regelsystems untersuchen, so öffnet man dazu, falls möglich, die geschlossene Kette ("Aufschneiden des Regelkreises"), v. a. indem man die Wirkung der Stellgröße auf die Regelgröße unterbricht (ein Beispiel s.u.). Man hat dann mathematisch einfachere, besser analysierbare Verhältnisse vor sich. In einem aufgeschnittenen Regelkreis spielt sich keine Regelung mehr ab, sondern nur noch →Steuerung.
Die biologische R. ist nur eines der im Organismenreich verwirklichten Funktionsprinzipien, um Abweichungen v. einem Sollzustand durch Gegenwirkungen zu verringern od. zu kompensieren (andere Prinzipien der →Homöostase sind mechan. Gleichgewichte, z. B. beim auf dem Wasser schwimmenden Schwan; Überlaufsysteme, z. B. zur Höchstbegrenzung des Blutzuckerspiegels; chem. Pufferung z. B. im Blut; "feed forward"-Systeme, z. B. bei der Pupillenreaktion mancher niederer Wirbeltiere). Augenfällige biologische R.en sind die Pupillenreaktion, die R. des Blutdrucks, der Körper-Temp., des Blutzuckerspiegels, des Blut-Sauerstoffgehalts, des pH-Wertes im Dünndarm u. der Nahrungsaufnahme sowie der Muskel-Eigenreflex.
— Die →Pupillenreaktion — die Sehzellen wirken als Fühler, die Irismuskeln als Stellglied — kompensiert jeweils nur einen Teil der ein Auge treffenden Lichtflußänderungen (Störgrößen) u. erweist sich dadurch als P-Regler. Reizung des Auges mit sinusförmig variierendem Licht u. gleichzeitige Messung der Pupillenweite offenbaren einen zusätzlichen D-Anteil der R. Das "Aufschneiden des Regelkreises" gelingt hier bes. einfach dadurch, daß man das Reizlicht eng bündelt u. nur durch das Zentrum der Pupille eintreten läßt; die Pupillenreaktion kann dann den Lichtfluß (= Regelgröße) nicht beeinflussen.
— Die R. des →Blutdrucks ist dagegen sinnvollerweise ein I-Regler: Auch bei massivem Blutverlust (Störgröße) durch eine Wunde bleibt der Blutdruck so gut wie konstant (zuletzt im Bereich des Herzens u. Gehirns). Die Fühler sind Wandspannungs-Sinnesorgane im →Carotissinus der Halsschlagader, einer Ader-Ausbuchtung; Stellglied ist die Wandmuskulatur aller Blutgefäße. — Im Dienste der R. der →Körpertemperatur (→ Temperaturregulation) sind zwei ganz verschiedene Stellglieder tätig, eines für aktive Erwärmung (isometrische →Muskelkontraktionen, die sich im →Kältezittern äußern), eines für aktive Abkühlung (→ Schwitzen od. →Hecheln). →Fieber ist Ausdruck einer Änderung des Sollwerts. 38°C Bluttemperatur veranlaßt einen Gesunden zum Kühlen durch Schwitzen, einen für 39°C disponierten Fiebernden zu Schüttelfrost (= Extremform des Kältezitterns). Fiebersenkende Medikamente ändern den Sollwert des Regelkreises, ein kalter Wadenwickel ist regeltheoretisch eine Störgröße.
— Bei der R. des →Blutzucker-Spiegels findet sich eine Vernetzung mehrerer Regelkreise. Die Signalübertragung erfolgt nicht durch Nerven, sondern durch →Hormone, und zwar verschiedene für den Anstieg (u.a. →Glucagon) u. die Abnahme (u. a. →Insulin). — Bei der R. des →pH-Werts im →Dünndarm wird die Störgröße, die den Regelprozeß auslöst, im Unterschied zu den meisten anderen Beispielen regelmäßig vom Organismus selbst produziert: Saurer Speisebrei (→Magensäure!) tritt durch den Magenpförtner in den Dünndarm ein. Dort befindl. →Chemorezeptoren ("Fühler") registrieren dies als Regelabweichung vom schwach alkalischen Sollwert u. regen auf hormonellem Wege die Produktion alkalischen Darmsafts an; Stellglieder sind die Bauchspeicheldrüse (→Pankreas) u. Drüsenzellen der Darmwand. — Bei der R. des Blut-Sauerstoffgehalts finden sich zwei Besonderheiten: Bei Atemnot (negative Regelabweichung) ist die Stellgliedfunktion ein Verhalten (Atmen); und die Regelgröße wird kaum selbst registriert, sondern eine im Normalfall funktionell mit ihr reziprok verkoppelte Größe, der CO2-Gehalt des Blutes (→Blutgase). Auf experimentell erzeugten 02-Mangel ohne CO2-Anstieg reagiert das Atemzentrum so gut wie gar nicht (→Atmungsregulation). — Für die R. der →Nahrungsaufnahme ist die Regelgröße der Versorgungszustand der Gewebe mit Nährstoffen (→Hunger). Stellgliedfunktion ist wiederum ein Verhalten, die Nahrungsaufnahme. Die Regelstrecke führt v. der Nahrungsaufnahme über die Magenfüllung, die Verdauung, die Resorption der Nährstoffe u. deren Verteilung auf dem Blutweg bis zur Aufnahme der Nährstoffe in die Zellen. All dies zus. dauert bei Pflanzen- u. Fleischfressern i. d. R. so lange, daß die Meldung über die erfolgte Kompensation der Regelabweichung zu spät käme, um — nach bereits hinreichender Nahrungsaufnahme — der Stellgliedtätigkeit das erforderl. Stoppsignal zu geben. Dies besorgt ein zusätzl. Signalweg am Beginn der Regelstrecke, der die ausreichende Nahrungsaufnahme (z. B. Hund) od. die Magenfüllung (z. B. Fliege Calliphora) registriert u. sie als "Vorwegmeldung" über die zu erwartende Kompensation des Defizits u. zugleich als Stoppsignal an die zentralnervöse Kommandoinstanz für die Nahrungsaufnahme überträgt. Der Haupt-Regelkreis ist also durch einen "inneren Regelkreis" ergänzt. — Der Reflexbogen (→Reflex) des Muskel-→Eigenreflexes kann als Folgeregelkreis wirken: Folgt einer Muskelanspannung nicht die Verkürzung, weil ein mechan. Hindernis entgegensteht, so entspr. die daraufhin erzeugte Muskelspindel-→Afferenz (→Muskelspindeln) im Prinzip der Differenz zw. der angestrebten u. der noch bestehenden Muskellänge (= Regelabweichung), damit aber auch (wiederum im Prinzip) der erforderlichen zusätzl. Muskelanspannung, um das mechan. Hindernis zu überwinden. In der Tat übernimmt die Muskelspindel-Afferenz nach ihrer Umschaltung im Rückenmark die entspr. Funktion, indem sie im absteigenden Schenkel des Reflexbogens als →Efferenz übertragen wird u. dann als Stellgröße zusätzl. Muskelkraftentfaltung auslöst.
Schaubilder
Der pflanzliche, tierische und menschliche Organismus weist eine Vielzahl von Regelsystemen auf, mit denen verschiedene physiologische Größen gemessen und auf bestimmte, für das Leben des Organismus günstige Werte eingestellt werden. Regelkreise bestimmen z. B. den Öffnungsgrad von Spaltöffnungen, den Blutdruck und die Muskelanspannung.
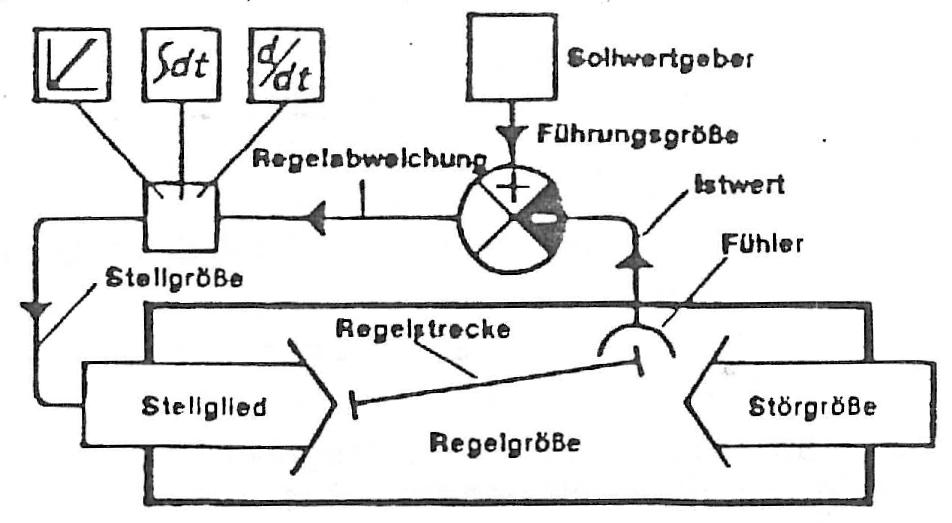
Funktionsschaltbild eines biologischen Regelkreises
Das leer gehaltene Kästchen, das die Transformation von der Regelabweichung in die Stellgröße symbolisiert, kann durch die 3 darübergezeichneten Elemente (einzeln oder 2 bzw. 3 in Parallelschaltung) verwirklicht sein. Daraus resultieren dann Proportional-, Integral- oder Differentialregelung bzw. Kombinationen davon.
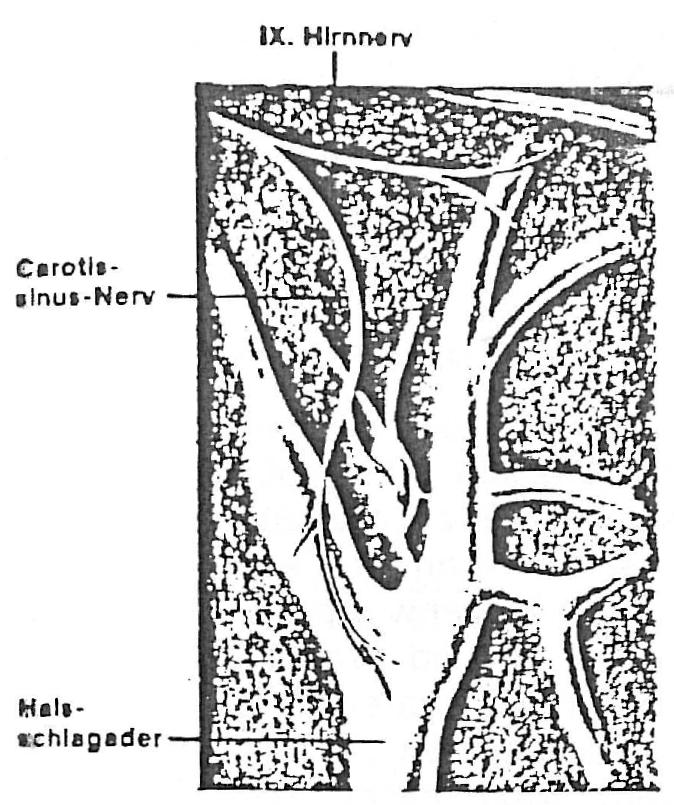
Blutdruckregelung.
Der Blutdruck wird laufend durch Spannungsrezeptoren (Fühler), die in die Wand der Halsschlagader (Abb. oben) eingebettet sind, gemessen. Die Meldungen (Istwert) werden im Gehirn verrechnet. Dort entstehen Kommandos (Stellgröße), welche die Spannung der Gefäßwandmuskeln (Stellglied) im ganzen Körper und damit den Blutdruck (Regelgröße) bestimmen.
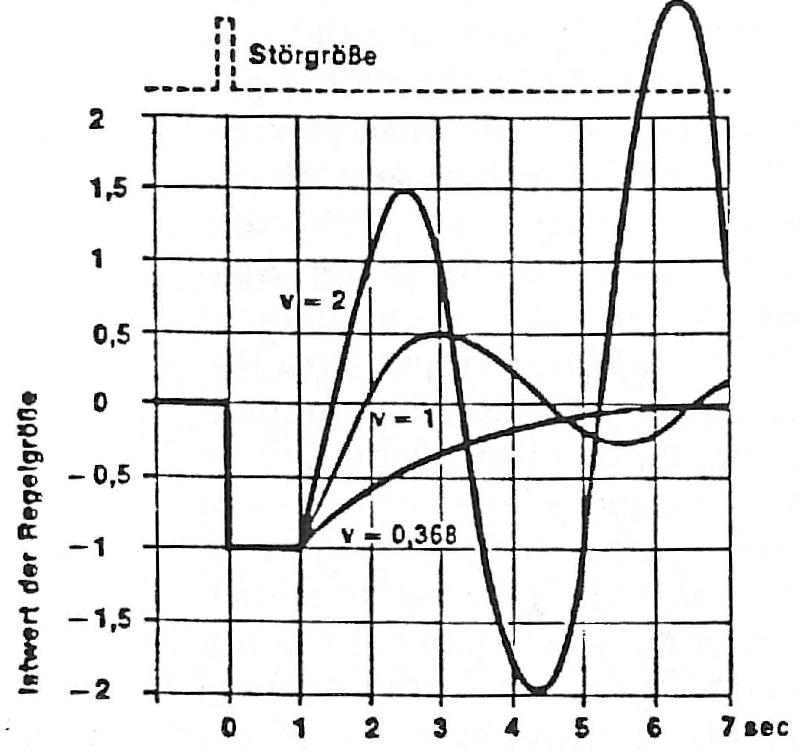
Das Diagramm demonstriert die Bedeutung der Verstärkung (v) für die Stabilität eines Regelkreises mit der Totzeit von 1 Sekunde. Zum Zeitpunkt 0 hat eine Störgröße die Regelgröße vom Sollwert 0 auf den Istwert -1 verstellt. Die Kurven zeigen für 3 verschiedene Verstärkungen, in welcher Zeit und mit welchem Verlauf die Regelgröße den Sollwert wieder (bzw. bei v=2 nicht) erreicht.
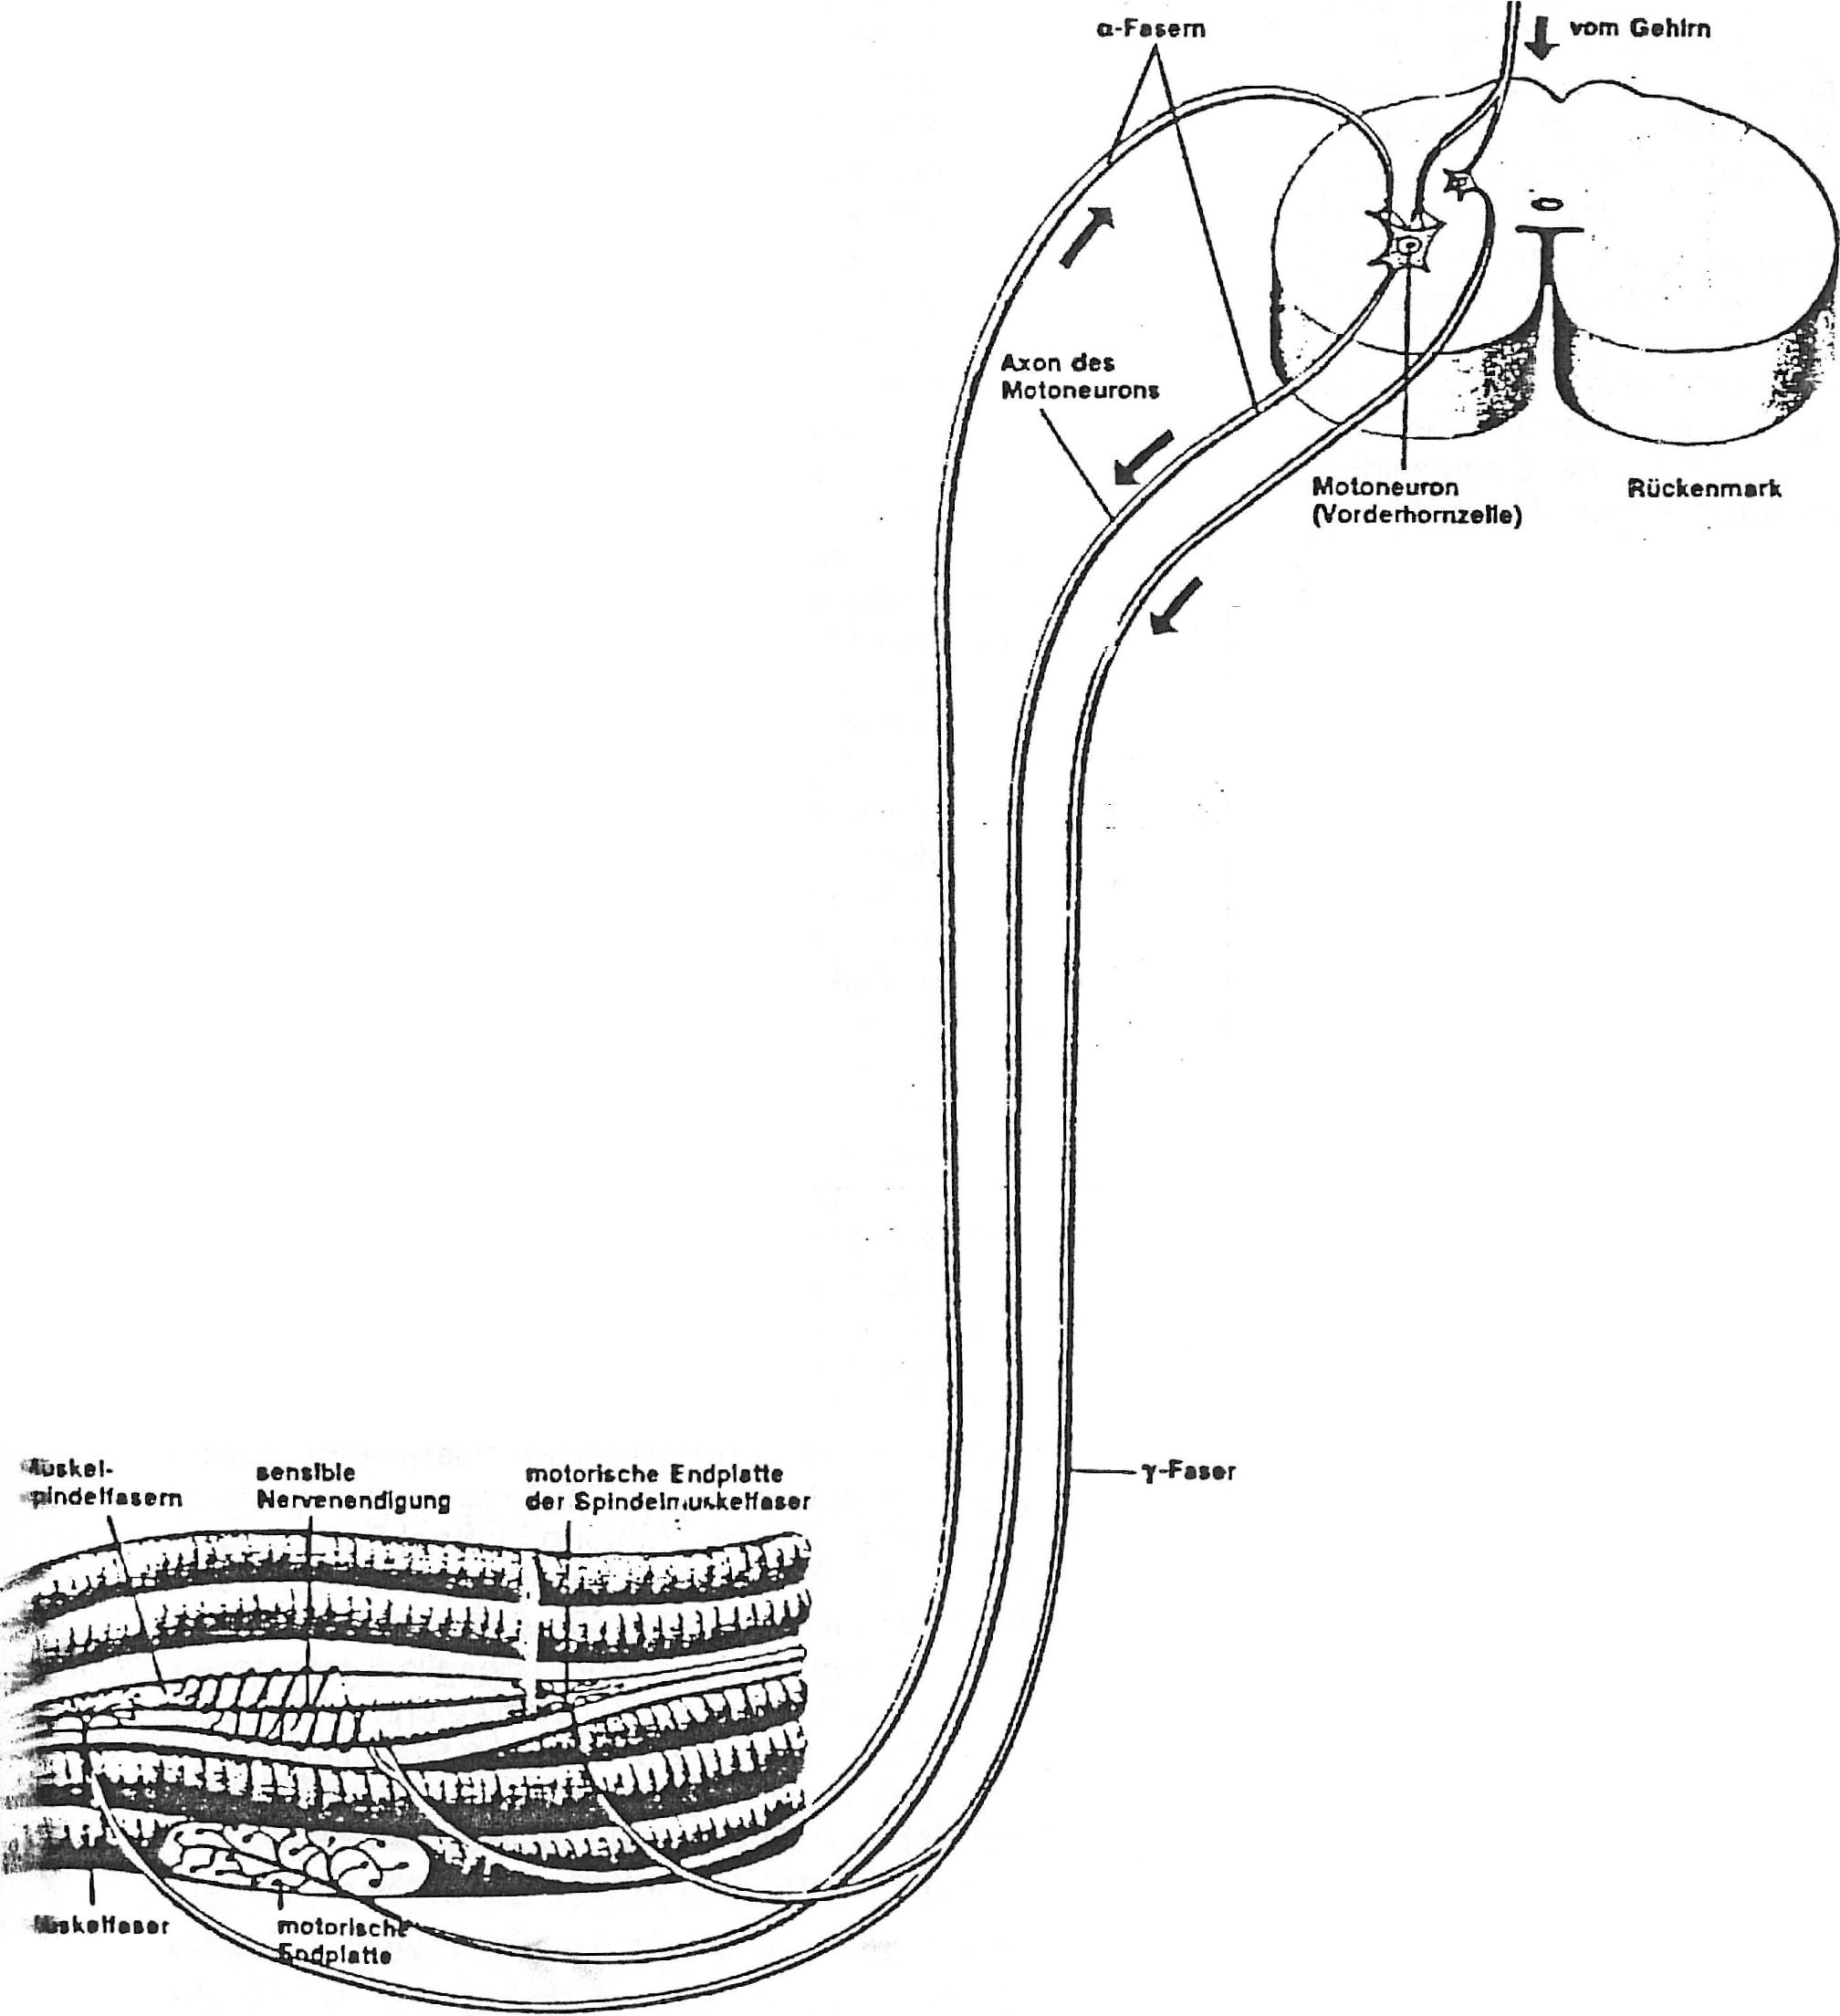
[Die] Abb. gibt einen kleinen Ausschnitt aus einem Muskel wieder. Der Oberschenkelmuskel des Menschen enthält ca. 500 - 1000 Muskelspindeln. Die Länge einer Muskelspindel liegt in der Arbeitsmuskulatur des Menschen zwischen 1 und 3 mm. Die Muskelspindeln sind durch ihre bindegewebsartige Hülle (in der Abb. grau) fest mit den umgebenden Muskelfasern verbunden, so daß sie sich mit diesen passiv mitverkürzen und mitverlängern.
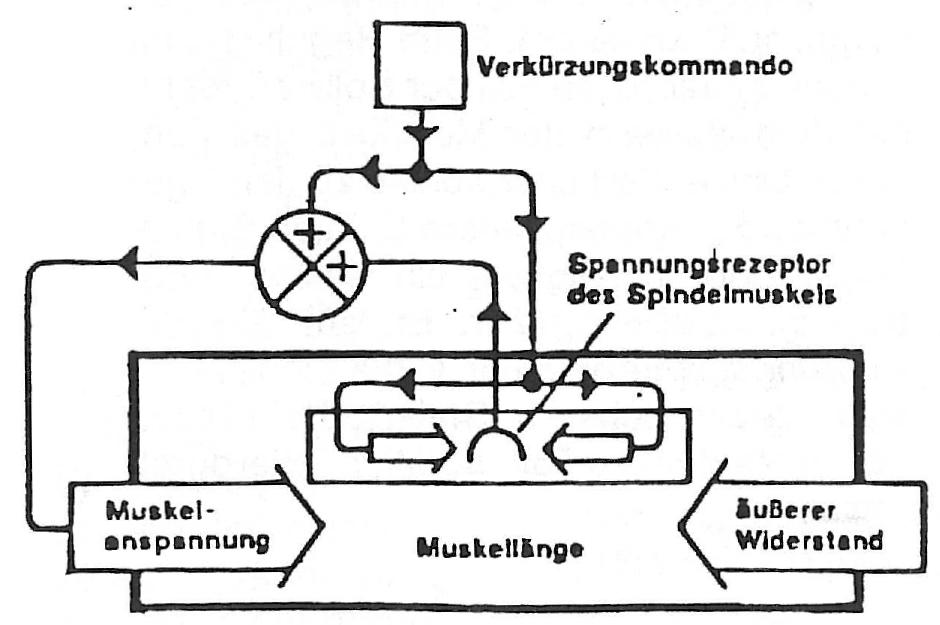
Muskelspindelregelkreis als Servomechanismus
Verkürzungskommandos für die Muskeln gelangen sowohl über α-Fasern zu den Muskelfasern als auch über die
dünneren, langsamer leitenden γ-Fasern zu den in die Muskeln eingebetteten Muskelspindeln, wo sie die
intrafusalen Muskelfasern zur Kontraktion veranlassen.
Das [untenstehende] Funktionsschaltbild enthält alle signalübertragenden und -verarbeitenden Funktionsglieder
der anatomischen Darstellung. Die für jeden Regelkreis erforderliche Vorzeichenumkehr im Feed-back-Kreis vollzieht
sich hier nicht wie sonst durch Subtraktion des Istwerts von der Führungsgröße (wie im oberen allgemeinen
Funktionsschaltbild), sondern dadurch, daß die Zunahme der Kontraktion (positive Betragsänderung) zu einer
Verkürzung des Muskels (negative Längenänderung) führt, daß also zwischen Stellgröße und
Regelgröße eine (im Funktionsschaltbild nicht symbolisierte) Vorzeichenumkehr erfolgt.
Steuerung
Steuerung, quantitative Beeinflussung der Intensität od. Richtung v. Vorgängen. Beispiele aus der Biologie: Auslösen der Kontraktion (→Muskelkontraktion) u. Bestimmen des Kontraktionszustands v. Muskeln (→Muskelspindeln) durch die Frequenz der eintreffenden Nervenimpulse; S. physiologischer Vorgänge durch →Hormone; S. der Entwicklung (Ontogenie) der Lebewesen durch ihre →Gene. Das Ändern, mitunter auch das Aufrechterhalten v. Steuereinstellungen, erfordert den Aufwand v. Energie; doch liefert der steuernde Einfluß dem gesteuerten Vorgang i. d. R. keine Energie u. entnimmt ihm auch keine. Wirkungszusammenhänge der S. sind daher zur Energieübertragung unfähig, können aber →Signale (Information, →Information u. Instruktion) übertragen. Schließt sich eine Wirkungskette v. Steuervorgängen zu einem Kreisprozeß, so resultiert daraus je nach den Übertragungsfunktionen ein positiver Rückwirkungskreis od. ein stabiler od. instabiler Regelkreis
Jugendentwicklung: Tier-Mensch-Vergleich
die ihre Jungen in Erd- od. Baumhöhlen bzw. in
Nestern (Eichhörnchen!) betreuen, unter den Raubtieren
aber auch für die großen Formen (Löwe, Bär)
Die Jugendentwicklung der Säugetiere — hier aufgefaßt als die Zeitspanne zwischen der Geburt und dem Erreichen der vollen Geschlechtsreife — beginnt in verschiedenen systematischen Gruppen mit sehr unterschiedlich angepaßten Jungentypen. Phylogenetisch am ursprünglichsten sind die Nesthocker: Wenn sie zur Welt kommen, sind sie noch nicht zur Fortbewegung fähig. Vor der Geburt schließen sich die Augenlider, um nach der Geburt die noch in der Entwicklung befindlichen Augen vor der Einwirkung der Luft zu schützen. Der äußere Gehörgang ist noch nicht durchgängig. In vielen Fällen fehlt jede Behaarung. Erst Tage oder Wochen nach der Geburt öffnen sich die Augen und die äußeren Gehörgänge, wächst das Fell und entwickelt sich die Fortbewegungsweise der Erwachsenen.
auf die Fortbewegung des Laufens spezialisierte Säugetiere,
für die das Finden od. Herstellen genügend großer
Höhlen für die Jungenaufzucht problematisch wäre
Das andere Extrem bilden bei den Säugern (wie bei den Vögeln) die Nestflüchter: Wenige Minuten bis zu einer Stunde nach der Geburt können die Jungen bereits auf den eigenen Beinen stehen, und bald laufen sie der Mutter hinterher, beispielsweise, wenn diese vor einem Raubfeind flüchtet. (Bei manchen Robben allerdings schwimmt das Junge voran, und die Mutter folgt.) Neugeborene Nestflüchterjunge haben bereits offene Augen und Ohren sowie die gleiche oder beinahe die gleiche Behaarung wie die Erwachsenen. Im Uterus schließen sich bei den Nestflüchterjungen vorübergehend die Augenlider und wiederholen damit einen Entwicklungsvorgang der Nesthocker, ohne daß dieser wie dort einer physiologischen Schutzfunktion dient. Hierdurch wird deutlich: Der Übergang vom Nesthocker zum Nestflüchter geschah im Rahmen der Gesamtentwicklung durch das Späterlegen des Geburtstermins.
wie Opossum, Koala, Faultiere u. viele Primaten
bis zu den Menschenaffen
Eine dritte, eigenständige Anpassungsrichtung repräsentieren die Traglinge: Säugetierjunge, die sich vom Mutter- oder auch Vatertier tragen lassen, entweder im Beutel (passive Traglinge, z. B. Beuteltiere) oder, indem sie sich aktiv am Elterntier festhalten (aktive Traglinge). Ihr allgemeiner Entwicklungsstand bei der Geburt entspricht dem der Nestflüchter, z. B. hinsichtlich der Augen, Ohren und Behaarung; ihr Beinskelett ist jedoch so beschaffen, daß die Hände und die Füße, anders als bei Lauftieren, in der Normalhaltung mit der Innenseite einander zugekehrt sind, so daß sie ins Fell des tragenden Elterntieres greifen können.
Auch der menschliche neugeborene Säugling ist biologisch auf das Getragenwerden durch die Mutter angelegt. Das aktive Sich-Festhalten ist jedoch nur in Spuren — im Greifreflex der Hände — entwickelt. Wegen des Aufrichtens der Körperachse und der aufkommenden Haarlosigkeit des Menschen hatte sich im Verlauf der Menschwerdung auch die Beziehung des Säuglings zur Mutter beim Getragenwerden ändern müssen, wobei während der längsten Phase (im "Tier-Mensch-Übergangsfeld") die unbekleidete Mutter vorauszusetzen ist. Die Form des Beckens und die Hüftgelenke des Säuglings legen eine Beugehaltung und ungefähr eine 45°-Spreizung der Oberschenkel fest. Diese ohne Muskelanspannung eingehaltene Stellung sowie der große Winkel zwischen Schaft und Hals des Oberschenkels und die auffällige Kurvatur der Unterschenkel ("O-Beine") passen — als Anpassungen — zu keiner anderen Position des Säuglings als dem Reitsitz auf der Hüfte der Mutter. Dieser ist daher nach heutigen Kenntnissen als die natürliche Traglings-Haltung des menschlichen Säuglings aufzufassen. Dabei preßt der Säugling die Beine an den Körper der Tragenden und braucht nur im Rücken gestützt zu werden. Hatten sich die beschriebenen Anpassungen an das Dasein des passiven Traglings im Verlauf der Fetalzeit ausgebildet und sind sie schließlich bei der Geburt voll entwickelt, so werden sie doch im ersten Lebensjahr allmählich wieder rückgängig gemacht, und zwar zugunsten der Verwirklichung der eigentlich menschlichen Fortbewegungsweise auf zwei Beinen. Erst 12 bis 15 Monate nach der Geburt ist das erreicht. Eine so lange Dauer ist im Vergleich zu allen Säugetieren einzigartig. Als "Steppenläufer" wäre der Mensch an sich dazu disponiert, wie die Huftiere sogleich lauffähige Kinder, also Nestflüchter, zu gebären; dies aber würde bei der gegebenen Entwicklungsgeschwindigkeit des Fetus eine Schwangerschaftsdauer von über 20 Monaten erfordern. Statt dessen wird der phylogenetische Weg vom Traglingsjungen der Baumkletterer zum "Laufkind" des Menschen ontogenetisch außerhalb des Uterus durchschritten (im "extrauterinen Früh-Jahr" nach Portmann).
des Neuhirns
Im Unterschied zur Streckung des Hüftgelenks entwickelt sich eine andere Errungenschaft der Menschwerdung, die Verdreifachung des Volumens des Neuhirns, bereits vor der Geburt. Das gibt dem Kopf des Fetus eine größere Querschnittsfläche als dem Rumpf und macht den Schädel für die Geburt zum Maß für die notwendige Ausweitung der Geburtswege. Zugleich prägt das Voreilen der Gehirnentwicklung indirekt auch die Physiognomie des Gesichts des Säuglings: hohe Stirn im Vergleich zum Untergesicht sowie weit auseinandergerückte Augen. Diese Merkmale wurden zu Anteilen des "Kindchenschemas". Da sich das Untergesicht ("Schnauzenteil" des Gesichts) beim Schimpansen wie bei allen Primaten erst nach der Geburt positiv allometrisch entwickelt, ähnelt das Gesicht des erwachsenen Menschen weniger dem Gesicht des erwachsenen Schimpansen als dem des Schimpansenkindes. Dies hat — neben zahlreichen anderen Ähnlichkeiten zwischen adulten Menschen und früheren Entwicklungsstadien der Menschenaffen — die nicht endgültig abgeklärte Vermutung aufkommen lassen, im Verlauf der Menschwerdung habe der phylogenetische Mechanismus der Neotenie eine Rolle gespielt.
"physiologische Frühgeburt"
Die allgemeine motorische Unterentwicklung und damit Hilfsbedürftigkeit des in der Menschwerdung zum passiven Tragling gewordenen Säuglings hat die Formulierung angeregt, er benötige zur Entwicklung im ersten Lebensjahr einen bergenden "sozialen Uterus". Im Vergleich zu allen Säugetierjungen, die mit offenen Augen und Ohren zur Welt kommen (Nestflüchter und aktive Traglinge), erweckt er ferner den Eindruck, auch nach der normalen (="physiologischen") Schwangerschaftsdauer noch "zu früh" geboren zu werden ("physiologische Frühgeburt"). In seiner Unfähigkeit zur Fortbewegung ähnelt er einem Nesthocker. Diesen Charakter des "sekundären Nesthockers" (nach Portmann) verleiht der Mensch dem Säugling allerdings zusätzlich vor allem dadurch, daß er ihm — wohl besonders seit dem Einsetzen der Seßhaftigkeit und dem Beginn der Stadtentwicklung — seinen Dauerplatz statt an der Mutter zunehmend getrennt von ihr in liegender Haltung anweist. Dadurch wird der Säugling, von Natur aus ein passiver Tragling, zum "zivilisationsbedingten Nesthocker".
An diese phylogenetisch so junge Lebensform sind die sozialen Verhaltensbedürfnisse des neugeborenen Säuglings allerdings nicht angepaßt (noch nicht?). Sie sind weiterhin die des passiven Traglings und lassen sich aus der Lebenssituation des "abgelegten" Säuglings, auch wenn es diesem, wie im Normalfall, weder an Nahrung noch an Schutz und Ruhe, weder an Wärme noch an Hygiene fehlt, weder herleiten noch verstehen:
-
Das Getrenntsein von der Mutter beantwortet der Säugling, falls er nicht schläft, häufig mit dem biologischen "sozialen Alarmruf" des Verlassenseins (Schreien); beruhigend wirkt Körperkontakt.
-
Beruhigend auf den Säugling wirken auch das Bewegtwerden (z. B. mittels der Wiege) und der Lippenkontakt mit dem Schnuller oder Flaschensauger. Beides entspricht für den Säugling biologischen "Anwesenheitssignalen" der Mutter; der Schnuller ist, ethologisch gesehen, eine Attrappe der Brustwarze.
einer Bezugsperson
Ein weiteres Bedürfnis des Säuglings entspricht einer biologischen Notwendigkeit nicht nur speziell des Traglings, sondern — allgemein — aller im Familienverband aufwachsenden, aber individuell fortbewegungsfähigen Tierjungen: das Bedürfnis nach individueller Bindung. Auch bei der Erfüllung aller oben genannten körperlichen Lebensbedürfnisse ist zur ungestörten Verhaltensentwicklung des Säuglings — spätestens mit dem 2. oder 3. Lebensmonat beginnend — die Bindung an Mutter und Vater, zumindest aber an eine konstante zuverlässige Bezugsperson unerläßlich, die der Säugling am Verhalten, an der Stimme und an ihren Gesichtszügen wiedererkennen kann. Fremde Personen rufen Angst hervor. Dies gilt unabhängig vom leiblichen Verwandtschaftsgrad; darum ist Vaterschafts-Erkennung aufgrund von Reaktionen eines Säuglings oder älteren Kindes völlig unmöglich. Ein Aufwachsen ganz ohne bleibende Bezugsperson hat fast unausweichlich schwerste Retardierungen und Verhaltensstörungen zur Folge (Deprivationssyndrom).
Je lernfähiger Säugetiere sind, desto deutlicher prägt sich in der Entwicklung ihrer Jungen eine Lebensphase aus — kurz "Spielalter" genannt —, die durch die Verhaltensweisen des Erkundens, Spielens und spielerischen Nachahmens gekennzeichnet ist: Im Schutz des Familienverbandes, also noch ohne die Gefährdungen des späteren Ernstfalles, werden aktiv Erfahrungen gesammelt, reifende motorische Fähigkeiten (z.B. Beutefang, Flucht, auch Anteile des Sexualverhaltens) durch häufiges Ausüben und Variieren vervollkommnet und erlernte Verhaltensweisen, auch Sozialverhalten, älterer Artgenossen durch Nachahmung erworben.
Dieses Programm der angeborenen Strategien des Erfahrungserwerbs ist im vollen Umfang auch beim Kleinkind verwirklicht. Besonders augenfällig unter dessen zahlreichen Teilmechanismen ist beim Kleinkind der Wiederholungsdrang nach Umweltantwort, als Appell formuliert: "Wiederhole sofort ein Verhaltenselement, falls ihm eine auffällige Wahrnehmung nachfolgte". Das schematische Handeln nach diesem simplen Schema führt unmittelbar zum Unterscheidenkönnen zwischen — einerseits — zufälligen Koinzidenzen und — andererseits — Ursache-Wirkungs-Beziehungen zwischen eigenem Handeln und Umweltereignissen. Dadurch wird das Kind über seine Möglichkeiten zur Beeinflussung der belebten und der unbelebten Umwelt belehrt. Der Wiederholungsdrang nach Umweltantwort gehört im eigentlichen Sinne — wie der Erkundungsdrang, der Nachahmungsdrang, die aggressive soziale Exploration und mehrere andere Verhaltensdispositionen des Spielalters — zur Natur des Kindes. Leider scheint die Einfühlung der Erwachsenen in diese den Kindern angeborenen, emotional verwurzelten Strategien des Erfahrungserwerbs nicht naturgegeben zu sein wie Liebe, Angst und Hunger, sondern sie muß mit Verstandeshilfe erworben werden. Hier liegen Gründe für rational bedingte Fehleinstellungen zum Kind, die sich in der Erziehung und in der Konzeption von Bildungseinrichtungen ausdrücken und sich verhängnisvoll auswirken können.
Bis hierher gilt die Aussage des Aristoteles: "Der Säugling unterscheidet sich in seinem Wesen noch in nichts von einem Tier". In heutiger Wissenschaftssprache ausgedrückt und durch eine vergleichend biologische Bemerkung ergänzt, heißt das: Zwar sind schon im Embryo, im Fetus und erst recht im Säugling zahlreiche anatomische und physiologische Besonderheiten angelegt, die ihn zu keiner anderen Entwicklung als der zum Menschen prädeterminieren; aber unter den vorausgehend beschriebenen Eigenschaften des Säuglings und Kleinkindes war noch keine, die nicht, wenn auch in abgewandelter Form, auch bei der einen oder anderen Tierart vorkäme. Doch dann geschieht im Rahmen und auf der emotionalen Basis des Verhaltensbereichs "Erkunden, Spielen, Nachahmen" etwas Neues: Das Menschenkind überholt in einer bestimmten Entwicklungsphase des Kleinkindalters ein etwa mit ihm aufgezogenes gleichalteriges Schimpansenkind, und dies geschieht dann sogleich mit unaufholbaren Riesenschritten in Richtung derjenigen Dimensionen, die das eigentlich Menschliche zur Erscheinung bringen.
Eine erste Dimension, in der das Kleinkind schnell ein Niveau erreicht, mit dem sich die entsprechenden Ansätze im Tierreich nicht mehr messen können, ist die der Intelligenz. Sie erschließt neue Freiheitsgrade des Verhaltens: Nicht mehr nur tatsächlich erlebte Erfahrungen führen durch Lernprozesse zur Vervollkommnung antriebsbedingten Verhaltens (z. B. für den Nahrungserwerb oder die Vermeidung von Gefahren); sondern interne Prozesse der Um- und Neukombination von Gedächtnisinhalten (= Denkprozesse) konstruieren Abbilder ganz neuer Verhaltensmöglichkeiten und steuern hiernach das Handeln. Eine weitere Intelligenzleistung ist das Verwenden erlernter lautlicher Symbole zur gegenseitigen Verständigung — bis zur Entwicklung der begrifflichen Sprache. Schließlich werden sogar die Antriebe und deren Ziele zum Gegenstand des "inneren Experimentierens", und das ihnen zugeordnete Verhalten kann an gedanklich gewonnenen (z. B. ethischen) Maßstäben gemessen und daraufhin verstärkt oder gehemmt werden. Durch all das löst sich das Kleinkind viel mehr, als es irgendeinem Tier gegeben wäre, aus der Instinktbindung, d. h. aus der unmittelbaren Steuerung durch Antriebe und Bedürfnisse wie Hunger, Angst usw. Diese wirken dann — als Triebfedern des Handelns — vielfach nur noch als so etwas wie die "letzte Instanz" der Verhaltenssteuerung.
Ichbewußtseins
Ein zweiter, sich klar abzeichnender Teilvorgang der individuellen Menschwerdung des Kleinkindes ist das Auftauchen seines Ichbewußtseins, sicher abzulesen am richtigen Gebrauch des Wörtchens "ich", davor aber bereits am zutreffenden Deutenkönnen des eigenen Bildes im Spiegel. Letzteres können zwar nachweislich auch Gorilla, Schimpanse und Orang Utan; doch verliert eine Eigenschaft des Menschen ja nicht dadurch ihren Charakter als unbedingt zum Menschen gehörig, wenn man feststellt, daß sie in Ansätzen auch bei anderen Lebewesen anzutreffen ist. — Auch das Handeln nach Motiven, die sich aus dem Sich-Hineinversetzen in andere Wesen herleiten, zeigt sich erstmalig im Kleinkindalter; dabei wird das Konzept des Ichbewußtseins auf das innere Bild des anderen Wesens, z. B. des Mitmenschen, übertragen: Der Artgenosse wird zum anderen Ich, der Verhaltenspartner zur Person. Eine spätere Konsequenz davon kann die Überzeugung sein, die Persönlichkeit eines Menschen überdauere auch den leiblichen Tod; hier kann der Ansatz zur Achtung vor den Toten und zu ihrer Verehrung liegen.
|
|
|
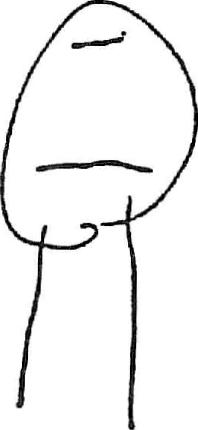
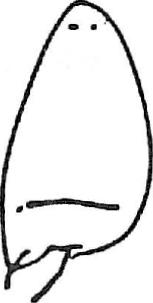
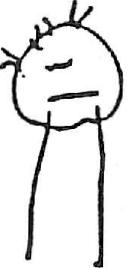
3 Kopf-Fuß-Männchen, gemalt von einem 3½jährigen Mädchen
Ein dritter, besonders augenfälliger Schritt zum spezifisch Menschlichen vollzieht sich, wenn ein Kind zum ersten Mal einen gesehenen Gegenstand zeichnet, beispielsweise einen Menschen (der dann stets als "Kopffüßer" auftritt). Obwohl Affen und Menschenaffen eindrucksvoll zeichnen und malen können, hat man "abbildendes Gestalten in formerhaltendem Material" noch niemals bei ihnen beobachtet und es auch trotz gezielter Versuche nicht anregen können. Diese Fähigkeit setzt eine zentralnervöse Funktionsstruktur voraus, die das Eigentum allein des Menschen zu sein scheint. In ihr aber liegt die Voraussetzung auch für die Entwicklung der Schrift als Mittel zur Informationsweitergabe an nicht anwesende andere Menschen und damit zugleich für die schriftliche Weitergabe kultureller Traditionen über Generationen hinweg.
Drei Errungenschaften aus der Urgeschichte des Menschen sind durch Dokumente belegt, die sich über die Zeiten erhalten haben: Feuer, Grab und (künstlerisches) Bild. Sie versinnbildlichen, wenn auch zum Teil in abgeleiteter Form, gerade die drei eben besprochenen Dimensionen, in denen die Fortschritte des Kleinkindes die entsprechenden Ansätze im Tierreich äonenweit hinter sich lassen: die Intelligenz (Indienstnahme des Naturphänomens Feuer gleichsam als Werkzeug); die Erfassung des eigenen Ichs und des Ichs des Mitmenschen, selbst über den Tod hinaus; und das bildnerische Gestalten beispielsweise im Rahmen von Jagdzauber und Totenkult.
des Menschen
Den Abschluß der Jugendentwicklung bildet die Geschlechtsreife; während der Jugendentwicklung bereitet sie sich vor. Einige hinsichtlich des Tier-Mensch-Vergleichs bemerkenswerte Vorgänge sind dabei:
-
Der Abstieg der Hoden vollzieht sich bei allen Primaten nach, nur beim Menschen bereits vor der Geburt; hier ist die Entwicklung des Menschen also — im Vergleich zu verwandten Arten — akzeleriert.
-
Retardiert ist dagegen die Pubertät: Sie erfolgt um Jahre später als beispielsweise beim Schimpansen.
-
Einzigartig für den Menschen, d. h. ohne Parallele bei anderen Primaten, ist der pubertäre Wachstumsschub bei beiden Geschlechtern; in dessen Verlauf entsteht auch der durchschnittliche Größenunterschied zwischen Mann und Frau.
-
Der Geschlechtsunterschied in der Stimmlage entsteht ebenfalls in der Pubertät. Durch den "Stimmbruch" des männlichen Jugendlichen sinkt die Tonlage um etwa eine Oktave ab.
-
Mannigfache Umweltbedingungen in der Kindheit, darunter prägungsähnliche Lernvorgänge, beeinflussen die verhaltensbiologische und die psychische Seite der Sexualentwicklung, und zwar — vermutlich in Wechselwirkung mit genetischen Faktoren — so tiefgehend, daß daraus eine unübersehbare Vielfalt sexueller Verhaltenstypen der Erwachsenen folgt.
Nicht nur biologische Besonderheiten, sondern auch die drei besprochenen spezifisch menschlichen Errungenschaften der Kleinkindzeit — vor allem Intelligenz und Ichbewußtsein — geben der Sexualentwicklung des Menschen ihr besonderes Gepräge. Stellvertretend für viele seien zwei Vorgänge erwähnt, an erster Stelle ein pathologisches: Kinder mit fehlentwickeltem, z. B. hermaphroditischem äußerem Genitale beginnen mit dem Einsetzen ihres Ichbewußtseins schwer an ihrem Erscheinungsbild zu leiden (Depressionen); Vergleichbares aus der Tierwelt ist nicht bekannt und auch nicht zu erwarten. Um seelischen Störungen vorzubeugen, führt man daher etwa erforderliche plastische Chirurgie vor Beginn des Wachwerdens des kindlichen Ichbewußtseins durch.
Ein verwandtes Phänomen ist die bei vielen Jugendlichen in einem bestimmten Alter auch ohne entsprechende erzieherische Einflüsse entstehende Hemmung, die eigenen Geschlechtsteile fremden Blicken auszusetzen, insbesondere im erregten Zustand ("genitale Scham"). Gleich, ob diese Hemmung zu den Naturanlagen des Kindes bzw. des Menschen gehört (dies wird u. a. durch humanethologischen Kulturvergleich nahegelegt) oder reines Kulturprodukt ist, geht auch sie von der inneren Vergegenwärtigung des eigenen Erscheinungsbildes aus. Symbolisch wird der Zusammenhang in der bibl. Schöpfungsgeschichte angedeutet; doch führt dies bereits über die Jugendentwicklung hinaus ins Lebensstadium der Erwachsenen.
Das gleiche gilt für die vielleicht radikalste Änderung der sexuellen Disposition während der Menschwerdung: Im Verlauf der Entwicklung des aufrechten Ganges verlor der Analbereich seine entscheidende Rolle als sexueller Signalgeber des weiblichen Geschlechts. Dafür wurden Gesicht und Brust zu Trägern visueller erotischer Reizwirkung, bei deren Ausübung und Empfang die Partner nunmehr einander zugekehrt sind. Vielleicht liegt hierin eine biologische Prädisposition für die spezifisch menschliche Möglichkeit, den sexuellen mit den sonstigen Persönlichkeitsbereichen zu einer umfassenden Einheit zu integrieren.
Lit.: Eibl-Eibesfeldt, I.: Die Biologie des menschl. Verhaltens München 1984. Hassenstein, B.: Verhaltensbiologie des Kindes. München 41985. Hellbrügge, Th. (Hg.): Die Entwicklung der kindlichen Sexualität. München 1982. Montagu, A.: Zum Kind reifen. Stuttgart 1984. Portmann, A.: Biologische Fragmente zu einer Lehre vom Menschen. Basel/Stuttgart 31969.
Mensch und Menschenbild in biologischer Sicht
Hinsichtlich seiner Morphologie bildet und begründet der Typus des Menschen eine eigene Familie im Rahmen der Ordnung der Primaten; als Gesamterscheinung (einschließlich Zivilisation und →Kultur) begründet die Art Mensch jedoch — wie es der englische Zoologe J. Huxley ausdrückte — einen eigenen Stamm, wenn nicht sogar — neben den Mineralien, Pflanzen und Tieren — ein eigenes Reich. Im Sinne dieser allgemeinen Aussage ein wissenschaftliches Bild des Menschen zu entwerfen, ist die Aufgabe der →Anthropologie und ihrer Teildisziplinen, z. B. Humanbiologie und →Paläanthropologie.
ein Kulturwesen
Das Menschenbild der Biologie hat nach A. Gehlens Formulierung "der Mensch ist von Natur aus ein Kulturwesen" zwei Seiten: die eine ist die biologische Mitgift des Menschen, vor allem, inwiefern sie die Entfaltung der Zivilisation und Kultur möglich gemacht hat; und die zweite sind die Rückwirkungen der Zivilisation und der Kultur auf die biol. Seite der menschl. Existenz.
Biologische Mitgift des Menschen
Morphologie und Physiologie
frei disponibler Greifhand
Eine erste herausragende morphologische und physiologische Besonderheit des menschlichen Körpers ist der dauernde aufrechte Gang; auch die Menschenaffen beherrschen den aufrechten Gang, doch ist er nicht ihre hauptsächliche Art der Fortbewegung. Der Fuß des Menschen ist — u. a. durch seine langgestreckte Form — als Lauffuß für den ebenen Boden spezialisiert. Die Hand des Menschen ist ähnlich geformt wie die der übrigen Primaten, wo sie ihre ursprüngliche Funktion als Greifhand beim Klettern erfüllt; beim aufrechten Gang ist die Hand jedoch von der Mitwirkung bei der Lokomotion völlig befreit. Somit ist der Mensch — biologisch gesehen — das einzige Lebewesen mit dauernd aufrechtem Gang und einer frei verfügbar gewordenen Greifhand.
Eine zweite herausragende biologische Besonderheit des Menschen ist sein aus Kehle und Mundraum geformter Stimmapparat. Im Unterschied zu den Menschenaffen und allen anderen stimmbegabten Tieren kann der Mensch in unterschiedlichen Tonhöhen eine Vielzahl von Vokalen und Konsonanten formen und zu lautlichen Signalen und zur gesprochenen Sprache kombinieren.
Intelligenz
Als dritte morphologische und physiologische Besonderheit des Menschen ist sein Gehirn zu nennen, das durch die Vermehrung seiner Struktur eine gigantische Steigerung der Speicherfähigkeit, der Intelligenz und der künstlerischen Schöpferkraft über das bei Tieren vorgefundene Niveau ermöglicht.
biologisches Mängelwesen
Der Mensch ist also keinesfalls ein biologisches Mängelwesen, wie es der Dichter und Philosoph J. G. Herder und in seiner Nachfolge der Anthropologe A. Gehlen geltend machen wollten, sondern er ist morphologisch und physiologisch für mehrere biologische Funktionen hoch spezialisiert und aufs beste angepaßt. Zwar kann der Delphin schneller schwimmen, der Gepard schneller laufen und der Schimpanse besser klettern als der Mensch, und an Muskelkraft ist ihm eine ganze Anzahl von Tierarten hoch überlegen. Würde man aber — um ein Gleichnis aus dem Sport heranzuziehen — zwischen dem Menschen und allen in Frage kommenden Säugetierarten einen Mehrkampf veranstalten, der Lang- und Kurzstreckenlauf, Klettern und Schwimmen einschlösse, so würde der Mensch, obgleich es sich bei den Einzeldisziplinen um lauter rein biologische Leistungen handelt, wegen seiner körperlichen Vielseitigkeit den Sieg erringen. Der Mensch ist also "auch körperlich gar nicht so ohne" (K. Lorenz).
Die drei herausragenden körperlichen Spezialisierungen des Menschen — aufrechter Gang mit frei disponibler Greifhand, vielseitiger Stimmapparat und überragende Intelligenz — sind nicht nur je einzeln die Träger ungewöhnlicher Fähigkeiten, sondern sie spielen einander in die Hände. Beispielsweise können Ergebnisse der Intelligenz mit Hilfe der freigewordenen Hände realisiert und mit Hilfe der differenzierten Lautgebung und Sprache anderen Menschen mitgeteilt werden. Aufgrund dieser kooperativen Möglichkeiten schaffen die genannten Spezialisierungen ein offenes Lebewesen mit unübersehbar vielen Freiheitsgraden des Verhaltens, aber auch Fähigkeiten zu den unterschiedlichsten neuen Verhaltensspezialisierungen.
Ontogenie
Die durchschnittliche Gesamtdauer des Lebens des Schimpansen beträgt etwa 40, die des Menschen etwa 80 Jahre. Vergleicht man aber die einzelnen Lebensabschnitte der Kindheit bis zum Beginn des Zahnwechsels, der Jugend bis zur Pubertät, des Erwachsenenalters I bis zum Ende der Fortpflanzungszeit im weiblichen Geschlecht und des Erwachsenenalters II (Senium), so ergeben sich bei weitem die größten Unterschiede in der ersten und in der letzten dieser Epochen.
Die verlangsamte Kindheitsentwicklung könnte, wie der Zoologe und Anthropologe A. Portmann vermutete, den notwendigen Zeitraum zu Verfügung stellen, um den beim Menschen erhöhten Ansprüchen der Einspeicherung von Gedächtnisinhalten, von Verfahren der Intelligenz und der Sprachentwicklung zu genügen.
Das verlängerte Senium könnte ein Ausdruck dafür sein, daß — in der für diese Festlegung maßgebenden Evolutionsepoche — die Verwertung der bis dahin eingespeicherten Information der älter gewordenen Gruppenmitglieder einen entsprechend großen Selektions- bzw. Überlebenswert für diejenigen Verwandtengruppen brachte, denen sie angehörten.
Verhaltenssteuerung
"Im Menschen liegt ein ganz einmaliger, sonst nicht versuchter Gesamtentwurf der Natur vor": Der Mensch "verhält sich zu sich selbst; er lebt nicht, er führt sein Leben". Diese Aussage von A. Gehlen zielt auf die Fähigkeit des Menschen, seine eigene Existenz in seinem Bewußtsein zu "spiegeln" (Ich-Bewußtsein) und sein eigenes, künftig mögliches Leiden und Handeln in seine bewußte Verhaltenssteuerung und -planung einzubeziehen. Im Vergleich zur reinen Instinkt- und Erfahrungsabhängigkeit des Verhaltens des Säuglings bzw. fast aller Tiere eröffnet dies völlig neue Freiheitsgrade des Entscheidens über das eigene künftige Handeln — bis zu einer nur dem Menschen zugänglichen Extremhandlung, dem bewußten Auslöschen des eigenen Lebens im Frei-Tod. Diese Art der Verhaltenssteuerung setzt allerdings voraus, was Gehlen als "Hiatus" (lat., =Kluft) bezeichnete: Das Verhalten muß von den unmittelbar wirkenden instinktiven oder erfahrungsbedingten Verhaltenstendenzen "abgekoppelt" werden können, um dem bewußten "Führen des Lebens" (= der Vernunft) das Steuer zu überlassen.
Durch das "Abkoppeln" von der unmittelbaren Verhaltensbestimmung verlieren jedoch die instinktgebundenen Antriebe und unmittelbar erfahrungsbedingten Verhaltenstendenzen keineswegs jeden Einfluß auf das menschliche Verhalten: Sie beteiligen sich an den bewußten Entscheidungen als Rivalen oder als Förderer anderer Triebfedern. Zudem können sehr starke Verhaltenstendenzen (Beispiel: Jähzorn, panische Angst) die Vernunft-Steuerung des Verhaltens auch völlig aus den Angeln heben und den Menschen wieder dem Diktat der biologisch bedingten Triebfedern unterwerfen. Dies führt zur Frage nach den in der Natur des Menschen verankerten Antrieben und Verhaltensbereitschaften.
Bei Tieren sind unter besonderen Selektionsbedingungen, z. B. auf Inseln oder in der Domestikation, bestimmte angeborene Antriebe schwächer geworden oder verlorengegangen, z. B. bei Brieftauben die Bereitschaft, sich beim Heimflug zum Schlag anderen gesichteten Tauben zuzugesellen. Ein solches Instinkt-Defizit ist jahrzehntelang — auch von K. Lorenz — beim Menschen vermutet worden. Der Mensch hat jedoch im Rahmen seiner Entscheidungsfreiheit (Hiatus) die Wahl zwischen instinktkonformem und instinktunabhängigem Verhalten, und diese Wahlmöglichkeit nimmt ihm die Instinktsicherheit — auch im Fall der Existenz eines einschlägigen Instinktes. Fehlende Instinktsicherheit ist daher kein Argument für die Armut an Instinkten. I. Eibl-Eibesfeldt hält es sogar für denkbar, daß im Zuge der Menschwerdung nicht nur keine Instinkte verlorengingen, sondern womöglich zusätzliche instinktive Triebfedern entstanden sind.
Im Bereich der instinktiven Verhaltensbereitschaften des Menschen besteht die spezielle Frage: Besitzt er eine angeborene Tötungshemmung gegenüber Mitmenschen? Und falls ja: Gibt es Situationen, in denen sie außer Kraft tritt? Vermutlich lautet die Antwort: Eine solche Tötungshemmung existiert — als Tendenz! — gegenüber individuell bekannten Angehörigen des eigenen Sozialverbandes, nicht aber gegenüber Gruppenfeinden. So etwas ist im Tierreich typisch für sozial lebende große Raubtiere, z. B. Wolf und Löwe. Falls auch der Mensch diesem Schema entspräche, was ja zu seiner vermuteten Lebensform im "Tier-Mensch-Übergangsfeld" passen würde, so fiele er biologisch in dieser Hinsicht also nicht aus dem Rahmen. Das hieße: In der biologisch motivierten Situation der Gruppenfeindschaft bestände im Verhältnis zu Gruppengegnern keine biologisch bedingte innere Hemmung gegen unmenschl. Grausamkeit und Tötung. Man spricht hier mit Recht von "Abgründen der menschl. Natur".
Für das Menschenbild der biologischen Anthropologie entscheidend ist jedoch auch die Möglichkeit des Menschen, in jedem Mitmenschen ein fühlendes Wesen nach dem Modell des bewußt gewordenen eigenen Ichs zu sehen und dieses Konzept der "Einfühlung" für das eigene Handeln bestimmend werden zu lassen. Hierdurch erhebt sich der Mensch — der Möglichkeit nach — auf ein Niveau des Handelns, wie es in Goethes Gedicht "Das Göttliche" skizziert worden ist.
Entspräche die von A. Gehlen vermutete Möglichkeit des Menschen, sein Verhalten von der unmittelbaren Instinktsteuerung abzukoppeln, den Tatsachen, so würden allerdings im "Hiatus" nicht nur sozialethisch begründete Handlungsmotive, sondern auch mentale Produkte jeglicher anderen Art handlungsbestimmend werden können, also auch Vorstellungen, die wir als Ausgeburten der Phantasie bezeichnen würden. So etwas ist in der Tat seit jeher vorgekommen. Als Beispiel möge der für Jahrhunderte verhaltensbestimmende Mythos der Sumerer gelten, der Sinn des Lebens bestehe in Fronarbeit für die Götter, damit diese nicht mehr — wie vor der Erschaffung des Menschen — selbst solche Arbeit leisten müßten. Ein moderner Ausdruck für mentale Vorgänge solcher Art ist "Rationalisierung".
Andererseits ist die Unabhängigkeit von der unmittelbaren Steuerung durch instinktive Impulse auch die Voraussetzung dafür daß sich der Mensch als das "offene Wesen" empfinden kann: Was der menschliche Geist überhaupt zu erfassen vermag, das kann dank des "Hiatus" auch sein Verhalten bestimmen, ohne daß dies durch instinktive Festlegung behindert würde. Allerdings gelingt dem Menschen diese Befreiung in der Regel nicht vollkommen: Von Schmerz und Angst, die in der menschlichen Natur verankert sind, völlig unabhängig zu werden, gelingt nur Märtyrern und Heiligen.
Zivilisations- und kulturbedingte Rückwirkungen auf die biologische Existenz des Menschen
Ernährung und Bekleidung
Bevölkerungsdichte
Entdeckungen und Erfindungen wie der Gebrauch des Feuers — also Intelligenzleistungen — eröffneten die Möglichkeit zum Braten, Kochen und Backen; dadurch erweiterte sich das Spektrum der verwertbaren Nahrung. Weitere Leistungen der Intelligenz ermöglichten die Haltung und Züchtung von Haustieren sowie den Anbau von Pflanzen. Durch all dies erschloß sich der Mensch — biologisch gesehen — neue ökologische Nischen, erweiterte also seine Lebensgrundlage. Eine Konsequenz davon war vermutlich die Erhöhung der Bevölkerungsdichte. Die Vorzugstemperatur des unbekleideten Menschen im Wahlversuch beträgt etwa 28°C. Damit ist er an tropisches Klima angepaßt. Die Erfindungen der Bekleidung und des Feuers gaben ihm die Möglichkeit, sein Wohngebiet bis in die Arktis hinein (Eskimos) zu erweitern.
Geräteherstellung, Landwirtschaft, Technik
Werkzeuggebrauchs
→Werkzeuggebrauch kommt selten bei Tieren vor, gezielte Herstellung von Werkzeug (man spricht dann bevorzugt von "Geräten") aufgrund von Erfahrung oder von Einsicht wurde nur in ganz wenigen Einzelfällen beobachtet. Die Menschen haben diese Fähigkeit zunächst langsam, dann immer schneller weiterentwickelt und sind von der Herstellung von landwirtschaftlichen Geräten und Waffen Schritt für Schritt bis zur heutigen Technik gelangt. Jedes neuerfundene Gerät erschloß dem Menschen neue Möglichkeiten zur Nutzung von Ressourcen der Natur und steigerte seine ökologische Potenz fast ins Ungemessene.
Sprachen und Schrift
Auf der Schwarmtraube tanzende Spurbienen verschlüsseln die Entfernung zu den aufgefundenen möglichen neuen Nisthöhlen des Schwarms mit Hilfe der Tanzgeschwindigkeit (→Bienensprache). Dieser Übersetzungscode ist ihnen angeboren. Sprachen aus erlernten Symbolen beherrscht dagegen nur der Mensch; lediglich in ein paar Einzelfällen ist über erlernte und sinngemäß verstandene Symbole auch bei Tieren berichtet worden. Beim Menschen vereinigen sich zur Leistung des Sprechens die physiologischen Fähigkeiten der Lautproduktion mit den im Gehirn verankerten Begabungen zum Lernen und zum Denken. Das Sprechen der Menschen dient nicht nur zur Weitergabe von Information, sondern wegen der Vielzahl und Unterschiedlichkeit der Sprachen verschiedener Völkerschaften auch zur Isolation zwischen diesen, also zur Verhinderung von Wechselbeziehungen, die sonst möglich wären. Die kulturbedingte Diversifikation der Sprachen ist ein Analogon zum stammesgeschichtlichen Vorgang der Entstehung von unterschiedlichen sozialen Signalen, z. B. im Rahmen der Paarbildung bei verschiedenen Arten; diese sind interspezifisch unverständlich und tragen dadurch zur genetischen Art-Isolierung bei.
Die geschriebene Sprache schließlich ermöglicht (seit mindestens 3000 v. Chr.) die Speicherung von Information und deren Weitergabe ohne unmittelbaren Sprechkontakt zwischen den Individuen und daher auch über Generationen hinweg.
Medizin
Hilfe für Kranke oder sonst in Bedrängnis geratene Artgenossen ist nur bei wenigen Tierarten beobachtet worden (Blattschneiderameisen, Zwergmungos, Delphine, Elefanten, Schimpansen). Beim Menschen gehört die Behandlung von Kranken in die Obhut bestimmter Berufe: Das Arzttum ist eine kulturelle Schöpfung. Die Medizin beeinflußt die biologische Existenz der Art Mensch auf vielfältige Weise. Sie verlängert die durchschnittliche Lebensdauer, verändert die relative Häufigkeit der Krankheiten und die Anteile verschiedener Todesursachen, läßt durch entsprechende Therapie und die damit verbundene Verminderung der Letalität die Häufigkeit genetischer Defekte ansteigen und veranlaßt durch die Verminderung der Säuglings- und Kindersterblichkeit eine zum Teil drastische Bevölkerungsvermehrung.
Humanökologie
Stabilität der Umwelt und
der eigenen Weiterexistenz
Bei zahlreichen Organismenarten haben sich ökologische Gleichgewichte, z. B. zwischen Räubern und Beutetieren, eingespielt; oder den Individuen sind Reaktionsweisen angeboren, die das Anwachsen der Bevölkerungsdichte begrenzen und dadurch die Ernährungsgrundlage der Art vor der Zerstörung durch übermäßige Ausbeutung schützen. Wegen übermäßiger Jagd (z. B. von Walen), extensiver Landwirtschaft und wegen der mehr als exponentiell (hyperbolisch) anwachsenden Erdbevölkerung besteht ein solches Gleichgewicht zwischen der Art Mensch und seiner Umwelt heute nicht mehr. Zwar wächst die Bevölkerung in der Bundesrepublik Deutschland heute nicht mehr an; doch besteht zur Zeit keine Aussicht, daß sich dieses generative Verhalten auch weltweit durchsetzen könnte. Die Spezies Mensch gefährdet daher von Tag zu Tag mehr die Stabilität ihrer Umwelt und damit ihre eigene Weiterexistenz. Die wichtigsten anthropogenen Umweltschäden, die bei weiterem extensiven Wachstum der Bevölkerung und der Industrie nach gnadenlosen Gesetzen auf den Menschen zurückschlagen müssen, sind Bodenerosionen und Vergiftung des Grundwassers, der Luft und des Bodens mit Schwermetallen und mit Radioaktivität.
Sozialverhalten und Menschlichkeit
Hochdifferenzierte Sozialverbände mit Kasten- bzw. "Berufs"-Differenzierung, mit Pflanzenzucht, Tierhaltung und Sklaverei gibt es — auf angeborener Grundlage — auch bei Insekten (Termiten, Ameisen und Bienen). Nur beim Menschen sind die Strukturen der Sozialverbände durch gedankliche Konstruktionen mitbestimmt; beim Menschen können daher politisches und wirtschaftliches System einander ablösen. Nur der Mensch hat überdies Institutionen geschaffen wie das Rechtswesen, die verschiedenen Ausgestaltungen des religiösen Lebens, militärische Organisationen und Schulen. Auch Berufe, die nicht durch genetische, entwicklungsbiologische oder morphologische Kastenbildung entstehen, sondern durch spezielle Ausbildung, sind allein für den Menschen typisch.
Mann und Frau
Die soziale Rollenverteilung zwischen Mann und Frau ist zum Teil biologisch, zum Teil kulturell bestimmt. Einen Hinweis darauf gibt die Tatsache, daß manche Berufe bei sämtlichen untersuchten Völkerschaften lediglich von einem Geschlecht ausgeübt werden (überwiegend biologische Bedingtheit), z. B. Großwildjagd von Männern, Säuglingsversorgung von Frauen; dagegen werden andere Berufe je nach Völkerschaft von Männern, von Frauen oder von beiden zusammen ausgeübt (überwiegend kulturelle Bedingtheit), z. B. bei der Herstellung von Bekleidung.
Die jeweils herrschenden politischen und sozialen Verhältnisse beeinflussen das individuelle Verhalten der Menschen von Grund auf; die verhaltensbestimmende Mentalität der Bevölkerung kann beispielsweise in Frieden, Revolution, Krieg oder in Diktaturen und Demokratien dermaßen unterschiedlich sein, daß ein uneingeweihter Beobachter sie kaum als Verhaltensnormen einer und derselben Spezies auffassen würde. Dabei bestimmt jeweils die von der Mehrzahl der Individuen im Sozialverband vertretene Werthaltung auch die Systemebene, in der die Entscheidungen der Individuen fallen: In Paniksituationen oder während Pogromen und im Krieg kann dies die Ebene von unmittelbar biologisch determinierten Verhaltensimpulsen sein, z. B. Angst und Gruppenhaß. Bei der Verhaltenssteuerung durch Wertvorstellungen der Humanität sind dagegen die biologischen Verhaltensimpulse vielfach von der unmittelbaren Bestimmung des Verhaltens abgekoppelt (Gehlens "Hiatus"); denn die in der Natur des Menschen verankerten Reaktionsweisen und Antriebe stehen zwar in weiten Bereichen mit dem Ideal der Menschlichkeit im Einklang, doch gehört auch die Anfälligkeit für Gruppenhaß und für unmenschliche Grausamkeit gegenüber Gruppenfeinden zur menschlichen Natur. Das Ideal der Menschlichkeit ist eine kulturelle und geistige Schöpfung und deckt sich mit der menschlichen Natur nicht vollständig; es steht zu bestimmten Anteilen von ihr in unüberbrückbarem Widerspruch. Doch ist der Mensch nur dann wirklich Mensch, wenn er beim Auftreten eines solchen Widerspruches der Menschlichkeit gegenüber der menschlichen Natur den Vorrang gibt.
Lit.: Campbell, B. G.: Entwicklung zum Menschen. Stuttgart 21979. Eibl-Eibesfeldt, I.: Die Biologie des menschlichen Verhaltens. München 1984. Gadamer, H.-G., Vogler, P. (Hg.): Neue Anthropologie TB (7 Bände). Stuttgart — München 1972-1975. Gehlen, A.: Der Mensch. Frankfurt 81966. Hassenstein, B. (Hg.): Freiburger Vorlesungen zur Biologie des Menschen. Heidelberg 1979. Hofer, G., Altner, G.: Die Sonderstellung des Menschen. Stuttgart 1972. Knussmann, R.: Vergleichende Biologie des Menschen. Stuttgart 1980. Lorenz, K.: Über tierisches und menschliches Verhalten. München — Zürich 1965. Lorenz, K.: Die Rückseite des Spiegels. München — Zürich 1973. Portmann, A.: Biologische Fragmente zu einer Lehre vom Menschen. Basel — Stuttgart 31969.
Freiheit und freier Wille
Das Erlebnis "ich bin frei" kann das Bewußtsein eines wachen oder träumenden Menschen unter Umständen ganz erfüllen; damit verwirklicht sich dort absolute Freiheit in Form einer psychischen Gegebenheit. Freiheit, so empfunden, steht im unüberbrückbaren Gegensatz zu jeder Form von Determination.
Wo der Begriff "Freiheit" dagegen in den Naturwissenschaften auftaucht, z. B. in dem physikalischen Ausdruck "Freiheitsgrad", ist Freiheit stets nur partiell gegeben und bleibt an Bedingungen geknüpft: Als in erdgeschichtlicher Vergangenheit Insekten, Flugsaurier, Vögel und Fledermäuse die Fähigkeit zum aktiven Flug erlangten, gewannen sie für ihre Fortbewegung einen zusätzlichen Freiheitsgrad; in anderen Hinsichten blieben sie aber tausendfach an innere und äußere Lebensbedingungen gebunden.
Was die Beherrschung einer neuen räumlichen Dimension für die Fortbewegung, das war der Zugang zu neuen Bereichen von auswertbarer Information für die Vervollkommnung der Verhaltenssteuerung. Deren Startniveau bildeten die Instinkte, das in mehreren Schritten erreichte Endstadium die Fähigkeit des Menschen zur freien Entscheidung.
Für erbbedingtes (instinktives, angeborenes) Verhalten ist es durch Schaltungen des Nervensystems (im Zusammenwirken mit den Sinnes- und Ausführungsorganen) ein für allemal festgelegt, welche Reaktionen durch welche Reizmuster ausgelöst werden. Das ändert sich, sobald das verhaltenssteuernde System lernfähig wird: Aufgrund von Erfahrungen wandeln oder erweitern sich nun im Laufe des individuellen Lebens die ursprünglichen Reiz-Reaktions-Beziehungen. Eine neue Dimension, die individuelle Vergangenheit gewinnt Einfluß auf die gegenwärtige Verhaltenssteuerung.
Eine Informationsquelle höherer Ordnung, die Intelligenz, erschließt für die Verhaltenssteuerung, wenn auch niemals perfekt, die Dimension der vorweggenommenen Zukunft. Eindrücke aus der bisherigen Erfahrung werden nach Regeln, die ebenfalls der Erfahrung entstammen können, für kommende, neue Situationen um- und neukombiniert; dieser Vorgang liefert so etwas wie ein Modell dessen, was in Konsequenz von neu eingetretenen Bedingungen in der Zukunft zu erwarten ist. Diese Denkergebnisse (Ergebnisse inneren Experimentierens nach S. Freud) beteiligen sich dann an der Verhaltenssteuerung.
Bei Menschenaffen und Menschen erreicht die innere Modellbildung einen so hohen Grad der Vervollkommnung, daß sich ein repräsentatives Abbild nicht nur der Umwelt, sondern auch der eigenen Existenz zu formieren vermag; beispielsweise wird dann das eigene Spiegelbild nicht mehr als fremdes Wesen, sondern als Abbild des eigenen Körpers erkannt. Darauf aufbauend, vermag der Mensch die Möglichkeit auszuschöpfen, sein eigenes zukünftig denkbares Verhalten in die gedanklich zu entwerfenden Zukunfts-Modellbilder einzubeziehen (Schimpansen können das nur in Andeutungen).
In diesem Rahmen werden etwaige alternative Handlungsmöglichkeiten zum Bewußtsein gebracht, hinsichtlich ihrer Erfolgsaussichten abgewogen, mit dem Prinzip der eigenen Verantwortlichkeit und ethischen, vielleicht auch religiösen Maßstäben in Beziehung gesetzt und daraufhin die Entscheidung gefällt. Wird sich ein Mensch im Verlauf eines solchen Entscheidungsprozesses des Spiels seiner Gedanken bewußt, so kann er sich als entscheidungsfrei erleben; ja es kann sich das anfangs erwähnte Gefühl der absoluten Freiheit einstellen und bis zum Fällen der endgültigen Entscheidung erhalten bleiben. Dieser psychischen Situation wird die Definition Friedrich Schillers gerecht: "Frei ist der Mensch, der dem Gesetz der Vernunft folgt." (Der Begriff der Vernunft schließt neben dem Verstand auch die moralische Dimension ein.)
Genau betrachtet, besteht aber zwischen dem eben beschriebenen Entscheidungsprozeß und dem begleitenden Bewußtsein der Willensfreiheit ein Widerspruch: Der Entscheidungsprozeß entspricht seinem Idealtypus um so mehr, je strenger er durch Einsicht, Verantwortlichkeit und Moral determiniert ist; das absolute Freiheitsgefühl aber ist, wie eingangs gesagt, mit der Vorstellung der Determination ganz unvereinbar. Angesichts dieses Widerspruchs werden drei Standpunkte vertreten:
-
Man nimmt den Widerspruch als gegeben hin;
-
man hält am begrifflichen Gegensatz zwischen Freiheit und Determination fest und erklärt angesichts des beobachtbaren determinierten Entscheidungsprozesses das Freiheitserlebnis folgerichtig als Täuschung, vergleichbar einer Sinnestäuschung;
-
man anerkennt die bewußt erlebte Freiheit als psychische Realität, erklärt dafür aber das Begleitgefühl der Undeterminiertheit für widerlegt durch die jedermann zugängliche Erfahrung und vertritt den Standpunkt: Freiheit existiert, ist aber nicht Undeterminiertheit, sondern eine besonders differenzierte Form der Determination unter Ausschöpfung aller dem menschlichen Geist zugänglichen Quellen für entscheidungsbedeutsame Gesichtspunkte.
Logisch widerspruchsfrei sind der zweite und der dritte unter diesen drei Standpunkten. Der zweite Standpunkt negiert die menschliche Entscheidungsfreiheit, damit aber auch die tragende Grundlage der Verantwortlichkeit des Menschen: Die Verantwortlichkeit des Menschen ist gebunden an seine Fähigkeit zur freien Entscheidung; denn was ein Mensch nicht aus freiem Willen, sondern gezwungen tut, liegt nicht mehr in seiner Verantwortung, sondern geht auf das Konto der ihn zwingenden Umstände. Insofern ist der zweite Standpunkt zwar logisch konsequent, steht aber in Widerspruch zur menschlichen Selbstverantwortung und damit zu einem nicht aufgebbaren Grundsatz des menschlichen moralischen Selbstverständnisses.
Auch der dritte unter den formulierten Standpunkten ist logisch konsequent, bejaht aber die Existenz der menschlichen Willensfreiheit. Damit läßt er die anthropologische Basis der menschlichen Verantwortlichkeit für sein entscheidungsfreies Handeln unangetastet.
In der Diskussion um die menschliche Willensfreiheit wurde oft die Frage gestellt, ob eine durchgehende kausale Determination allen materiellen Geschehens nicht von vorneherein jede real existierende Freiheit unmöglich machen wurde.
Die Vorstellung von einem Widerspruch zwischen Kausalprinzip und Willensfreiheit erweist sich jedoch durch einen einfachen systemtheoretischen Gedankengang als unzutreffend: Sobald ein Netzwerk aus datenverarbeitenden Elementen genügend komplex ist, um programmiert werden zu können, sind die Programme nicht mehr auf die Funktionsprinzipien der Netzwerk-Elemente beschränkt. So können etwa in einem Computer sämtliche Regeln des Schachspiels programmiert werden, damit also die Konzepte König, Dame, Turm, Springer, Läufer und Bauer nebst deren Anzahlen, nebst dem Schachbrett, der Aufstellung usw., und dies, obgleich es sich hierbei um vereinbarte Normen handelt, die nichts mit Naturgesetzen zu tun haben. Mathematische und logische Fehler, die versehentlich in ein Programm hineingeraten können, werden vom Computer nicht automatisch eliminiert, sondern befolgt; sie steuern dann zum Leidwesen des Programmierers auf kausalem Wege die Vorgänge der Ausgabe. Daher besteht auch kein Hindernis gegen das Programmiertwerden von Regeln, die formal gegen das Kausalprinzip verstoßen, weder in Computern, noch erst recht in Netzen aus Nervenzellen.
Kausalität und Willensfreiheit,
ein Scheinwiderspruch
Der Widerspruch zwischen Kausalität und Willensfreiheit, mit dem sich Generationen von Philosophen und Naturwissenschaftlern abgequält haben, erweist sich demnach als Scheinwiderspruch, sobald man die Beziehungen zwischen Element- und Systemfunktionen in datenverarbeitenden Systemen in Betracht zieht.
In systemtheoretischer Sicht erübrigt sich damit auch jedes Bemühen, zur Rettung der menschlichen Willensfreiheit auf nicht kausal determinierte Quantenprozesse zurückzugreifen, wie dies Pascual Jordan mit seiner "Verstärkertheorie der Willensfreiheit" (1932) versuchte: Nach seiner Ansicht sollte sich der in der Mikrophysik verbleibende Spielraum der kausalen Determination (Heisenbergs Unbestimmtheitsrelation) im Organismus durch "Verstärkung" zu demjenigen Freiheitsspielraum wandeln, der uns als Willensfreiheit gegeben ist. Doch läßt sich ein kausalitätsentbundener Spielraum, wie gesagt, auch als Ergebnis einer entsprechenden Programmierung innerhalb von datenverarbeitenden Netzwerken aus kausal determinierten Elementen vorstellen, sofern man eine solche Voraussetzung für die Theorie der Willensfreiheit überhaupt für erforderlich hält. Überdies führte Pascual Jordans Verstärkertheorie noch (ähnlich wie jede Zufallstheorie der Willensfreiheit) zu der verwirrenden Vorstellung, die menschliche Entscheidungsfreiheit verwirkliche sich konkret in mikrophysikalisch bedingten Zufallsentscheidungen. Dies würde, wie damals schon Max Planck bemerkte, jede moralische Verantwortlichkeit des Menschen für seine freien Entscheidungen ausschließen — eine Vorstellung, deren Unannehmbarkeit schon oben in anderem Zusammenhang dargelegt wurde.
Nach der hier vorgetragenen Auffassung macht ein Mensch von dem Freiraum seiner menschlichen Entscheidungsfreiheit Gebrauch, wenn er etwaige verschiedene Möglichkeiten des künftigen Verhaltens gedanklich vorwegnimmt, sie mit Zielvorstellungen, ethischen Normen und dem Bewußtsein seiner eigenen Verantwortung in Beziehung setzt und dann nach dem Ergebnis dieser Erwägungen handelt. An der Verwirklichung dieser seiner Entscheidungsfreiheit wird ein Mensch gehindert, wenn ihn überstark aktivierte Antriebe — subjektiv: Emotionen — überwältigen. Mit den Worten Jähzorn und Panik (panische Angst) drückt die Umgangssprache so hohe Stärkegrade der Aggressivität und der Angst aus, daß Vernunftgründe keinen Einfluß mehr haben. Zwischen den Extremen des entscheidungsfreien und des rein emotionsgesteuerten Handelns bestehen fließende Übergänge; dort gilt: Je stärker irgendwelche biologisch bedingte Verhaltenstendenzen sind, desto eher setzen sie sich beim Einzelmenschen gegen sonstige Verhaltensgründe durch und desto weitergehender bestimmen sie auch, wenn sie viele Menschen erfassen, die Verhaltensrichtungen des Kollektivs. Obgleich das Ausschalten der menschlichen Entscheidungsfreiheit die Verhaltensdetermination auf die ursprüngliche biologische Ebene beschränkt, kann eine solche rein emotionale Verhaltensbestimmung mit dem Überwältigenden Gefühl von eigener Kraft und Freiwilligkeit einhergehen. Das Bewußtsein der Entscheidungsfreiheit kann also leider auch irreführen und uns blinde biologische oder ideologische Determination als einen Zustand der Freiheit vorspiegeln.
Lit.: Bünning, E.: Quantenmechanik und Biologie. Die Naturwiss. 31 (1943) 194-197. Hassenstein, B.: Willensfreiheit und Verantwortlichkeit. Naturwissenschaftliche und juristische Aspekte. In: Hassenstein, B. (Hg.): Freiburger Vorlesungen zur Biologie des Menschen. Heidelberg 1979. Jordan, P.: Die Quantenmechanik und die Grundprobleme der Biologie und Psychologie. Die Naturwiss. 20 (1932), 815-821. Jordan, P.: Die Verstärkertheorie der Organismen in ihrem gegenwärtigen Stand. Die Naturwiss. 26 (1938), 537-545. Planck, M.: Vom Wesen der Willensfreiheit. In: Reden und Vorträge. Band II, S. 70-87. Leipzig 1943. Seitelberger, F.: Neurobiologische Grundlagen der menschlichen Freiheit. Überlegungen zur Evolution des Gehirns. In: Böhme, W. (Hg.): Mensch u. Kosmos. Herrenalber Texte 33 (1981) 26-47.