


Aus: Zool. Jb. Physiol. 87 (1983), 181-187
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (4 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Funktionsschaltbilder als Hilfsmittel zur Darstellung
theoretischer Konzepte in der Verhaltensbiologie1)
Bernhard Hassenstein
Verhaltensbiologen unterscheiden begrifflich zwischen fundamentalen Verhaltenskategorien wie angeborenem, erlerntem und einsichtigem Verhalten ohne die Kenntnis der zugrunde liegenden physiologischen Vorgänge im Innern der Organismen. Das gleiche gilt — im Rahmen der genannten großen Kategorien — für speziellere Verhaltensweisen wie Appetenz- und Übersprungverhalten, bedingter Reflex und Prägung, Nachahmen und motorisches Lernen.
Die wissenschaftlichen Begriffe der Verhaltensbiologie gründen sich demgemäß nicht auf bekannte physiologische Prozesse, die man als ihre Ursachen angeben könnte, sondern in der Regel auf beobachtete regelhafte Beziehungen zwischen Verhaltensweisen und deren auslösenden Reizbedingungen. Beispielsweise spricht man von einem bedingten Reflex, wenn ein Reflex (= zuverlässig durch Sinnesreize auslösbare Reaktion) folgende Vorgeschichte hatte: Die Auslöse-Fähigkeit des (ursprünglich unwirksamen) Reizes entstand erst dadurch, daß er ein- oder mehrmals in einem bestimmten zeitlichen Zusammenhang ("Kontiguität") mit einem anderen, nämlich dem diesen Reflex primär auslösenden Reiz, aufgetreten und von dem Tier wahrgenommen worden war.
Funktionelle Zusammenhänge wie der des bedingten Reflexes lassen sich auf verschiedene Weise wiedergeben, z. B. mit beschreibenden Worten ("verbal"), oder mit Hilfe von formal-logischen Zeichen, gegebenenfalls auch mit mathematischen Formeln. Ein weiteres Darstellungsmittel — Thema dieses Aufsatzes — ist das Funktionsschaltbild.
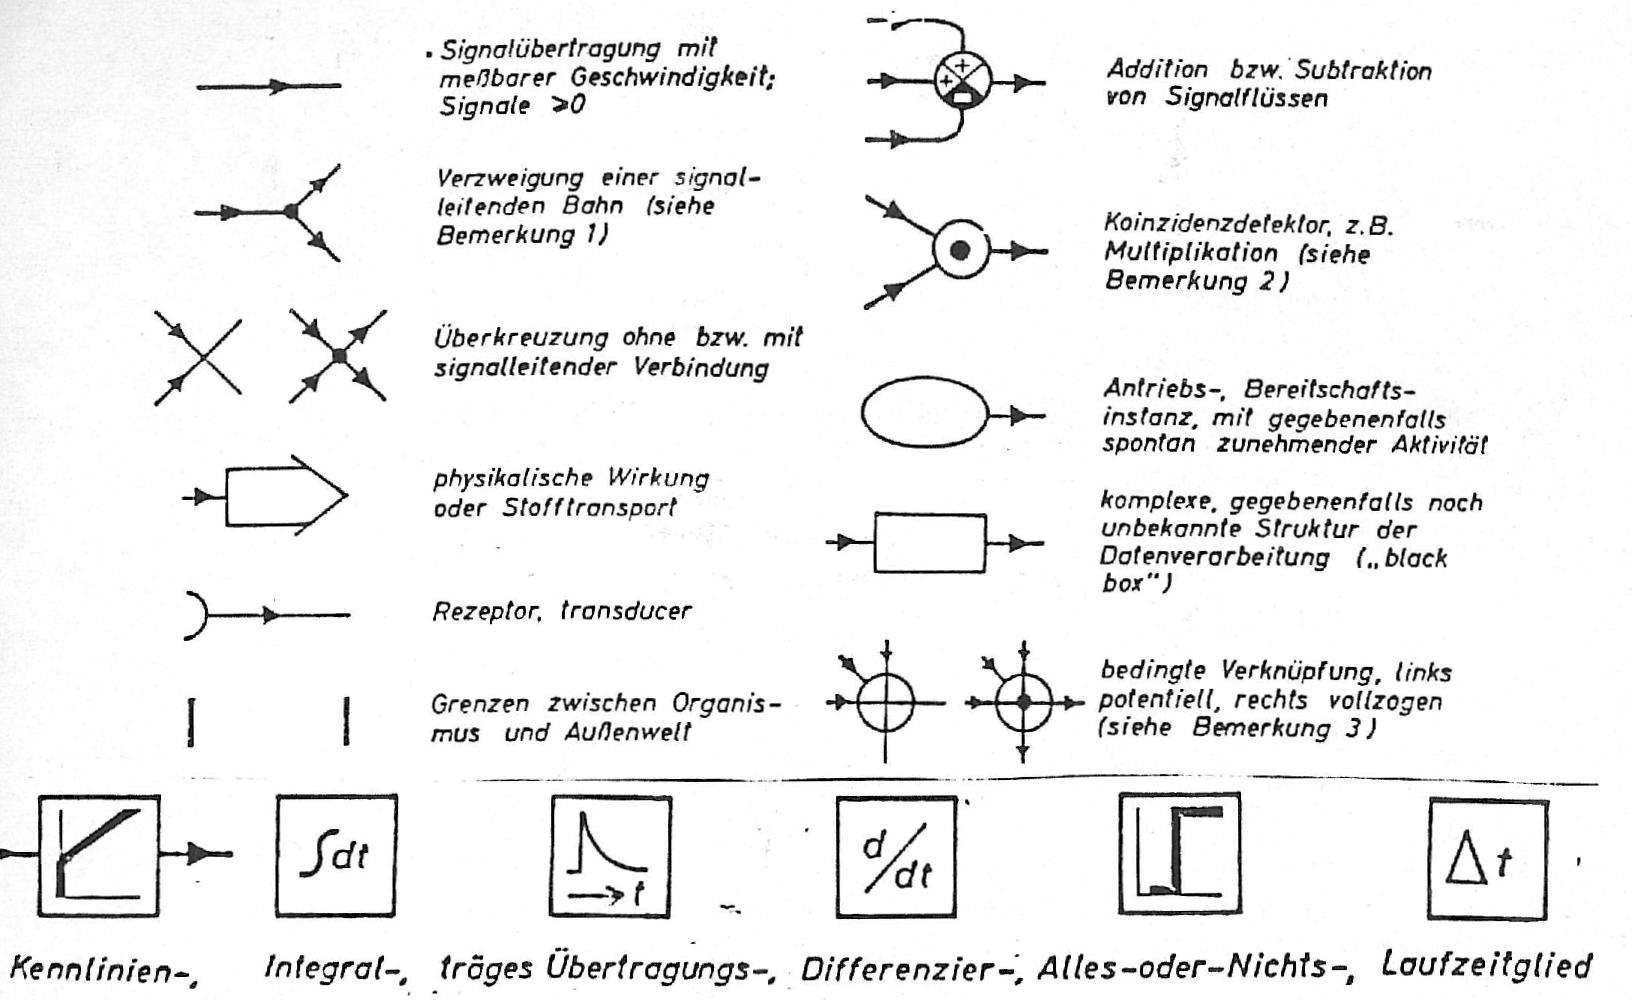 Abb. 1
Die wichtigsten graphischen Symbole für biologische Funktionsschaltbilder.
Bemerkung 1. Wenn ein bestimmter Signalstrom die Verzweigungsstelle erreicht, so fließt ein gleich großer (nicht etwa nur halb so großer) Signalstrom auf jeder der beiden Bahnen weiter.
Bemerkung 2. Nur wenn gleichzeitig Signale eintreffen, wird ein Signal abgesandt.
Bemerkung 3. Ein von links schräg oben eintreffendes Signal führt zur Entstehung einer signalleitenden Verbindung zwischen der waagerecht und der senkrecht gezeichneten Bahn.
Das biologische Funktionsschaltbild ist vom Blockschaltbild darin unterschieden, daß es Zeichen für "Rezeptor", "Effektor-Organ", "bedingte Verknüpfung" usw. enthält, während man in ein Blockschaltbild, das eine höhere Abstraktionsstufe darstellt, nur solche Instanzen einzeichnet, in denen mathematische Transformationen stattfinden. Ein weiterer Unterschied liegt in der Bedeutung der Verbindungslinien zwischen den Schaltbildelementen: Im Blockschaltbild sind sie Symbole dafür, daß die Ausgangsdaten einer Instanz in jeder Hinsicht (auch zeitlich) identisch mit den Eingangsdaten der mit ihr durch die Linie verbundenen Instanz sind. Im biologischen Funktionsschaltbild repräsentieren die Verbindungslinien dagegen signalübertragende Bahnen ("Kanäle"), auf welchen sich (wie z. B. auf Nervenbahnen) nur positive Signale mit meßbarer Geschwindigkeit fortpflanzen. Dem biologischen Funktionsschaltbild entspricht damit in der Technik eher der "gerätetechnische Schaltplan" eines elektronischen Gerätes mit Symbolen für die gebräuchlichen nachrichtentechnischen Elemente wie Widerstand, Transistor usw. Dafür sind im biologischen Funktionsschaltbild — wie schon angedeutet — biologische Gegebenheiten wie Sinneselemente, Nervenbahnen und Effektoren (Muskeln, Drüsen) dargestellt. In der obigen Abbildung sind wichtige graphische Zeichen, die sich bei der Wiedergabe von verhaltensbiologischen Konzepten als erforderlich erweisen, übersichtlich zusammengestellt (Abb. 1).
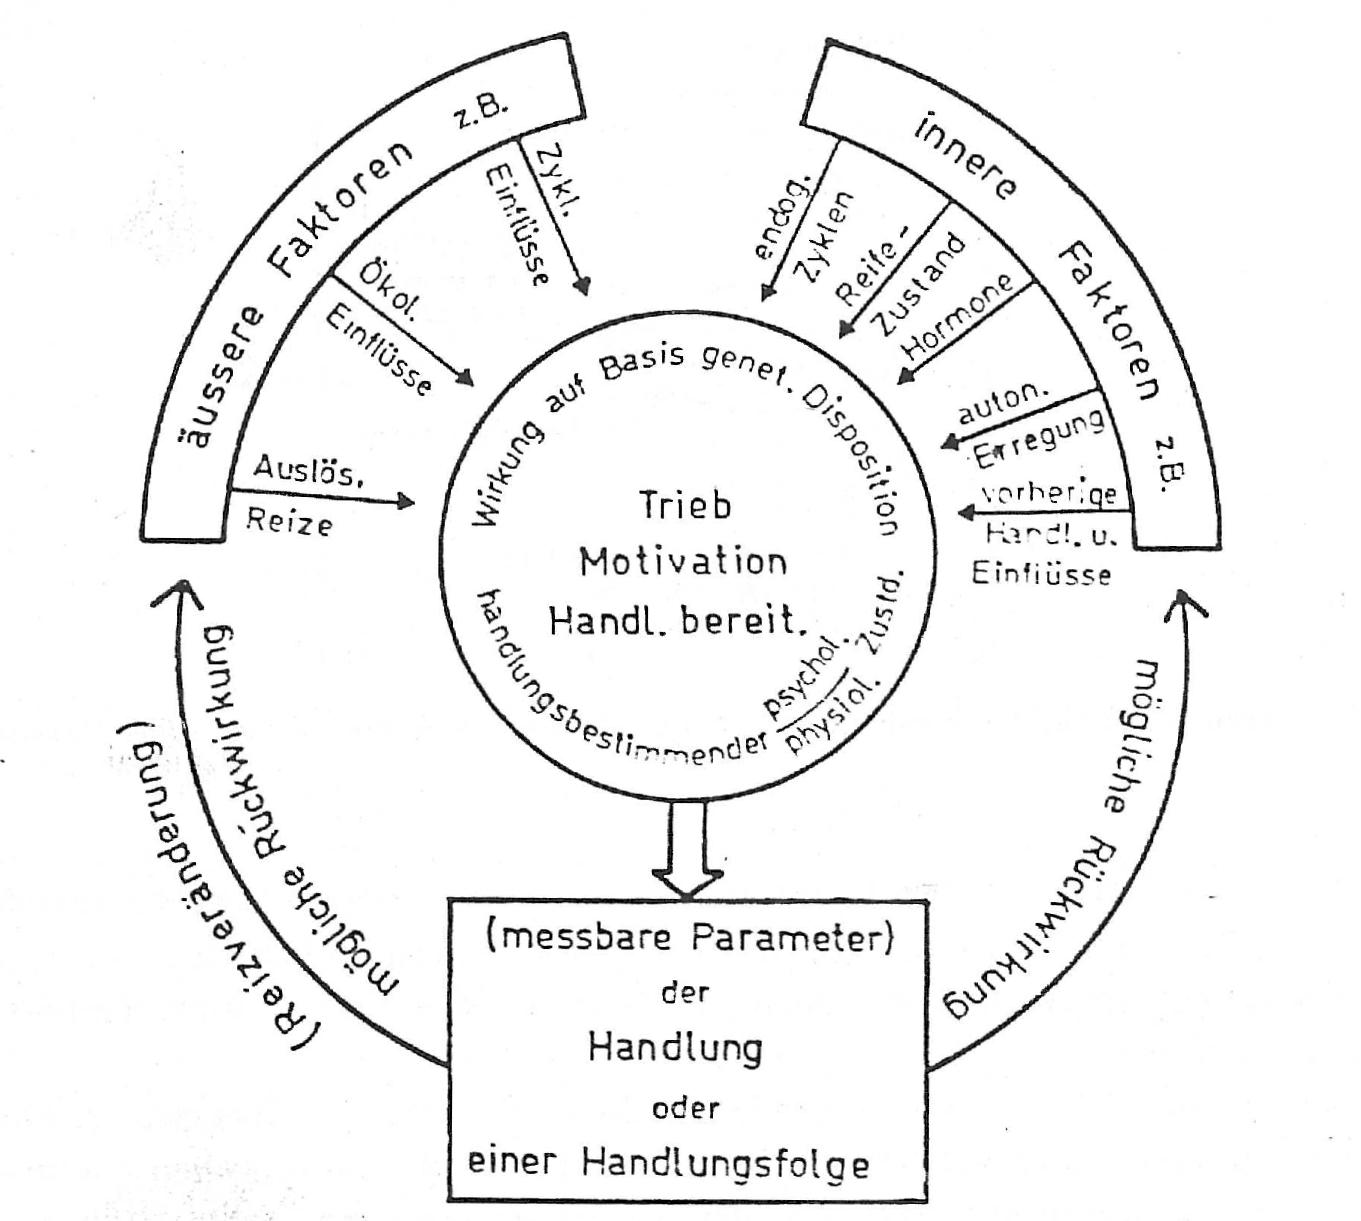 Abb. 2
Veranschaulichendes Schema: Die Begriffe "Trieb", "Motivation" und "Handlungsbereitschaft" sind auf
funktioneller Ebene gleichbedeutend. (Aus BECKER-CARUS et al. 1972).
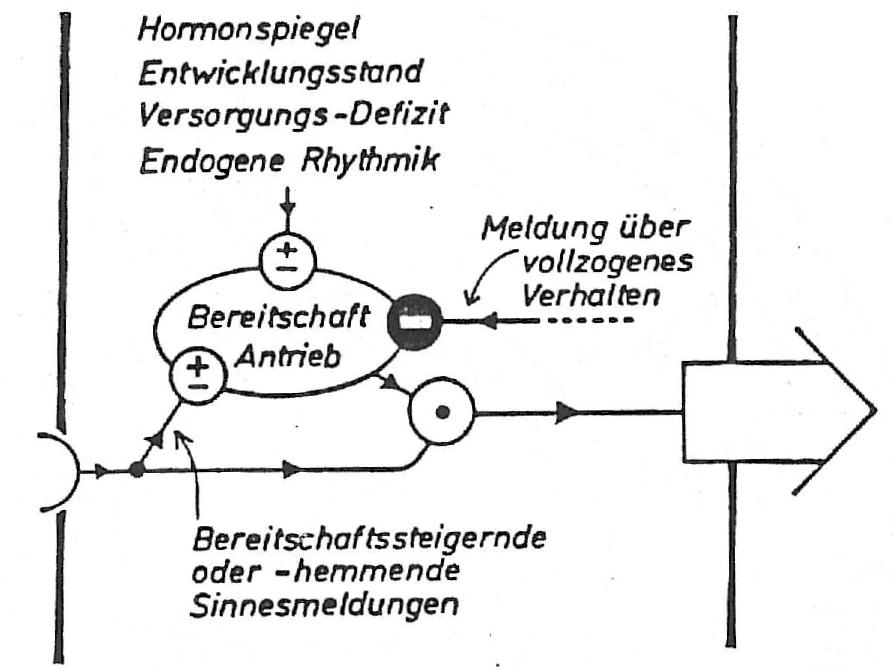 Abb. 3
Funktionsschaltbild für den in Abb. 2 angedeuteten Zusammenhang. (Aus HASSENSTEIN 1980).
Funktionsschaltbilder haben mehrere Vorteile im Vergleich zur verbalen Darstellung verhaltensbiologischer theoretischer Konzepte. Drei dieser Vorteile seien im folgenden zunächst allgemein formuliert und dann jeweils an einem Beispiel veranschaulicht:
1. Funktionsschaltbilder lassen sich leichter als verbale Erörterungen auf innere Widerspruchslosigkeit überprüfen. Läßt sich ein in Worten beschriebener Funktionszusammenhang in kein Funktionsschaltbild übersetzen, so ist der Verdacht begründet, daß das Wirkungsgefüge noch nicht wirklich verstanden ist. Die theoretische Untersuchung funktioneller Konzepte auf der Ebene der Funktionsschaltbilder kann zu Einsichten führen, die auf anderem Wege nicht zu erreichen sind.
Ein Beispiel hierfür liefert die Desinhibitionstheorie des Übersprungverhaltens (begründet durch VAN IERSEL und BOL, 1965): Sofern Übersprungverhalten auf einem Triebkonflikt beruht, sollten die beiden in Konflikt stehenden Verhaltenstendenzen nicht nur jeweils die andere Verhaltenstendenz blockieren, sondern damit zugleich auch deren Hemmwirkungen auf dritte Verhaltenstendenzen schwächen; dies wäre dann der Grund dafür, daß sich daraufhin eine von diesen weiteren Verhaltenstendenzen — nämlich die von sich aus am stärksten aktivierte (meist Putzdrang) — als "Übersprunghandlung" im Verhalten ausdrückt. Diese Art des Übersprungverhaltens wäre damit "autochthon".
Diese verbale Formulierung einer Desinhibitionstheorie des Übersprungverhaltens klingt einleuchtend und gehört seit ihrer Veröffentlichung zum festen Bestand der theoretischen Konzepte der vergleichenden Verhaltensforschung. Versucht man diesen Denkansatz jedoch in ein Funktionsschaltbild zu übersetzen und dieses quantitativ durchzurechnen, so stellt man fest: Keiner der bisher bekannt gewordenen Mechanismen wechselseitiger Hemmung (laterale Inhibition) zeigt die geforderte Desinhibition als Konsequenz der gleich starken Erregung zweier signalführender Parallelbahnen. Die Überlegung auf der Ebene des Funktionsschaltbildes offenbart damit für das theoretische Konzept der Desinhibitionstheorie des Übersprungverhaltens, daß in ihr noch ein Widerspruch steckt, der zu seiner Aufklärung weiterer experimenteller und theoretischer Arbeit bedarf.
2. Funktionsschaltbilder sind frei von Begleitvorstellungen, wie sie Worten und Begriffen, die aus der Umgangssprache oder aus bestimmten Theoriengebäuden stammen, unbewußt anhaften können.
Als Beispiel hierfür diene eine Anzahl von umgangssprachlichen Begriffen ähnlichen Inhalts, aber unterschiedlicher Akzentsetzung, über deren Bedeutung als wissenschaftliche Begriffe viel diskutiert wurde: Reaktionsbereitschaft, Antrieb, Motivation, Drang und Stimmung. Vergegenwärtigt man sich die funktionelle Rolle aller dieser Parameter der Verhaltenssteuerung und entwirft man hierzu das entsprechende Funktionsschaltbild (Abb. 2 und 3), so ergibt sich: Die Bedeutung aller genannter Begriffe ist auf funktioneller Ebene dieselbe. Ein neutraler Ausdruck, der dem gerecht wird, heißt: "innere Bedingungen". Gemeint sind die im Innern des Organismus liegenden funktionellen Bedingungen für den Ablauf eines Verhaltens. Sie wirken nach dem Prinzip der doppelten Quantifizierung mit den "äußeren Bedingungen", den auslösenden (und steuernden) Reizen, zusammen. Die "inneren Bedingungen" für ein Verhallen sind funktionell die Summe der Einflüsse beispielsweise
- des Spiegels bestimmter Hormone (z. B. Sexualhormone),
- des Versorgungszustands (z. B. Nahrungsdefizit),
- der Aktivitätsphase im Rahmen endogener Rhythmen,
- der Entwicklungsphase (juvenil, adult),
- etwaiger vorangegangener Reize oder
- Verhaltensweisen usw.
Der biologische Funktionswert "innere Bedingungen" ist übrigens zusätzlich auch für den Ablauf spontanen Verhaltens maßgeblich, z. B. den Beginn von Appetenzverhalten: Suche nach Geschlechtspartnern oder Nahrung.
Die Projektion des funktionellen Inhalts der Begriffe Reaktionsbereitschaft, Antrieb usw. auf die Ebene des Funktionsschaltbildes offenbart also, daß es sinnlos ist, auf funktioneller Ebene nach Bedeutungsunterschieden zwischen diesen Ausdrücken zu suchen. Die Verschiedenheit der Worte täuscht lediglich vor, daß ihr eine entsprechende Vielfalt auf funktioneller Ebene korrespondieren müßte. Das Mittel der Wahl, um hier Sachfragen von Benennungsfragen zu unterscheiden, ist die Anwendung des Funktionsschaltbildes.
3. Ein Funktionsschaltbild stellt nicht nur ein theoretisches Konzept dar, sondern es bildet mitunter eine Arbeitshypothese hinsichtlich des im Sinnes-Nerven-Effektoren-Systems verwirklichten Netzes von informationsübertragenden Bahnen und datenverarbeitenden Instanzen. Darin leistet es mehr als mechanische Modelle. Dies sei exemplifiziert am Beispiel des sogenannten Lorenzschen Triebmodells (Abb. 4).
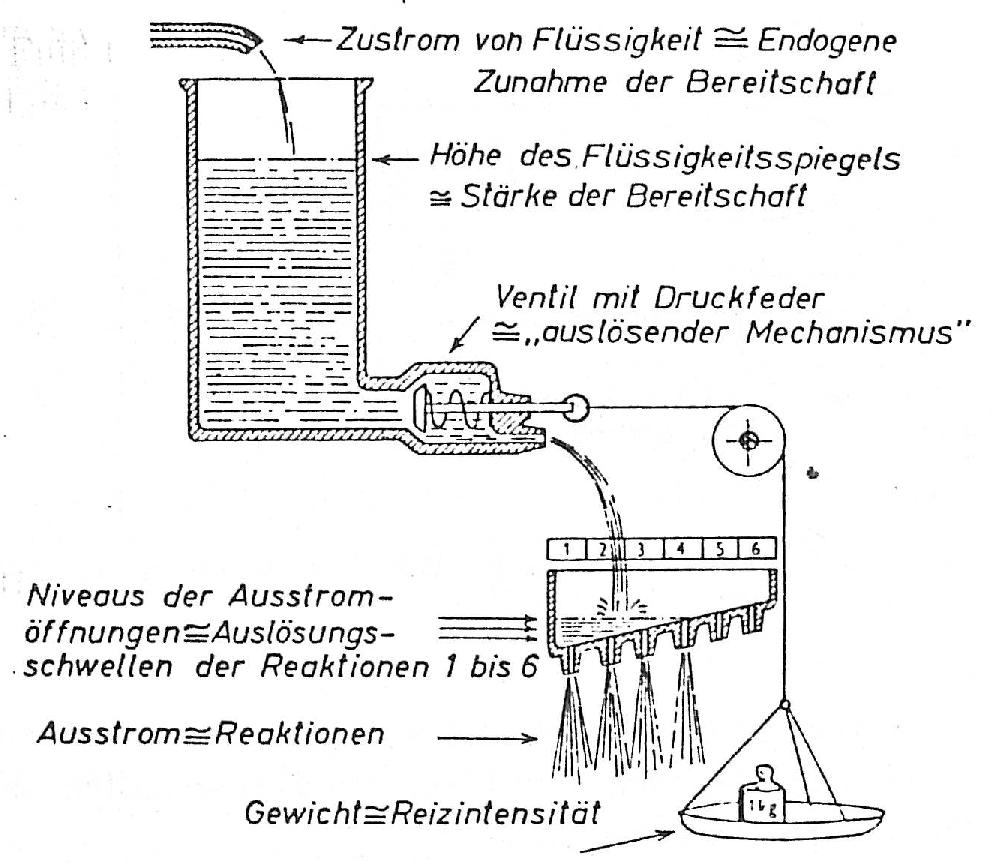 Abb. 4
Das "Lorenzsche Triebmodell" von 1950. Beschriftung vervollständigt.
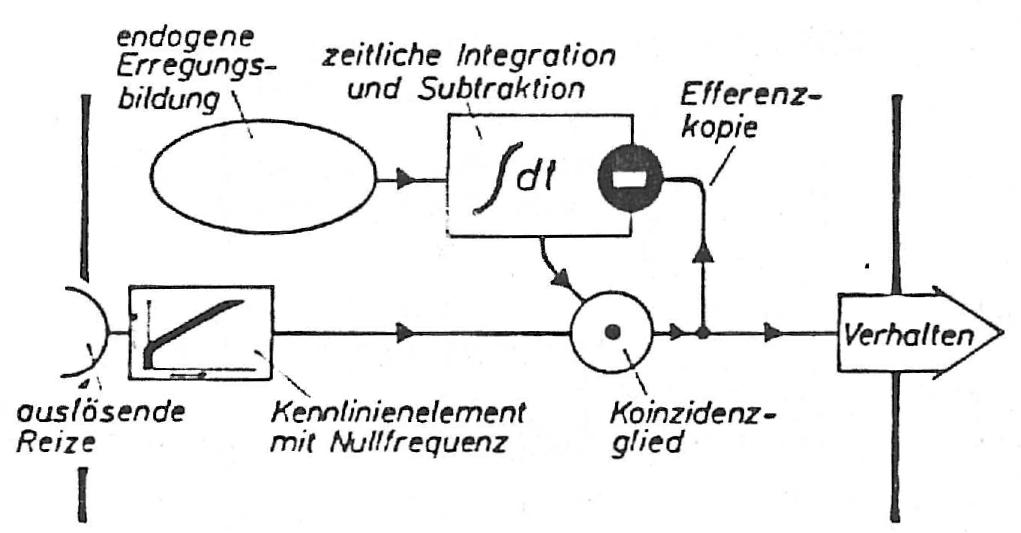 Abb. 5
Funktionsschaltbild für einen Teil des in Abb. 4 modellmäßig dargestellten Funktionszusammenhangs.
Diese Modellvorstellung (das Modell ist meines Wissens nie gebaut worden) veranschaulicht das Nebeneinander von 4 funktionellen Eigenschaften, die für viele Bereiche des instinktiven Verhaltens typisch sind:
- Die Reaktionsstärke ist eine Funktion sowohl des Aktivierungsgrades der inneren Bedingungen als auch der Reizintensität: Prinzip der doppelten Quantifizierung. Überstarke Aktivierung führt zur Reaktion auch ohne Außenreiz.
- Spontanes Ansteigen des Aktivierungsgrades der inneren Bedingungen.
- Reduktion des Aktivierungsgrades der inneren Bedingungen durch den Ablauf des ausgelösten Verhaltens.
- Unterschiedliche Auslöseschwellen verschiedener, zum gleichen Funktionszusammenhang gehöriger Funktionen.
Die Bedeutung dieser zu Unrecht als "psychohydraulisches Modell" bespöttelten Modellvorstellung lag in der zeitbedingten Notwendigkeit, anschaulich und unwiderleglich aufzuzeigen, daß die Hypothese von der Wirksamkeit der vorstehend genannten 4 Funktionen keine logischen Widersprüche enthält und nicht gegen das Kausalprinzip verstößt. Allerdings setzt eine Modellvorstellung wie Abb. 4 beim Gesprächspartner die Bereitschaft und die Fähigkeit voraus, aus der konkret vorgezeigten Konstruktion das Funktionelle zu abstrahieren und sich nicht an dem Unvergleichbaren zu stoßen, das die Darstellung enthält. Sonst fehlt natürlich die Basis dafür, sich zur Verständigung solcher anschaulicher Analogien zu bedienen.
Derartige Schwierigkeiten, die man unter Wissenschaftlern zwar eigentlich nicht erwarten sollte, die aber leider trotzdem vorkommen, umgeht man von vorne herein durch die Veranschaulichung der zugrunde liegenden Funktionen mittels eines Funktionsschaltbildes. Dieses ist in Abb. 5 wiedergegeben. Zu ihm sind folgende Bemerkungen zu machen:
- Die vierte der oben genannten Eigenschaften (Reaktionen mit unterschiedlichen Auslöseschwellen) ist nicht mit dargestellt.
- Wie die Kennlinie des Kennliniengliedes im Anschluß an den Rezeptor ausweist, empfängt von dorther das Koinzidenzglied Signale auch beim Reizeingang null. Dies ist eine der möglichen Voraussetzungen für das Auftreten von Reaktionen bei übergroßer Bereitschaft und dem Reiz null.
- Eine Eigenschaft des Wassers im Modell Abb. 4 besteht darin, daß eine ausfließende Menge automatisch mit einer Senkung des Wasserspiegels im Gefäß einhergeht. Diese funktionelle "Rückwirkung" läßt sich auf der Ebene des Funktionsschaltbilds nicht anders als durch eine Signal-Rückmeldeschleife verwirklichen.
Das Funktionsschaltbild drückt also in diesem Beispiel mehr aus als das gedankliche Funktionsmodell: Die Verringerung eines funktionellen Potentials ist keine prinzipiell notwendige Folge der Abgabe eines Signals, sondern muß entweder durch einen physiologischen Prozeß verwirklicht sein, der den hier gezeigten Eigenschaften des Wassers analog ist, oder durch die Schaltung eines rückwirkenden Signalweges.
Schlußbemerkung
Die Verwendung von Funktionsschaltbildern für theoretische Konzepte der Verhaltensbiologie kann sich in mannigfacher Hinsicht lohnen: Funktionsschaltbilder lassen sich besser als sprachliche Beschreibungen auf innere Stimmigkeit prüfen; sie sind eher gefeit gegen unbewußte Begleitassoziationen, die einem Sprachbegriff anhaften können; und sie kommen der Wirklichkeit näher als Modellvorstellungen auf physikalisch-technischer Basis. Es ist daher zu begrüßen, daß maßgebende Verhaltensbiologen wie K. LORENZ (1978, S. 200, 221 usw.) und G. TEMBROCK (1979. S. 19, 24 usw.) dieses methodische Hilfsmittel bereits seit einiger Zeit anwenden.
Literatur
BECKER-CARUS, C. et al.: Motivation, Handlungsbereitschaft, Trieb. Z. f. Tierpsych. 30 (1972), 321-326. HASSENSTEIN, B.: Bedingungen für Lernprozesse — teleonomisch gesehen. Nova Acta Leopoldina 37/1 (1972), 289-320. — Instinkt, Lernen. Spielen, Einsicht. Einführung in die Verhaltensbiologie. München 1980 IERSEL, J. J. A. VAN, and BOL, A. A. C: Preening in two tern species. A study of displacement activities. Behaviour 13 (1958), 1-88. LORENZ, K.: The comparative method in studying innate behavior patterns. Symp. Soc. exp. Biol. 4 (1950). 221-268. — Vergleichende Verhaltensforschung. Springer-Verlag. Wien/New York 1978. TEMBROCK, G.: Grundriß der Verhaltenswissenschaften. VEB Gustav Fischer Verlag, Jena 1979.1) Herrn Prof. Dr. G. TEMBROCK zur Vollendung des 65. Lebensjahres gewidmet.