


Sonderdruck aus: DIE UMSCHAU IN WISSENSCHAFT UND TECHNIK, Frankfurt a. M. 1964, Heft 8
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (6 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Forschungsbeispiele aus der biologischen Kybernetik*
Bernhard Hassenstein**
Gibt es kybernetische Forschungsprobleme in der Biologie? Ist infolgedessen eine experimentelle biologisch-kybernetische Arbeitsrichtung sinnvoll?
Zunächst ist hierzu festzustellen: 1. Sinnesorgane, Nervenbahnen und Effektoren (Muskeln, Drüsen) sind vielfach zu Regelkreisen zusammengeschlossen; 2. die Nervenfasern sind "Verstärkerketten" und damit auf Informationsübertragung spezialisierte Leitungsbahnen; 3. es gibt physiologische Vorgänge der Informations-Verarbeitung, z. B. im allbekannten Beispiel der binokularen visuellen Entfernungswahrnehmung nach dem Prinzip der Dreieckspeilung. — Indem wir dies konstatieren, werfen wir jedoch noch keine Forschungsprobleme auf; wir wenden nur eine neugeschaffene Terminologie auf Tatbestände an, die bereits im Rahmen der herkömmlichen Physiologie erfolgreich behandelt und in deren Sprache sachgerecht beschrieben wurden. Zu sinnvollen Forschungsvorhaben würde die Anwendung von kybernetischer Methodik auf biologische Probleme aber erst führen, wenn in den Organismen "höhere" kybernetische Prinzipien verwirklicht wären, die nur mit den Mitteln der Regel- und Informationstheorie und nicht mehr mit Hilfe der bekannten physiologischen Methoden und Begriffe untersucht und verständlich gemacht werden könnten. Auf echte kybernetische Forschungsprobleme könnten wir also nur rechnen, wenn man folgende Fragen bejahen dürfte (die Fragen sind auf die für die Biologie in Frage kommenden drei Teilgebiete der Kybernetik — selbsttätige Regelung, Informationsübertragung und Informationsverarbeitung — zugeschnitten):
-
Besitzen bestimmte Regelkreise im Organismus funktionell bedeutsame Eigenschaften, die nur mit kybernetischen und nicht mehr mit herkömmlichen physiologischen Methoden und Begriffen zu untersuchen und zu beschreiben sind?
-
Sind die bekannten Eigenschaften der Nervenleitung nur mit Hilfe von informationstheoretischen Gedankengängen vollständig zu verstehen?
-
Gibt es im Organismus Vorgänge, die bestimmte mathematische Operationen durchführen und hierdurch, nicht durch stoffliche oder energetische Leistungen, ihre Funktion im Organismus erfüllen, und verlangt die Erforschung dieser Prozesse nicht nur eine gute mathematische Allgemeinbildung, sondern eine spezielle mathematische Vorbildung und kybernetische Arbeitsmethoden?
Diese drei Fragen sind nur auf Grund von Erfahrungen zu beantworten. Daher werden im folgenden drei kurze Referate über Untersuchungen an kybernetisch beschreibbaren biologischen Funktionen gegeben, je eines aus den drei genannten Fachgebieten.
1. Regelungsvorgänge: Pupillenreaktion
Veränderungen des Lichteinfalls lösen bei den meisten Wirbeltieren "Pupillenreaktionen" aus: Verantwortliche Sinnesorgane sind die Lichtsinneszellen der Netzhaut. Der Weg der Erregung führt durch den Sehnerven bis über die Kreuzung (Chiasma) hinweg; kurz hinter dieser zweigen die Bahnen von der eigentlichen Sehbahn ab, und die Meldungen gelangen über das Mittelhirn, an die Pupillenmuskeln. Verstärkung des Lichts führt zur Verkleinerung der Pupille, Abschwächung zur Vergrößerung. Zunahme des Lichts wird also vom Organismus damit beantwortet, daß er den Anteil des aufgenommenen Lichts abnehmen läßt; Abnahme des einfallenden Lichts beantwortet er durch Vergrößerung des zu empfangenden Lichtflusses. Er "kompensiert" also — wenn auch mengenmäßig nicht vollständig — die Änderung von Außeneinflüssen.
Dieser funktionelle Zusammenhang entspricht formal dem Prinzip der selbsttätigen Regelung durch einen "Regelkreis" (Bild 1): Die konstant zu haltende Größe (z. B. eine Temperatur) ist durch das dick eingerahmte Rechteck dargestellt. Ihr jeweiliger Zustand ("Istwert") wird durch ein Meßgerät registriert (oben rechts innerhalb des Rechtecks).
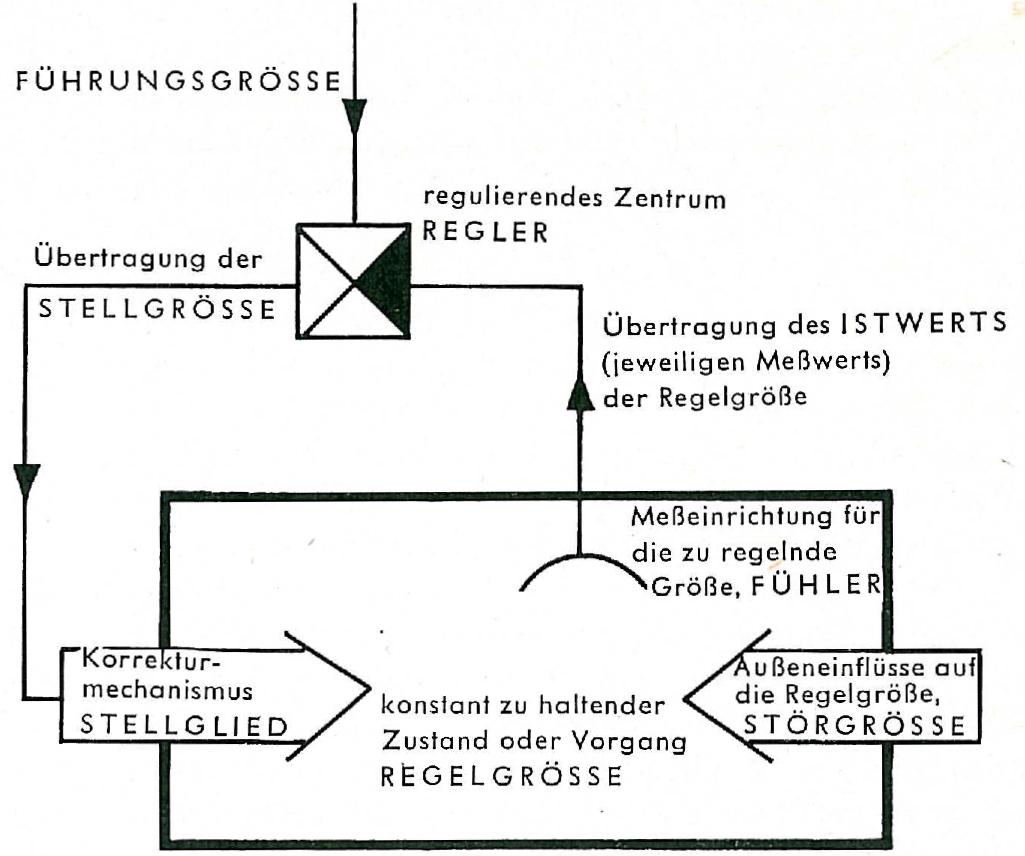 Bild 1
Blockschaltbild eines Regelkreises. Unmittelbare Energiewirkungen sind durch direkten Kontakt zwischen den Symbolen der beteiligten Instanzen dargestellt, (z. B. Meßwerte- und Steuerkommando-)Übertragungen durch einfache Linien. Die "Führungsgröße" kommt in der Besprechung der Pupillenreaktion nicht vor. Ist sie gleich Null, so entspricht der Sollwert eines Regelkreises dem "Nullpunkt" der Meßeinrichtung, d. h. demjenigen Meßwert, bei dem sie kein Signal oder das Signal "Null" aussendet. Fließt dagegen ein zusätzliches Signal (Führungsgröße) additiv in den Übertragungskanal zwischen Fühler und Stellglied hinein, so ändert sich automatisch der Sollwert des Systems. Man kann sich das klarmachen, indem man für die verschiedenen Größen Zahlenwerte einsetzt und feststellt, wie das System dank seiner Schaltung dann reagiert.
Die Meßwerte werden an ein regulierendes Zentrum, den "Regler", übertragen, der auf den Empfang der Meßwerte mit der Aussendung der Steuersignale für den Korrekturmechanismus antwortet. Der Regler ist durch ein kleines Quadrat gekennzeichnet, das durch Diagonalen in vier Abschnitte aufgeteilt ist. Die schwarze Ausfüllung des rechten und das Hellbleiben des linken Abschnittes bedeuten: Vorzeichen-Umkehr zwischen ein- und ausgehender Meldung. Die abgesendeten Steuerwirkungen haben also funktionell das umgekehrte Vorzeichen wie die eingehenden Meßwerte. Infolgedessen werden (nach Bild 1) Abweichungen des Meßwertes vom Nullpunkt des Meßinstruments automatisch mit Gegenaktionen durch das "Stellglied" beantwortet ("negative Rückwirkung"). Das Stellglied (der Korrekturmechanismus) ist als Pfeil dargestellt, der in das Rechteck, das die zu regulierende Größe repräsentiert, hineinragt. Durch das Hineinragen wird versinnbildlicht, daß es sich um unmittelbare Einflüsse handelt, welche die zu regulierende Größe nach Abweichungen auf ihren "Sollwert" zurückzubringen haben. Der von rechts her in das Rechteck hineinragende Pfeil vertritt diejenigen Einflüsse, welche von außen her die Abweichungen verursachen, gegen die dann die Regulation anarbeitet.
Bis hierher bringt die regelkundliche Darstellung (Bild 1), wenn man sie auf die Pupillenreaktion anwendet, keinen oder keinen wesentlichen Erkenntnisfortschritt mit sich. Man hat nur neue Begriffe einzusetzen: Regelgröße ist der Lichteinfall ins Auge; Fühler sind die Sehzellen; die Übertragung der Meßwerte besorgen Nervenbahnen; der Regler befindet sich im Gehirn; Stellglieder sind die Irismuskeln; und der funktionelle Zusammenhang entspricht einer negativen Rückwirkung.
Die folgenden, neueren Aussagen [1, 2, 5, 6] aber deuten an, wie die Regelkunde die weitere Forschung anregte, in dem sie neue Fragen aufwarf und neue Methoden bereitstellte. Das Folgende wäre demgemäß auch nur gezwungen und unbeholfen in der herkömmlichen physiologischen Begriffswelt auszudrücken:
Die jeweils von der Netzhaut empfangene Lichtmenge bestimmt den Öffnungsgrad der Pupille, nicht die Änderungsgeschwindigkeit der Pupillenweite; dies entspricht dem Prinzip des Proportionalreglers im Unterschied zum Integralregler. Die Pupillenreaktion kompensiert bei Sprüngen von einer Helligkeit zu einer höheren oder niedrigeren nicht 100%, sondern nur etwa 50%; der Helligkeitsänderung; der Regelfaktor, gemessen am Verhältnis zwischen der nach Kompensation verbleibenden und der primären Abweichung, ist demnach 0,5. Die Zeitdauer zwischen einem Lichtreiz und dem Beginn der Reaktion ist rund 200 msec; diese Totzeit des Reglers bedingt aus theoretischen Gründen folgendes: Es muß eine Lichtwechselfrequenz geben, bei welcher jede Verkleinerungsreaktion der Pupille, die auf einen Helligkeitsanstieg erfolgte, jeweils gerade so lange Zeit nachhinkt, daß auf sie die nächste Abnahme der Helligkeit fällt und umgekehrt; eine derartige Form der Pupillenreaktion wurde tatsächlich gefunden, als man die in der Technik entwickelte Methode des Frequenzganges anwandte, das Auge also mit sinusförmig schwankendem Licht verschiedener Frequenz reizte. Da in diesem künstlichen Spezialfall die Pupille gerade bei Helligkeit erweitert und bei Dunkelheit verengt ist, muß der ausgleichende Effekt des Regelkreises hier in sein Gegenteil verkehrt sein. Dies war voraussagegemäß der Fall: Die Schwankungen der Helligkeit auf der Netzhaut waren nicht wie bei sonstigen Beleuchtungsänderungen auf die Hälfte herabgesetzt, sondern sie erwiesen sich auf des 7fache gesteigert. Die Frequenz, bei der dies geschieht, liegt bei der menschlichen Pupille zwischen 1 und 2 Hz. — Diese wenigen Angaben sollen andeuten, daß sich die heutige Forschung am Pupillenreflex ganz im Fahrwasser der Regeltechnik befindet — hinsichtlich der experimentellen Methoden, der Begriffswelt und der theoretischen Deutung.
2. Informationsübertragung: Nervenleitung
Die zur Informationsübertragung höchst spezialisierten Organe des Organismus sind die markhaltigen Nervenfasern. Man kann sie als "Verstärkerketten" bezeichnen; denn die aktiven Anteile, die Ranvierschen Schnürringe, speisen aus eigener Stoffwechselenergie elektrische Ströme, welche über passive Leitungsstrecken, die Internodien, hinweg die benachbarten Schnürringe zu entsprechender Stromerzeugung veranlassen. So pflanzen sich die Aktionspotentiale von Schnürring zu Schnürring über die Nervenfaser mit maximal 120 m/sec fort.
Die Art der Signale, die über die Nervenfasern laufen, ist vom Standpunkt des Technikers eine sehr spezielle unter vielen möglichen: Es werden Impulse von festgelegter zeitlicher Dauer und festgelegter Amplitude übertragen; auf jeden Impuls folgt eine ebenso festgelegte "Refraktärzeit" (Phase der Unerregbarkeit), so daß hintereinanderlaufende Impulse einander niemals einholen und daher nicht miteinander verschmelzen können. Der einzige variable Parameter ist die Frequenz, in der die Impulse auftreten.
Wir wollen nun die Frage stellen: Läßt es sich vom Gesichtspunkt der Informationsübertragung verstehen, warum gerade diese spezielle Form der Aktionspotentiale und nicht etwa Dauersignale von variierenden zeitlichen Längen oder variierenden Amplituden verwirklicht sind?
Die günstigsten Abstände zwischen den Verstärkerstationen, die in der Telephonie notwendig sind, liegen in der Größenordnung von 100 km; die Abstände zwischen den Schnürringen auf den markhaltigen Nervenfasern betragen bis zu 3 mm. Das Verhältnis zwischen den Bereichen liegt also bei 108:1. Das scheint kein Zufall zu sein, denn auch die Leitfähigkeiten der elektrisch leitenden Materialien — einerseits Cu, andererseits im wesentlichen eine Lösung von 0,9% NaCl in Nasser — stehen im Verhältnis von rund 108:1 zueinander; und in die mathematischen Formeln, die für die Bemessung der Abstände zwischen Verstärkerstufen maßgebend sind, geht die Leitfähigkeit linear ein. Der Organismus scheint sich also viel größere Abstände zwischen den Zwischenverstärkern als die genannten grundsätzlich nicht leisten zu könne., da ihm metallische Leiter nicht zur Verfügung stehen. Daher liegen dann zum Beispiel zwischen einer Fingerspitze und dem Gehirn des Menschen notwendigerweise rund 800 Verstärkerstufen. Diese aber bilden infolge ihrer großen Anzahl eine in der Technik unbekannt große Quelle für zufällige und systematische Amplitudenveränderungen; eine allgemeine nur 1%ige Vergrößerung des Verstärkungsgrades würde auf einer solchen Strecke ein Signal auf des 3000fache vergrößern (1,01800 ≅ 3000)! Hier gibt es grundsätzlich nur einen Ausweg: des gesättigte "Alles-oder-Nichts-Signal", für dessen Übertragung kleine Amplitudenänderungen belanglos sind. Unter den möglichen Formen von Alles-oder-Nichts-Signalen sind nun kurze Impulse diejenigen, die den geringsten Energieaufwand erfordern, ohne doch als Informationsträger gegenüber Signalen von variierender Zeitdauer benachteiligt zu sein. —
Man erfährt hiermit durch eine elementare informationstheoretische Überlegung [4], daß die Frequenzmodulation genormter Impulse unter den im Organismus gegebenen Bedingungen als die sicherste und sparsamste Informationsübertragung gelten muß, die möglich ist. Übrigens geht man heute auch in der Technik vielfach zur Frequenzmodulation normierter Impulse über, wenn man auf eine besonders sichere Übertragung von Informationen Wert legen muß.
3. Informationsverarbeitung: Zeitliche Mittelung bei der Orientierung von Insekten
Bienen und Ameisen haben eine erstaunliche Fähigkeit bewiesen; sie finden, ohne zu probieren, den geraden Weg zwischen ihrem Heim und einem Ziel, auch wenn sie dieses zuvor nur auf Umwegen hatten erreichen können. Dabei verarbeiten die Ameisen, an denen dies näher geprüft wurde [3], allein die visuelle Erfahrung über Winkel zu fernen Orientierungsmerkmalen (z. B. zur Sonne); die körperliche ("kinästhetische") Erfahrung über Laufstrecken und Wendungen auf dem Wege spielt keine Rolle. Nun ergibt sich der Orientierungswinkel (bezogen auf ein fernes Orientierungsmerkmal) für den geraden Weg zu einem Ziel rechnerisch aus dem Durchschnittswinkel zu diesem Merkmal während des ungeraden Weges (Bild 3).
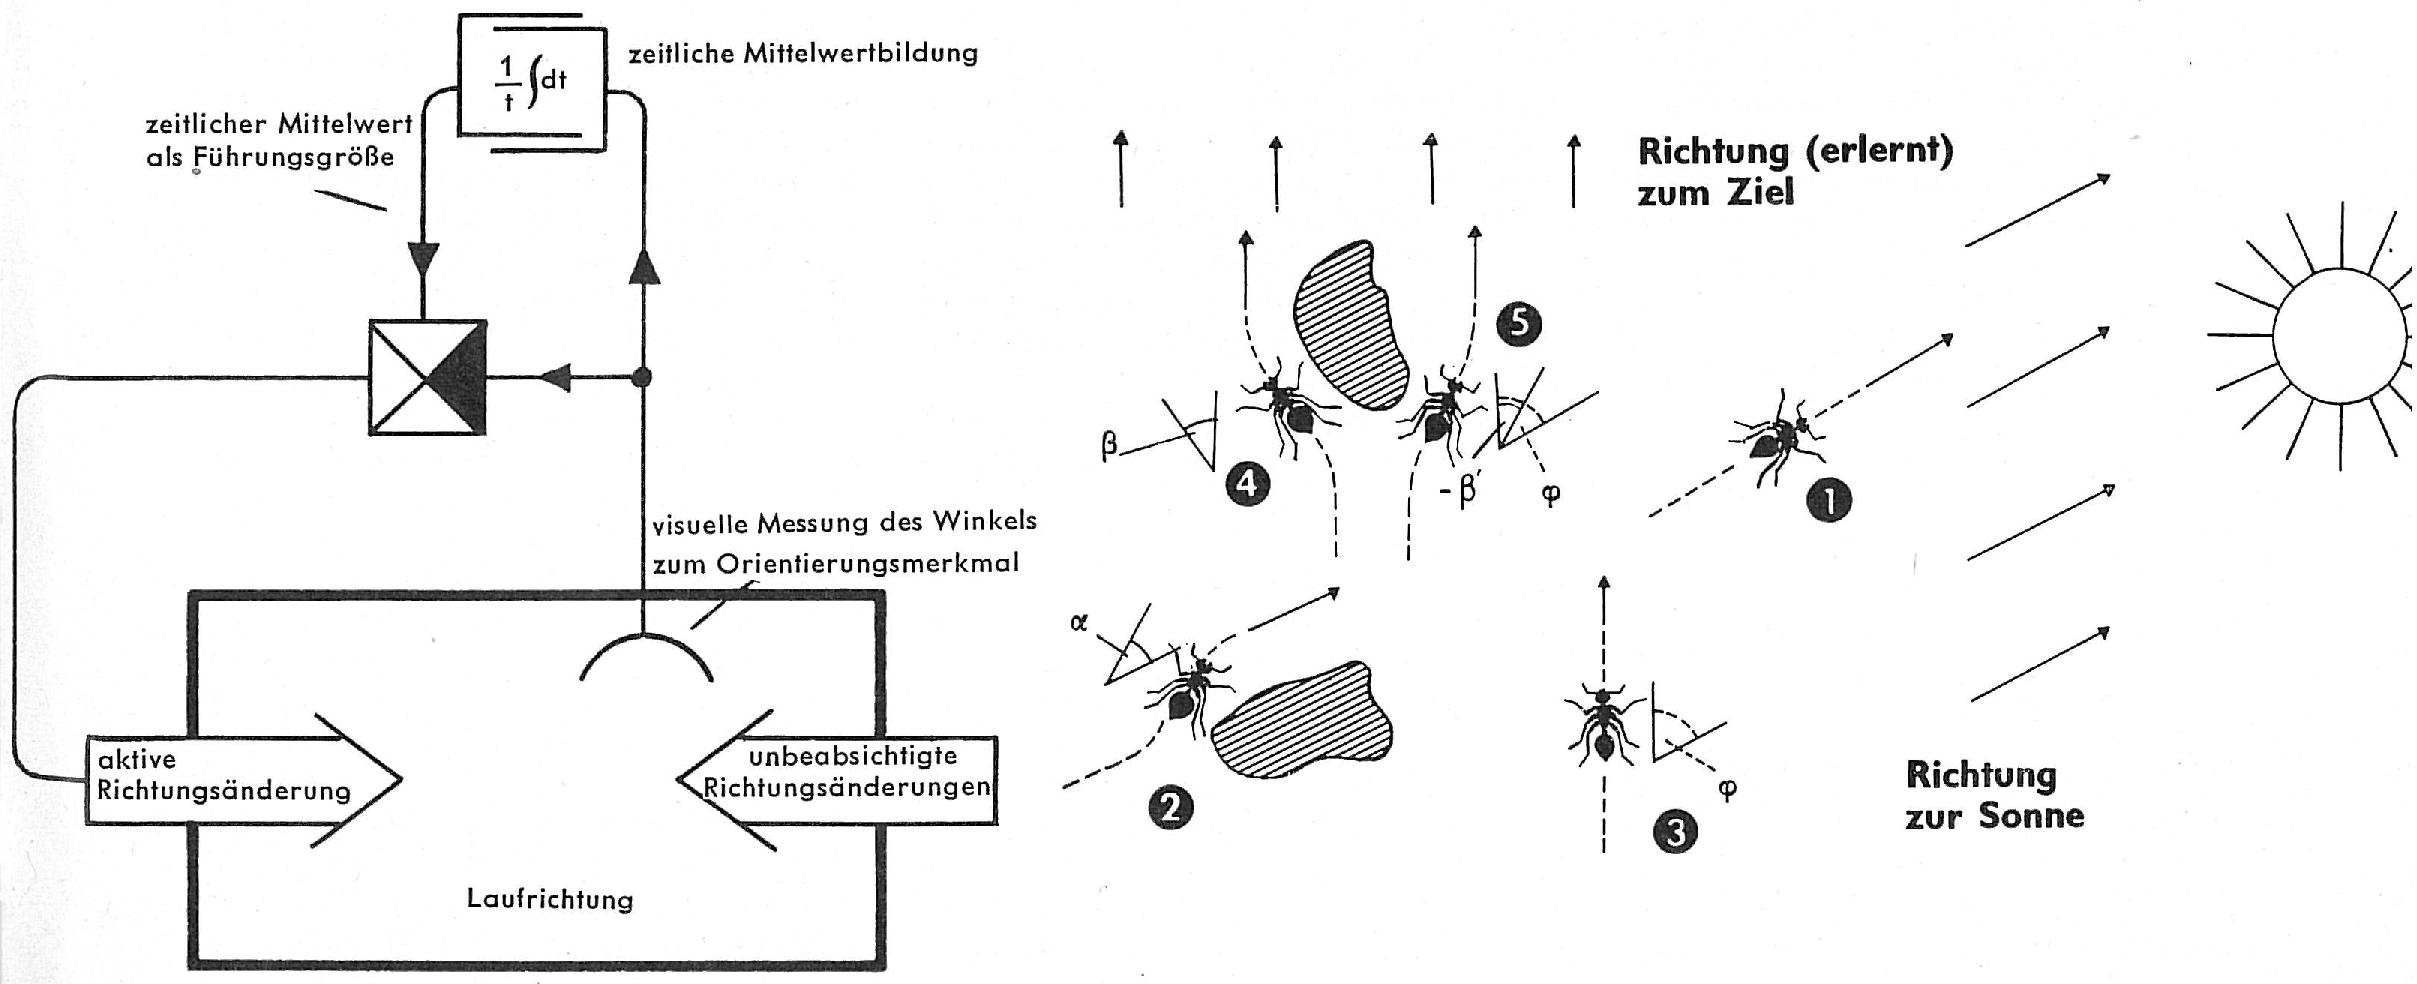 Bild 2 (links)
Blockschaltbild für das Funktionssystem, mit Hilfe dessen bestimmte Insekten die gerade Richtung zu einem Ziel finden, das ursprünglich infolge von Hindernissen nur auf Umwegen erreichbar war. Der mathematische Ausdruck im Schaltbild soll die Operation der zeitlichen Mittelwertbildung versinnbildlichen. Die unzusammenhängende Umrandung der verantwortlichen Instanz soll symbolisieren, daß der während eines Laufes gebildete Mittelwert erst beim nächsten Lauf als Führungsgröße für die Laufrichtung eintreten kann; bei den untersuchten Ameisen waren sogar mehrere Male notwendig, um die Führungsgröße von Null her zum endgültigen Wert anwachsen zu lassen [3]. Ohne Führungsgröße bewirkt der Regelkreis, daß das Tier sich auf das Orientierungsmerkmal zu (oder von ihm fort) bewegt; unbeabsichtigte Richtungsänderungen werden kompensiert ("positive oder negative Topotaxis"). Eine Führungsgröße befähigt das Tier dazu, Winkel zu Orientierungsmerkmalen einzuhalten ("Menotaxis"). Näheres siehe [3].
Bild 3 (rechts)Veranschaulichung der Funktion des Regelkreises nach Bild 2. Die Ameisen Nr. 1 und 2 haben die Tendenz, in Sonnenrichtung zu laufen und haben sich noch keine Richtung zu einem anderen Ziel eingeprägt; die Führungsgröße ist also gleich Null, und die Stellgröße ist somit auch Null. Ameise 1 läuft darum geradeaus weiter. — Ameise 2 ist durch ein mechanisches Hindernis aus der Laufrichtung zur Sonne abgelenkt worden. Die Augen melden daher einen Winkel α; der Regler macht daraus das Kommando (Stellgröße) "minus α". Das Tier wendet sich daher nach Passieren des Hindernisses solange in der Gegenrichtung zu α, bis wieder die Sonnenrichtung erreicht ist und der Winkel "Null" gemeldet wird. — Die Ameisen 3 bis 5 haben jedoch eine andere Laufrichtung erlernt, d. h. ihr Zentralnervensystem hat durch Lernen eine Führungsgröße aufgebaut. Ameise 3 läuft in der erlernten Richtung. Ihre Augen melden den Winkel φ. Die Führungsgröße, welche der durch φ gegebenen Richtung entspricht, ist nun genauso groß wie die Meldung "Winkelφ" der Augen. Folglich ergibt sich wegen der Addition der Führungsgröße zum negativen Wert der Meldung der Augen hier die Stellgröße Null; die Ameise macht also keine Wendung, sondern verfolgt weiter die erlernte Richtung. — Ameisen 4 und 5 sind von der erlernten Laufrichtung abgelenkt worden, und zwar nach verschiedenen Seiten um die Winkel +β bzw. -β' ("links" ist willkürlich mit "plus", "rechts" folglich mit "minus" gleichgesetzt). Durch Kombinieren des für die Ameisen 2 und 3 Erklärten ergibt sich, daß die Tiere auf Grund der Wirkung des Regelkreises nach der Ablenkung in die erlernte Richtung zurückkehren müssen. Denn die Stellgrößen entsprechen den Meldungen -(φ+β)+φ = -β bzw. -(φ-β')+φ = β'.
Und diese Methode zur Ermittlung der Luftlinie verwendet auch das Zentralnervensystem der Ameise. Das ergab sich u. a. aus folgendem experimentellen Befund: Die Versuchstiere, die sich bei ihrem Weg eines fernen dunklen Gegenstandes als Orientierungsmerkmals bedienten, erhielten zusätzlich in zwei verschiedenen Richtungen je eine Lichtquelle geboten. Beide Lampen leuchteten jedoch nicht gleichzeitig, sondern abwechselnd und in verschiedenen Versuchen in unterschiedlichen Zeitintervallen: 1. 15 und 45 sec, 2. 30 und 30 sec, 3. 45 und 15 sec lang. Der Anblick der Lichtwechsel störte die Tiere nicht; im Gegenteil, die Lichtquellen wurden für sie zu einem zusätzlichen Orientierungsmerkmal. Nachdem die Ameisen unter diesen Bedingungen genügend Erfahrung gesammelt hatten, wurde im entscheidenden Versuch einerseits die dunkle Orientierungsfläche entfernt, andererseits nur eine Lampe anstelle der zwei, und zwar in einer neuen Richtung geboten. Die Ameisen stellten sich nun zu ihr prompt in einer Winkelrichtung ein, die dem zeitlichen Durchschnittswinkel zwischen den Leuchtrichtungen der beiden Lampen entsprach. Im zweiten der oben angegebenen Fälle entsprach dieser Durchschnittswinkel der Winkelhalbierenden zwischen den Lampen, im ersten und dritten Fall teilten die Ameisen den Winkel im Verhältnis 3:1 bzw. 1:3. — Die Ameisen nehmen also die Erfahrung über die Lichtrichtungen und Leuchtzeiten auf. Durch deren "Verrechnung" in einem Lernvorgang entsteht in ihrem Zentralnervensystem ein Informationswert für die zeitliche Durchschnittsrichtung, die unter den Bedingungen der Richtungsfindung in der freien Natur die Richtung des geraden Weges ist. Dieser — einen Winkel zu einem Orientierungsmerkmal repräsentierende — zentralnervöse Wert geht dann als "Sollwert" in die Orientierungsreaktionen der Ameisen ein. Die Bilder 2 und 3 sollen dies andeuten. Formal ist der Vorgang im Nervensystem der Ameise eine zeitliche Integration und Mittelung der eingehenden Winkelwerte. Man kann sagen: Das Nervensystem der Ameise verwendet die mathematische Methode der zeitlichen Integration und Mittelung zur Bestimmung des geraden Weges zu einem zunächst nur auf Umwegen erreichbaren Ziel. — Ein Beispiel einer "höheren" mathematischen Leistung der Informationsverarbeitung liefert das Bewegungssehen des Insektenauges.
4. Folgerung
Enthält die Biologie Aufgaben für eine biologisch-kybernetische Arbeitsrichtung? Diese Frage leitete die Besprechung der Forschungsbeispiele ein. Sie verdiente eine Verneinung, falls es entweder gar keine informationsübertragenden oder -verarbeitenden Prozesse im Organismus gäbe, oder aber, falls die vorkommenden Prozesse dieser Art so einfach und durchschaubar wären, daß es zu ihrer Erfassung keiner theoretischen Mittel außerhalb der herkömmlichen Begriffswelt der Biologie bedürfte.
Die besprochenen Forschungsbeispiele scheinen mir aber zum Teil tatsächlich nur mit den theoretischen Mitteln der Kybernetik zu verstehen zu sein. Zumindest hat die Biologie für einige Begriffe wie Proportional- und Integralregler, Frequenzgang, Sollwertverstellung eines Regelkreises, zeitliche Mittelung und vor allem für den Begriff der Information keine Analoga bereit. Sie wird vermutlich auch keine Sonderterminologie mehr bilden; denn der Kontakt mit der Technik, der Mathematik und der Informationstheorie ist überall hergestellt, und dort liegen die notwendigen Begriffe fertig vor. Insofern glaube ich, daß die Existenz einer biologisch-kybernetischen Arbeitsrichtung sachlich begründet ist und vermute, daß sogar die Lösung einiger "königlicher Probleme" der Biologie und Physiologie, z. B. des Gestaltsehens und des Gedächtnisses, auf ihrem Wege liegen.
Literaturverzeichnis
[1] A. Bleichert, Arch. f. Ophthalmologie 159 [1957] S. 396. [2] H. Drischel, in H. Mittelstaedt (Hsg.): Regelungsvorgänge in der Biologie. München 1956. [3] R. Jander, Z. f. vgl. Physiol. 40 [1957] S. 162. [4] W. A. H. Rushton, in W. A. Rosenblith (Hsg.): Sensory Communication. New York 1961. [5] L. Stark, u. Ph. Sherman, J. Neurophysiol. 20 [1957] S. 17. [6] J. Stegemann, Pflügers Arch. 264 [1957] S. 113.*) Dieser Aufsatz erscheint auch in der 3., völlig überarbeiteten und stark erweiterten Auflage der Broschüre "Kybernetik — Brücke zwischen den Wissenschaften", Umschau-Verlag, Frankfurt a. M.
**) 1922; zusammen mit W. Reichardt und H. Wenking 1958 Begründung der Forschungsgruppe Kybernetik am Max-Planck-Institut für Biologie in Tübingen. Seit 1990 o. Prof. für Zoologie.