


Aus: Akademiejournal 2/96 Mitteilungsblatt der Konferenz der deutschen Akademien der Wissenschaften e.V. Geschwister-Scholl-Straße 2, D-55131 Mainz, FRG
Hinweis:
Dem vorliegenden Text liegt eine aus dem Original durch eine automatische Texterkennung entstandene Version zugrunde.
Dieser vom Computer erzeugte Text wurde anschließend redigiert, dennoch können wir nicht ausschließen, daß
sich manche Stellen noch versehentlich vom Original unterscheiden.
Als Grundlage authentischer Zitate und zur Klärung evtl. Zweifel können Sie
den Original-Scan (7 MB) einsehen.
Für den Fall, daß Sie eine nicht mit dem Original übereinstimmende Textstelle entdecken,
wären wir Ihnen für eine kurze
Mitteilung an uns
überaus dankbar.
Durch gute Erfahrungen bedingte Lernprozesse
Einblick in die Verhaltensphysiologie
Bernhard Hassenstein
Zu den erstaunlichen Leistungen von lebenden Organismen gehört ihre Fähigkeit zu lernen: Individuelle Erfahrungen, z. B. von Lohn oder Strafe, bringen dauerhafte Strukturänderungen im System der Verhaltenssteuerung zustande. Einem solchen Lernmechanismus ist die folgende Erörterung gewidmet: Wird ein Verhalten durch anschließende gute Erfahrungen belohnt, so verwendet der Organismus dieses Verhalten in Zukunft häufiger. Diesen Lernvorgang — fachliche Bezeichnung operant conditioning oder Lernen am Erfolg — demonstriert die folgende Abhandlung in vier ganz unterschiedlichen Sichtweisen: Als Ergebnis von Beobachtungen und Experimenten, als Zentralbegriff der neobehavioristischen Lerntheorie [1], als Verhaltensmuster mit bestimmter biologischer Funktion [2], und als Ergebnis des Zusammenspiels von vier unterschiedlichen elementaren Prozessen der biologischen Datenverarbeitung.
A. Beobachtungen und Experimente: Empirische Basis
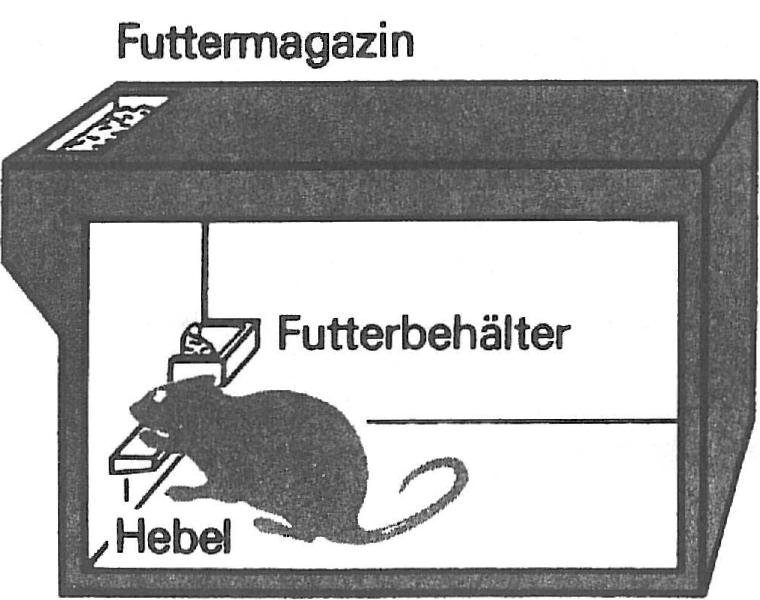 Abb. 1.
SKINNER-Box, auch Problem-Käfig genannt, in der eine Ratte gerade die Reaktionstaste bedient, um die Futter-Belohnung zu bekommen [4]
(1) Junge, noch erfahrungslose Eichhörnchen neigen dazu, Haselnüsse, die sie finden, mit beiden Vorderfüßen zu fassen, sie hin und her zu drehen und sie von allen Seiten her zu benagen. Wie die Eichhörnchen bald merken, gelingt ihnen das Nagen am besten — und sie kommen auch am schnellsten an den Kern —, wenn sie mit dem Nagen an der Furche der Nußschale (botanisch: an den Keimblatträndern) ansetzen. Nach dieser Entdeckung verlassen sie die anderen Methoden und konzentrieren sich auf das erfolgreichste Vorgehen [3]. Darin offenbart sich ein Lernprozeß: Biologisch vorteilhaftes Verhalten wird eingeprägt und dann vorgezogen; biologisch weniger vorteilhaftes oder nachteiliges Verhalten wird verlassen oder unterdrückt.
(2) Als klassische Versuchsanordnung zum genaueren Studium des operant conditioning gilt die Skinner-Box (Abb. 1): In einem Käfig ist ein Hebel, eine "Reaktionstaste", angebracht. Wird diese von dem Versuchstier betätigt, so setzt das einen Mechanismus in Gang, der das Tier belohnt (z.B. mit einem Futterbrocken) oder bestraft (z.B. mit einem elektrischen Schlag). Im ersten Fall betätigen die Versuchstiere daraufhin den Hebel häufiger, im zweiten seltener. Skinner-Boxen wurden für verschiedene Tierarten in den unterschiedlichsten Ausführungen entwickelt.
(3) Unter ungünstigen Bedingungen kann der segensreiche Lernprozeß des operant conditioning auch sinnlose oder nachteilige Folgen haben wie z. B. in Skinners berühmtem Versuch mit den "abergläubischen Tauben"[5]. Die hungrigen Tiere wurden einzeln in nebeneinanderstehende Käfige eingesperrt. Ein Futtermechanismus spendete ihnen alle 15 sec eine kleine Portion Körner, unabhängig vom Verhalten der Tiere. Nach einiger Zeit verhielten sich die Tauben ganz wunderlich: Eine machte dauernd Rotationsbewegungen um die eigene Achse; die andere spreizte den linken Flügel und das linke Bein; die dritte streckte den Kopf, so hoch es ging; eine weitere machte kuriose Verbeugungen in eine Ecke; wieder eine andere sprang auf der Stelle herum usw. Je nachdem, wie die Futtergabe zu Anfang gerade mit einer bestimmten Verhaltensweise zeitlich in Beziehung gestanden hatte, trat gerade diese Verhaltensweise in der Folge immer häufiger auf. Die Tauben schienen dem Aberglauben verfallen zu sein, das Erscheinen des Futters wäre jedesmal eine Folge ihres absonderlichen Verhaltens.
Das seltsame Schauspiel ergab sich also dadurch, daß sich jede Taube anfangs durch die Futtergabe für dasjenige Verhalten belohnt fühlte, das sie zufällig gerade vor dieser Futtergabe durchgeführt hatte. Dieses Verhalten wiederholte sie dann und wurde immer erneut dafür belohnt. Bei jeder Taube war das Anfangsverhalten ein anderes gewesen.
(4) Im Zuge der Erforschung möglicher verhaltensbiologischer Ursachen für das nicht organisch bedingte kindliche Bettnässen (Enuresis) fand folgender Verhaltensversuch statt[6]:
Ein Schaflamm wurde mit seinem Muttertier in einem Gehege gehalten, das durch einen Zaun zweigeteilt war; im Zaun befand sich eine Tür. Der Versuch begann eines Tages damit, daß die Mutter dann und wann ohne das Lamm durch die Tür in das jeweils andere Abteil gelockt wurde. Das Lamm nahm davon zunächst keine Notiz. Wollte es aber später doch wieder einmal zur Mutter, so fand es vorerst das Tor verschlossen. Geöffnet wurde die Tür erst dann — dann aber sogleich —, wenn das Lamm Harn ließ. Die Versuchsleiterin beobachtete also das Lamm und machte ihm die Tür auf, sobald es Harn abgegeben hatte; darin bestand die Dressur. Bei Beginn dieser Versuchsstrategie harnte das Lämmchen zunächst zu Zeiten, die von äußeren Ereignissen, auch der Abtrennung der Mutter, unabhängig waren. Nach einer bestimmten Frist, die für jedes Lamm eine andere Dauer hatte (1 bis 3 Tage), änderte sich das aber: Wenn jetzt das Lamm zur Mutter wollte und an der verschlossenen Tür angekommen war, harnte es dort sofort (woraufhin es dann auch sogleich zur Mutter gelassen wurde). Nachdem dem Harnen mehrmals eine Befriedigung des stark angestiegenen Mutterkontakt-Bedürfnisses unmittelbar zeitlich nachgefolgt war (Lernsituation), benutzte das Lamm das Harnen also plötzlich als Mittel, um diese Triebbefriedigung zu erlangen. Der Antrieb zum Mutterkontakt hatte sich demnach mit dem Verhaltenselement "Harnlassen" verknüpft und es in seinen Dienst gestellt. — Daraus folgt: Selbst zwei anatomisch so weit voneinander entfernte zentralnervöse Steuerinstanzen wie die für den Mutterkontakt und die für das Harnlassen können sich durch einen Lernprozeß miteinander verkoppeln.
B. Lerntheoretische Fragestellung
Vergleicht man die vier geschilderten Tierbeispiele miteinander — das Nüsse öffnende Eichhörnchen, die Ratte in der Skinner-Box, die "abergläubischen Tauben" und das "zur Mutter strebende harnlassende Lämmchen" —, so offenbart sich ein übereinstimmender Funktionszusammenhang: Auf ein Verhalten folgt eine gute Erfahrung, woraufhin das Tier sich das derart belohnte Verhalten einprägt und es in Zukunft in entsprechender Situation wiederholt. Eine Verhaltensweise, die ihre Entstehung einem solchen Lernprozeß des operant conditioning verdankt, trägt die Bezeichnung bedingte Aktion. (Das Wort "bedingt" hat in der Lerntheorie stets die Bedeutung "erfahrungsbedingt").
Die Definition des operant conditioning ist auf Abb. 2 in ein "Lernphase-Kannphase-Diagramm" transformiert. Darin ist aus dem vielfältigen Geschehen das für die behavioristische Lerntheorie Prinzipielle herausdestilliert: In der Lernphase folgt jeweils auf ein Verhalten eine Belohnung. In der Kannphase wird daraufhin dieses Verhalten häufiger, es wird "verstärkt".
 Abb. 2.
Funktionszusammenhang des operant conditioning: Angabe der von außen her unmittelbar beobachteten Bedingungen und Konsequenzen. Die Begriffe "Lernphase" und "Kannphase" stammen von dem Ingenieurwissenschaftler Karl Steinbuch [7]
C. Biologische Bedeutung
In biologischer Sicht ist dieser funktionelle Zusammenhang unmittelbar einsichtig: Wenn überhaupt Lernprozesse verfügbar sind, dann sollte einer von ihnen gerade das leisten, was geschildert wurde: Eigenes Verhalten, das unverzüglich durch Erfolg — welcher Art auch immer — belohnt wurde, sollte sich daraufhin einprägen und häufiger werden. Ein solcher Funktionszusammenhang, einmal entstanden, müßte — in biologischer Sicht — auch durch die Darwinsche Selektion erhalten oder gefördert werden. Dies alles scheint auf der Hand zu liegen.
Denkt man aber an die physiologische Verwirklichung dieses so einleuchtenden Funktionszusammenhangs, so erscheint dies keineswegs so einfach: Ein Verhalten wird ausgeführt. Nicht zugleich, sondern erst nach einem gewissen, wenn auch kurzen Zeitintervall widerfährt dem Organismus eine gute Erfahrung. Bei deren Eintreffen gehört das verursachende eigene Verhalten schon der Vergangenheit an. Trotzdem wird diese Ereignisfolge zur Ursache des sich Einprägens des eben vergangenen (und keines anderen!) Verhaltens mit der Folge seines künftig häufigeren Auftretens.
D. Zwei verhaltensphysiologische Fragestellungen
Die beschriebene, bei lernfähigen Tieren weit verbreitete spezielle Lernleistung wirft zwei verhaltensphysiologische Fragen auf:
(1) Von welcher biologischen Natur könnte der interne Belohnungs-Indikator sein? Für alle vier eingangs geschilderten Tierbeispiele ist diese Frage ohne theoretische Spekulation zu beantworten: Jede Belohnung lieferte dort die Befriedigung oder Teilbefriedigung eines Bedürfnisses, dreimal des Hungers und einmal des Bedürfnisses, zur Mutter zu gelangen. Belohnung kann also, wenn man ins Innere des Organismus blickt, den Charakter einer Antriebsbefriedigung (und damit Antriebsverringerung) haben.
(2) Welcher interne physiologische Informationswert entspricht dem Häufigerwerden eines Verhaltens, nachdem es belohnt wurde? Betrachtet man — als repräsentatives Beispiel — das Verhalten der Ratte in der Skinner-Box (Abb. 1), so offenbart sich (wiederum ohne theoretische Spekulation):
-
Einerseits ist die Häufigkeit des Verhaltens abhängig vom vorangegangenen Vollzug des Lernprozesses des operant conditioning.
-
Andererseits aber sind Häufigkeit und Intensität des Verhaltens nach dem Vollzug des Lernprozesses abhängig vom Aktivierungsgrad desjenigen Antriebs, der zuvor durch die Belohnungen befriedigt wurde: Je größer der Hunger der Ratte in der Skinner-Box, desto häufiger führt sie das erlernte Verhalten aus.
-
Antriebsbefriedigung für "Belohnung",
-
Neuverknüpfung statt "Verstärkung",
- Skinner, B. F.: The Behavior of Organisms. New York 1938.
- Hassenstein, B.: Bedingungen für Lernprozesse - teleonomisch gesehen. Nova Acta Leopoldina 37/1, S. 289-320, 1972.
- ders.: Verhaltensbiologie des Kindes. München 1973, 41987.
- Eibl-Eibesfeldt, I.: Zur Fortpflanzungsbiologie und Jugendentwicklung des Eichhörnchens. Zeitschrift für Tierpsychologie 8, 370-400, 1951.
- Die Abbildung ist eine modifizierte Darstellung nach Schmidt, R. F.: Integrative Leistung des Zentralnervensystems. In: Robert F. Schmidt, Gerhard Thews (Hrsg.) Physiologie des Menschen. Berlin, Heidelberg, New York 25 1993, S. 165.
- Skinner, B.F.: "Superstition", in the pigeon. J. exp. Psychology 38, S. 168-172, 1948, ausführlich referiert in: Grossmann, K. E.: Psychologie des Verhaltens. Bild der Wissenschaft 5, 1968, S. 1051-1061.
- Schleicher, U.: Harnlassen als Ausdruck des Mutterkontaktbedürfnisses. Staatsexamensarbeit Univ. Freiburg 1983. Referiert in Hassenstein, Verhaltensbiologie des Kindes, München 41987, S. 291-92. Die auf das Konzept der bedingten Aktion gegründete Theorie für das Entstehen der Enuresis ist niedergelegt in: Haug-Schnabel, G.: Entwicklung des Funktionsschaltbildes für eine psychosomatische Fehlreaktion von Kindern, die Enuresis. In: Doerr, W. u. Schipperges, H. (Hrsg.): Modelle der Pathologischen Physiologie. Berlin, Heidelberg 1987. Haug-Schnabel, G.: Enuresis. München Basel 1994, S. 156-175.
- Steinbuch, K.: Die Lernmatrix. Kybernetik 1, 36-45, 1961.
- Hassenstein, B. u. Reichardt, W.: Der Schluß von Reiz-Reaktions-Funktionen auf System-Strukturen. Z.f. Naturforschg. 8b, S. 518-524, 1953.
- Hassenstein, B.: Über Belichtungspotentiale in den Augen der Fliegen Sarcophaga und Eristalis. Journal of Insect Physiology 1, S. 124-130, 1957.
- Pawlow, I.P.: Die höchste Nerventätigkeit (das Verhalten) von Tieren. München (Verlag J.F. Bergmann) 1926.
Die Antwort auf die zweite Frage lautet also: Was man, verursacht durch operant conditioning, behavioristisch als Häufigerwerden des Verhaltens aufgrund der Belohnungen registriert, beruht in verhaltensphysiologischer Sicht jeweils auf einem neu geknüpften Funktionszusammenhang: einer neu gebildeten steuernden Informationsübertragung von dem Antrieb, der durch Belohnung befriedigt wurde, hin zur Auslösung des Verhaltens, das in der Lernphase die Belohnung nach sich zog.
Die beiden verhaltensphysiologischen Deutungen
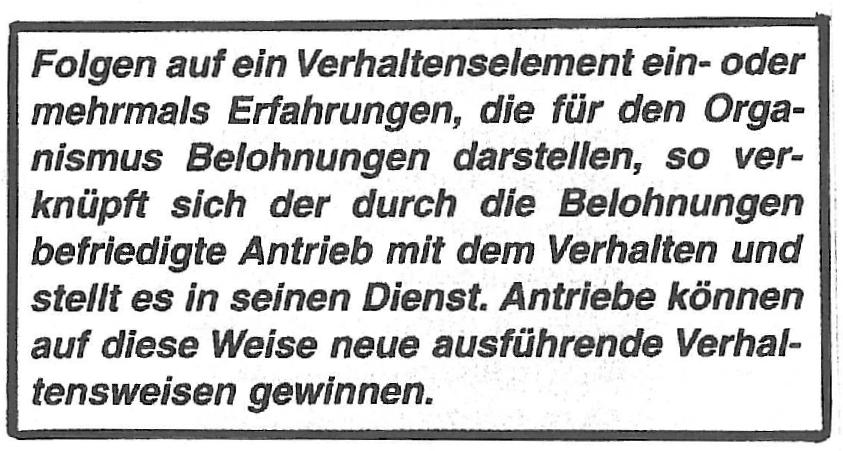 Abb. 3
Verhaltensphysiologische Begriffsbestimmung des operant conditioning unter Verwendung der Begriffe "Belohnung", "Antrieb" und "Verknüpfung"
In der Sicht dieser Neuformulierung ein kurzer Rückblick auf das vierte der Eingangsbeispiele: Beim Schaflamm führte das Harnlassen (im vorgesehenen Versuchsablauf) zum Öffnen der Tür zum Gehege der Mutter und damit zur Befriedigung des Antriebs, zur Mutter zu gelangen. In Folge davon gewann dieser Antrieb durch den Lernprozeß eine neue Verhaltensweise gleichsam als Werkzeug oder Hilfsmittel: das Harnlassen.
E. Aufgliederung in vier Einzelfunktionen
Überdenkt man die auf Abb. 3 beschriebene Leistung, so kann man in ihrem Ablauf vier Teilprozesse der biologischen Datenverarbeitung erkennen:
(1) Hat ein Verhalten stattgefunden, so folgt zunächst eine kleine Pause, bis — eventuell — eine Belohnung stattfindet. Über diese Pause hinweg wird die Information über das Verhalten gespeichert. Gäbe es eine solche Kurzzeitspeicherung nicht, so würde eine Belohnung zur Verknüpfung mit einem beliebigen Verhaltenselement führen können, nicht aber gesetzmäßig mit dem, das der Belohnung kurze Zeit vorausgegangen war. Die erste Teilfunktion, die sich im Rahmen der Bildung einer bedingten Aktion offenbart, ist also eine Kurzzeit-Speicherung.
(2) Sofern Belohnungen vom Charakter einer Antriebsbefriedigung das Lerngeschehen mitbedingen, ist das ein Beleg für die Bereitstellung eines inneren speziellen Signals für die hierdurch bedingten Änderungen der Antriebsaktivität (wenn ich meinen Hunger befriedige, so sinkt dessen Aktivitätsgrad). Mathematisch gesehen ist das selektive Reagieren auf die Änderung eines Signalflusses gleichbedeutend mit der Bildung- und Weitersendung des zeitlichen Differentialquotienten des empfangenen Signalstroms. Das zweite erkennbare Funktionsglied im Rahmen des operant conditioning ist also ein "Indikator für Änderung", nämlich für die Abnahme der Antriebsaktivität (durch die Belohnung).
(3) Daß der Lerneffekt gesetzmäßig speziell beim Zusammentreffen zweier Bedingungen eintritt, nämlich einer Belohnung und eines kurz zuvor vor sich gegangenen Verhaltens, weist zwingend auf die Existenz und Wirksamkeit eines Funktionsgliedes hin, das selektiv auf das gleichzeitige Eintreffen von Signalen aus zwei Quellen anspricht (hier: "Belohnung" und "bestimmtes eigenes vorausgegangenes Verhalten") und dies dann weitermeldet. Ohne einen solchen "Koinzidenzdetektor" würde das Lerngeschehen entweder schon bei unbelohntem Verhalten oder bei Belohnungen ohne vorausgegangenes Verhalten in Gang kommen, damit also das Funktionsziel verfehlen, ein bestimmtes, nämlich das belohnte Verhalten in den Dienst eines bestimmten Antriebs (nämlich des durch die Belohnung befriedigten) zu stellen.
(4) Der eigentliche Lernprozeß besteht im Verknüpfen zweier Signalübertragungsbahnen, die primär unverbunden waren: der Kommandobahn für das Verhalten, das — sekundär — belohnt wurde, mit der Übertragungsbahn der Signale von der Antriebsinstanz, die durch den Lernakt zur Ingangsetzung des betreffenden Verhaltens fähig wird und dieses damit in seinen Dienst stellt. Als vierte Teilfunktion erweist sich also das Verbinden zweier bis dato unverbundener Signalübertragungswege.
F. Zusammenfassung zu einem Funktionsschaltbild
Hat man diese vier Einzelvorgänge der physiologischen Datenverarbeitung voneinander unterschieden, so kann man darangehen, aus ihnen einen zusammenhängenden Schaltplan zusammenzusetzen und dann zu untersuchen, ob er die Gesamtfunktion des in Auge gefaßten Lernprozesses ausführt. Abb. 4 zeigt das Ergebnis dieser Synthese.
 Abb. 4
Idealisiertes vereinfachtes Funktionsschaltbild ("Entwurfsmuster") für das Entstehungsprinzip einer bedingten Aktion durch den Lernprozeß des operant conditioning. Erklärung im Text. Die Instanz "Antrieb" repräsentiert die Zusammenfassung aller inneren Variablen, deren jeweiliger Aktivitätszustand ein Verhalten — dessen Anregung und Intensität — bestimmt oder im Zusammenwirken mit äußeren Bedingungen wie Sinnesreizen mitbestimmt. Das gestrichelte Ende der unteren waagrechten Bahn (rot) überträgt die Signale vom Antrieb zu dem ihm primär zugehörigen Verhalten
Die unterschiedlichen Farben kennzeichnen in der Reihenfolge Schwarz – Blau – Grün – Rot die erforderlichen Entwicklungsstufen des Funktionsschaltbildes.
Schwarz dargestellter Anteil. Das Verhalten (rechts oben), das später auf Grund des Lernprozesses in den Dienst des durch die Belohnung befriedigten Antriebs tritt, wird vor dem Lernprozeß auf dem Weg über die Kommandobahn (schwarze Linie oben) eingeleitet — durch was für einen äußeren oder inneren Impuls, ist für das nachfolgende Geschehen ohne Belang. Von der Kommandobahn zweigt eine Verbindung zu dem Kurzzeitspeicher ab, der jedes Kommandosignal empfängt und es dann jeweils über eine Zeitspanne aufbewahrt, die bis zum Eintreffen einer eventuellen Belohnung verstreicht. Danach geht die Information über das jeweils gerade vorangegangene innere Verhaltenskommando wieder verloren: Insofern handelt es sich um einen Kurzzeit-Speicher. Er überbrückt die Zeitspanne zwischen dem Verhalten und einer — eventuell darauf folgenden — Belohnung.
Blau dargestellter Anteil. Dieses Teilsystem erzeugt dann und nur dann ein Signal, wenn gerade eine Antriebsbefriedigung stattgefunden, sich also der Aktivierungsgrad des Antriebs schnell — um einen höheren oder geringeren Betrag — geändert hatte. Hierzu zweigt von der Bahn, die von der Antriebsinstanz ausgeht und laufend deren Aktivierungsgrad signalisiert (rot dargestellt), die blau gezeichnete Bahn nach oben zu einem Differenzierglied ab; dessen Eigenschaft besteht (entsprechend der mathematischen Operation der Differentiation) darin, nur dann ein Signal abzusenden, wenn sich der eintreffende Signalstrom gerade ändert. Das Element ist also ein "Änderungs-Anzeiger".
Außerdem ist noch eine waagerechte Bahn blau eingezeichnet: Sie sendet solche Signale an die Antriebsinstanz, die deren Aktivitätszustand senken (symbolisiert durch das Minuszeichen). Sie können verschiedenen Ursprungs sein, beispielsweise die Durchführung der Antriebshandlung oder die Verminderung des den Antrieb aktivierenden Mangelzustands und damit die gerade vor sich gehende Belohnung melden.
Grün dargestellter Anteil. Das "Koinzidenzelement" empfängt zwei Übertragungskanäle und reagiert mit der Aussendung seines Signals nur, wenn es aus seinen beiden Eingangskanälen gleichzeitig Meldungen empfängt. (Mathematisch gesehen, entspricht diese Datenverarbeitung einer Multiplikation: Im Unterschied zur Summation liefern nur zwei von null verschiedene Beträge, Faktoren, ein von null verschiedenes Ergebnis). Also: Wenn ein Signal entsteht, trägt es die Bedeutung: Vor kurzem ereignete sich ein Verhalten (Signal aus dem Kurzzeitspeicher), und eben jetzt vollzieht sich eine Belohnung (Signal des Differenzierglieds!).
Rot eingetragener Anteil. "Bedingte Verknüpfung" heißt: Die sich auf der Zeichnung überkreuzenden, in Wirklichkeit einander räumlich nahekommenden Bahnen stehen zunächst in keiner signalübertragenden Verbindung zueinander; wenn aber ein "h-Signal" (Bezeichnung nach Karl Steinbuch) eintrifft, bildet sich eine dauerhafte signalübertragende Verbindung — hier von der senkrechten roten Leitung zum waagerechten Kommando-Kanal. Ist diese Verbindung einmal entstanden, so sendet die Antriebsinstanz im Falle ihres Aktiviertseins Signale auf dem neugeschaffenen Wege an die Instanz, die das Verhalten durchführt.
Zusammenschau. Das in Abb. 4 schematisch dargestellte datenverarbeitende System aus einem Kurzzeitspeicher, einem Differenzierglied, einem Koinzidenzelement und einer Instanz der bedingten Verknüpfung erhebt den Anspruch, hinreichend zu sein, um die auf Abb. 3 charakterisierte Leistung durchzuführen: Der Lernvorgang (Verknüpfung zwischen Antriebsaktivität und Verhaltenskommandobahn) vollzieht sich, sobald eine Belohnung mit der Information über ein kurz zuvor ausgeübtes Verhalten zeitlich zusammenfällt.
G. Prüfung der Notwendigkeit der Funktionselemente
Auf Abb. 4 sind vier Arten von Elementen der Datenverarbeitung so zusammengeschaltet, daß sie — gleichsam automatisch — den Vorgang des operant conditioning simulieren. Sind aber alle von ihnen auch notwendig? Oder könnte nicht das eine oder andere dieser Elemente die Leistung eines anderen mit übernehmen, so daß sich dadurch die Anzahl der erforderlichen Element-Arten oder der Leitungen verringert? Die Erörterung dieser Frage gehört zum Kanon der Verhaltensphysiologie [8]. Das ließe sich hier an Hand der zuvor beschriebenen Einzelfunktionen Schritt für Schritt durchführen. Doch genügt an dieser Stelle der Hinweis: Die vier Einzelleistungen — Kurzzeit-Speicherung, Differentiation, Koinzidenzauswertung und Neuverknüpfung zwischen signalübertragenden Bahnen — sind logisch und operational von so unterschiedlicher Natur, daß eine gegenseitige funktionelle Vertretung zwischen zweien oder gar dreien von ihnen garnicht denkbar wäre.
Eher noch könnte die Frage zu Bedenken Anlaß geben, ob nicht die eine oder andere der als erforderlich deklarierten Einzelfunktionen prinzipiell unbiologisch sei und durch Lebensprozesse garnicht zu leisten wäre. Hierzu ist anzumerken, daß es zu jeder der vier ins Auge gefaßten Einzelfunktionen biologische Parallelen gibt, deren Existenz niemand bezweifeln kann:
(1) Als physiologischer Signal-Kurzzeitspeicher wirkt der Atrioventricularknoten zwischen der Vorhof- und Hauptkammermuskulatur des Herzens; die Kontraktion der Hauptkammer gewinnt das Optimum ihrer Wirkung auf die Blutbewegung durch eine definierte Zeitverzögerung in der Erregungsübertragung von der Vorkammer zur Hauptkammer. (2) Spezielle Änderungs-Anzeiger sind im Sehsystem zahlloser Organismen enthalten, deren Reaktionen nicht von der absoluten Umgebungshelligkeit abhängen, die dafür aber umso empfindlicher auf Helligkeits-Änderungen reagieren, z. B. auf plötzliche Beschattung. Am Auge der Fliege läßt sich das im Experiment an der sogenannten schnellen Phase des Elektroretinogramms aufzeigen, die nicht den absoluten Wert, sondern den Differentialquotienten des empfangenen Lichtflusses widerspiegelt [9]. (3) Als Modell für einen physiologischen Koinzidenzdetektor eignet sich das Richtungshören; die dafür verantwortliche zentralnervöse Instanz liefert nur dann einen Informationswert über die Schallrichtung, wenn von beiden Ohren Sinnesmeldungen aufeinandertreffen. (4) Die Fähigkeit zur Neuverknüpfung (nicht nur Verstärkung von schon vorhandenen Verknüpfungen) von bislang unverbundenen biologischen Signal-Leitungsbahnen ist bereits von I. P. Pawlows Versuchshunden demonstriert worden, wenn diese in der "Kannphase" der Lernexperimente beispielsweise Glockenzeichen oder bestimmte Metronom-Frequenzen mit der Sekretion von Magensaft beantworteten [10].
Schlußbetrachtung
Fände ein Neurophysiologe, ohne die vorangehenden Überlegungen zu kennen, eine Verknüpfung aus einem Kurzzeitspeicher-Element, einem Differenzierglied, einem Koinzidenzglied und dem Element einer "bedingten Verknüpfung", so wie es Abb. 4 zeigt — er würde wohl kaum auf den Gedanken kommen, den Schaltmechanismus des operant conditioning vor sich zu haben. Hätte ein Neurohistologe in einem seiner mikroskopischen Präparate die verantwortliche Struktur für eine bedingte Aktion tatsächlich vor sich — er würde sie nur dann als solche erkennen und zutreffend deuten, wenn er auf das systemtheoretisch ermittelte Wirkungsgefüge zurückgriffe. Was die systemtheoretisch orientierte Verhaltensphysiologie über die funktionelle Struktur von biologischen Steuerungsmechanismen herausarbeitet und in Form von Funktionsschaltbildern wie Abb. 4 darstellt, kann also für den Neurophysiologen und -histologen andeuten, wonach er mit seinen Methoden vielleicht einmal suchen könnte.
Der Vergleich der Abbildungen 1 bis 4 zeigt eindrucksvoll, wie unterschiedlich sich ein und der selbe biologische Tatbestand in der Sicht verschiedener Wissenschaftsrichtungen abbilden kann. Jeder skizzierte Schritt von einer zur nächsten Betrachtungsweise ist als Fortschritt und als Erweiterung des wissenschaftlichen Horizonts zu werten. Das Ergebnis der Überlegungen, dargestellt als Abb. 4, gibt Anlaß zum Staunen und zur Bewunderung. Ein wie differenziertes, geradezu kunstreiches Wirkungsgefüge mußte sich in der Evolution herausbilden, um die dem Anschein nach so einfache Lebensfunktion zu verwirklichen: Ein erfolgreich bewährtes Verhalten dauerhaft in den Dienst eines biologischen Bedürfnisses zu stellen.